<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0084-5906</journal-id>
<journal-title><![CDATA[Acta Botánica Venezuelica]]></journal-title>
<abbrev-journal-title><![CDATA[Acta Bot. Venez.]]></abbrev-journal-title>
<issn>0084-5906</issn>
<publisher>
<publisher-name><![CDATA[Fundación Instituto Botánico de Venezuela Dr. Tobías Lasser]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0084-59062005000200002</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Anatomía de Commelinaceae presentes en un cultivo de papas (Solanum tuberosuml.) en Mérida, Venezuela]]></article-title>
<article-title xml:lang="en"><![CDATA[Anatomy of Commelinaceae present in a culture of potatoes (Solanum tuberosum L.) in Merida, Venezuela]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[LUQUE ARIAS]]></surname>
<given-names><![CDATA[Rebeca]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[ESTRADA SÁNCHEZ]]></surname>
<given-names><![CDATA[Javier]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad de Los Andes Facultad de Ciencias Centro Jardín Botánico]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>00</month>
<year>2005</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>00</month>
<year>2005</year>
</pub-date>
<volume>28</volume>
<numero>2</numero>
<fpage>181</fpage>
<lpage>196</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0084-59062005000200002&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0084-59062005000200002&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0084-59062005000200002&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[Commelinaceae, después de Poaceae y Cyperaceae, es la familia de monocotiledóneas con mayor número de malezas de cultivo; entre ellas, algunas especies de Commelina y Tinantia son hospederas de ácaros, royas y virus, como Potato Y potyvirus que afecta a Solanum tuberosum. Se realizó un estudio de la anatomía de los órganos vegetativos de representantes de las especies Commelina obliquay Tinantia erecta que crecen en un cultivo de papas en los Andes de Mérida, para tratar de determinar la existencia de caracteres anatómicos comunes y diferenciales para las especies, así como cuales de estos favorecen su establecimiento en el cultivo y la existencia o no de caracteres que indiquen la presencia de posibles patógenos asociados a ellas. Se encontró que ambas especies poseen hojas anfiestomáticas, con epidermis de células altas, cutícula delgada, mesofilo compacto bien diferenciado, tallos con abundantes raíces adventicias, caracteres éstos que permiten el comportamiento de malezas. Además se notó un contenido aparentemente plasmodial en las células de la vaina vascular que podría estar asociado a la presencia de patógenos.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[Commelinaceae is, after Poaceae and Cyperaceae, the family of monocotiledons with the greatest number of weeds associated to cultures; among them, some species of Commelina and Tinantia are host for acarus, rust and virus, like the Potato Y potyvirus that affects Solanum tuberosum. In the Andes of Mérida, Commelina obliqua and Tinantia erecta grow like weeds in cultivation of potato. To try to determine the existence of common and differential anatomical characters among them, as well as which anatomical characters favor its establishment in the cultivation, and the existence or not of characters that indicate the presence of possible pathogenic agents associated to them, the anatomy of its vegetative organs was carried out. Both species have amphistomatic leaves, tall epidermical cells , thin cuticle; compact and well defined mesophyll; stem showing abundant adventitious roots; all of those being characters that permit the weed condition. In addition, the parenchyma cells of the leaves sheath seem to be filled with a plasmodium, suggesting infection by pathogens.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Commelinaceae]]></kwd>
<kwd lng="es"><![CDATA[Commelina obliqua]]></kwd>
<kwd lng="es"><![CDATA[Tinantia erecta]]></kwd>
<kwd lng="es"><![CDATA[Solanum tuberosum]]></kwd>
<kwd lng="es"><![CDATA[Anatomía]]></kwd>
<kwd lng="es"><![CDATA[Malezas de cultivo]]></kwd>
<kwd lng="en"><![CDATA[Commelinaceae]]></kwd>
<kwd lng="en"><![CDATA[Commelina obliqua]]></kwd>
<kwd lng="en"><![CDATA[Tinantia erecta]]></kwd>
<kwd lng="en"><![CDATA[Solanum tuberosum]]></kwd>
<kwd lng="en"><![CDATA[Anatomy]]></kwd>
<kwd lng="en"><![CDATA[Weeds]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[   <B>    <P ALIGN="center"><font face="Verdana">ANATOM&Iacute;A DE COMMELINACEAE PRESENTES EN UN CULTIVO DE PAPAS (<I>SOLANUM TUBEROSUM</I>L.) EN M&Eacute;RIDA, VENEZUELA</font></P>     <P ALIGN="center"><font face="Verdana">Anatomy of Commelinaceae present in a culture of potatoes (<I>Solanum tuberosum </I>L.) in Merida, Venezuela</font></P>     <P ALIGN="center"><font size="2" face="Verdana">Rebeca LUQUE ARIAS<SUP>1</SUP> y Javier ESTRADA S&Aacute;NCHEZ</font><SUP><font size="2" face="Verdana">2</font></P> </SUP> </B><SUP>    <P ALIGN="center"><font size="2" face="Verdana">1-2</font></SUP><font size="2" face="Verdana"> Centro Jard&iacute;n Bot&aacute;nico, Facultad de Ciencias ULA, M&eacute;rida, Venezuela</font><SUP><font size="2" face="Verdana"> </font></SUP></P>     <P ALIGN="center"><SUP><font size="2" face="Verdana">1</font></SUP><font size="2" face="Verdana"> rebecal@ula.ve</font><SUP><font size="2" face="Verdana"> </font></SUP></P>     <P ALIGN="center"><SUP><font size="2" face="Verdana">2</font></SUP><font size="2" face="Verdana"> jestr@ula.v</font></P> <B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">RESUMEN</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Commelinaceae, despu&eacute;s de Poaceae y Cyperaceae, es la familia de monocotiled&oacute;neas con mayor n&uacute;mero de malezas de cultivo; entre ellas, algunas especies de <I>Commelina </I>y <I>Tinantia </I>son hospederas de &aacute;caros, royas y virus, como <I>Potato Y potyvirus </I>que afecta a <I>Solanum tuberosum</I>. Se realiz&oacute; un estudio de la anatom&iacute;a de los &oacute;rganos vegetativos de representantes de las especies <I>Commelina obliqua</I>y <I>Tinantia erecta </I>que crecen en un cultivo de papas en los Andes de M&eacute;rida, para tratar de determinar la existencia de caracteres anat&oacute;micos comunes y diferenciales para las especies, as&iacute; como cuales de estos favorecen su establecimiento en el cultivo y la existencia o no de caracteres que indiquen la presencia de posibles pat&oacute;genos asociados a ellas. Se encontr&oacute; que ambas especies poseen hojas anfiestom&aacute;ticas, con epidermis de c&eacute;lulas altas, cut&iacute;cula delgada, mesofilo compacto bien diferenciado, tallos con abundantes ra&iacute;ces adventicias, caracteres &eacute;stos que permiten el comportamiento de malezas. Adem&aacute;s se not&oacute; un contenido aparentemente plasmodial en las c&eacute;lulas de la vaina vascular que podr&iacute;a estar asociado a la presencia de pat&oacute;genos.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">Palabras clave: </font> </B> <font size="2" face="Verdana">Commelinaceae, <I>Commelina obliqua, Tinantia erecta, Solanum tuberosum, </I>Anatom&iacute;a, Malezas de cultivo</font></P> <B>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">ABSTRACT</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Commelinaceae is, after Poaceae and Cyperaceae, the family of monocotiledons with the greatest number of weeds associated to cultures; among them, some species of <I>Commelina </I>and <I>Tinantia </I>are host for acarus, rust and virus, like the <I>Potato Y potyvirus </I>that affects <I>Solanum tuberosum</I>. In the Andes of M&eacute;rida, <I>Commelina obliqua </I>and <I>Tinantia erecta </I>grow like weeds in cultivation of potato. To try to determine the existence of common and differential anatomical characters among them, as well as which anatomical characters favor its establishment in the cultivation, and the existence or not of characters that indicate the presence of possible pathogenic agents associated to them, the anatomy of its vegetative organs was carried out. Both species have amphistomatic leaves, tall epidermical cells , thin cuticle; compact and well defined mesophyll; stem showing abundant adventitious roots; all of those being characters that permit the weed condition. In addition, the parenchyma cells of the leaves sheath seem to be filled with a plasmodium, suggesting infection by pathogens.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana"><font size="2">Key words: </font> </font> </B><font face="Verdana"><font size="2">Commelinaceae, <I>Commelina obliqua, Tinantia erecta, Solanum tuberosum,</I> Anatomy,Weeds</font></font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">INTRODUCCI&Oacute;N</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Commelinaceae es una familia con alrededor de 40 g&eacute;neros y 1.000 especies, de distribuci&oacute;n principalmente pantropical con algunos representantes de zonas de climas templados; consiste de hierbas perennes com&uacute;nmente rizomatosas y suculentas aunque algunas especies de <I>Tinantia </I>Scheidw. y <I>Commelina </I>L. son consideradas anuales (Tomlinson 1969). Anat&oacute;micamente la familia presenta caracteres propios que hacen que se considere como un grupo natural y aislado, siendo dif&iacute;cil sugerir relaciones entre Commelinaceae y cualquier otra familia de monocotiled&oacute;neas. Despu&eacute;s de Poaceae y Cyperaceae es considerada la familia de monocotiled&oacute;neas con el mayor n&uacute;mero de malezas de cultivo; representantes de los g&eacute;neros <I>Commelina </I>y <I>Tinantia </I>se han caracterizado como malezas ruderales de hoja ancha y levemente nocivas, siendo consideradas como organismos &quot;r&quot; (Al&aacute;n <I>et al. </I>1995) que ocupan estados tempranos de la sucesi&oacute;n. A pesar de ser plantas medianamente invasoras, algunas caracter&iacute;sticas las hacen nocivas a los cultivos. As&iacute;, <I>Commelina diffusa </I>Burm.f. es hospedera del &aacute;caro <I>Tetranychus urticae </I>Koch que ataca cultivos de ajo, apio, frijol, cebolla, tomate, plantas ornamentales, etc. Tambi&eacute;n esta especie es hospedera de enfermedades causadas por royas y virus. <I>Tinantia erecta </I>(Jacq.) Schlecht. es susceptible a numerosos virus entre los que se encuentra el <I>Potato Y potyvirus </I>que afecta a <I>Solanum tuberosum </I>L. (Brunt <I>et al. </I>1996).</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">En los Andes de M&eacute;rida, representantes de los g&eacute;neros <I>Commelina </I>y <I>Tinantia </I>crecen en terrenos limpios que son destinados a la siembra de cultivos de papas (<I>Solanum tuberosum</I>) como es el caso de una parcela en la Estaci&oacute;n Experimental de Santa Rosa del Instituto de Investigaciones Agropecuarias de la Universidad de Los Andes (IIAP-ULA), M&eacute;rida.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">El presente trabajo tiene como objetivo principal realizar un estudio de la anatom&iacute;a de los &oacute;rganos vegetativos de representantes de las especies <I>Commelina obliqua</I>Vahl y <I>Tinantia erecta </I>(Jacq.) Schldl. que crecen en un cultivo de papas (<I>Solanum tuberosum</I>) para tratar de determinar la existencia de caracteres anat&oacute;micos comunes y diferenciales para las especies, as&iacute; como caracteres anat&oacute;micos que favorecen su establecimiento en el cultivo y tratar de determinar la existencia o no de caracteres que indiquen la presencia de posibles agentes pat&oacute;genos asociados a ellas.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">MATERIALES Y M&Eacute;TODOS</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">En la Estaci&oacute;n Experimental de Santa Rosa del Instituto de Investigaciones Agropecuarias de la Universidad de los Andes (IIA-ULA) se colect&oacute; material de la parte a&eacute;rea as&iacute; como de la subterr&aacute;nea de plantas adultas de <I>Commelina oblicua </I>Vahl (<I>Estrada J. &amp; R. Luque 1022</I>) y <I>Tinantia erecta </I>(Jacq.) Schldl (<I>Estrada, J. &amp; R. Luque 1021</I>).</font></P> <FONT FACE="Verdana">    <P ALIGN="JUSTIFY"><font size="2">VENEZUELA. <B>M&Eacute;RIDA</B>: Estaci&oacute;n Experimental de Santa Rosa (IIAPULA) en un cultivo de papas (<I>Solanum tuberosum </I>L.). 1.920 m snm, 8°35’Lat. N, 71°8’ Long. O. 18-VII-2001; <I>Estrada, J. &amp; R. Luque 1021 y 1022 </I>[MERC]. Las muestras est&aacute;n depositadas en el Herbario MERC.</font></FONT></P>     ]]></body>
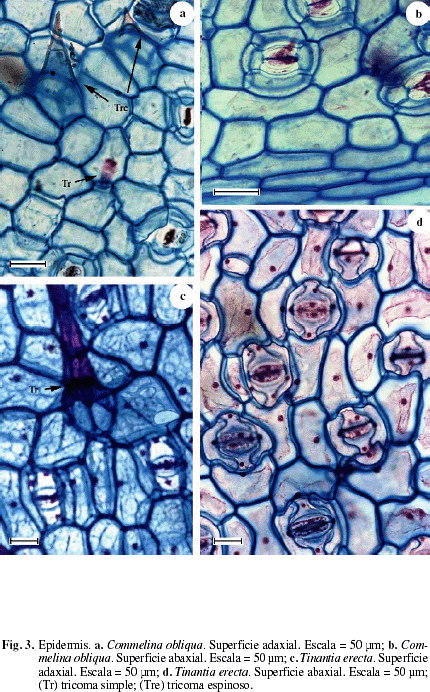
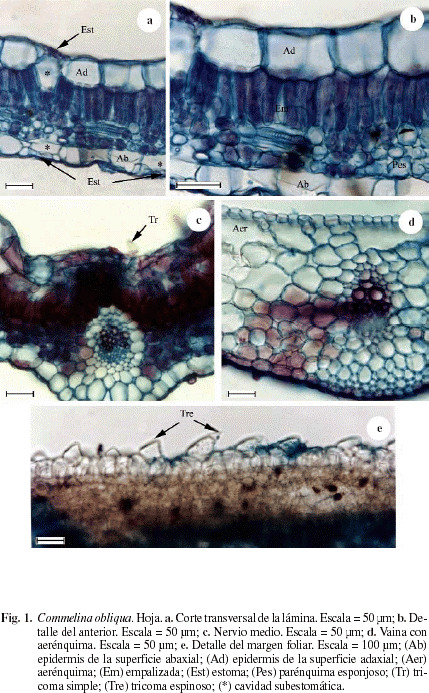
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">El &aacute;rea en que se emplaza el cultivo pertenece a la zona de bosque h&uacute;medo altimontano, aunque se encuentra fuertemente intervenida por la actividad agropecuaria. El suelo alrededor de la estaci&oacute;n est&aacute; clasificado como Humitropepts t&iacute;pico, franco grueso con estructura franco-arenosa; con pH entre 6,45-5,60. Los promedios de temperaturas m&aacute;ximas y m&iacute;nimas en el per&iacute;odo de 1985-2000 son de 22,2°C y 12,2°C respectivamente, lo que supone un rango de variaci&oacute;n de 10°C y una temperatura media anual de 17,1°C; la precipitaci&oacute;n media anual se sit&uacute;a en torno a los 2.000 mm en un patr&oacute;n bimodal con dos per&iacute;odos de altas precipitaciones, uno de abril a junio y el otro de septiembre a noviembre (Jaimez <I>et al. </I>2001).</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Para el estudio anat&oacute;mico el material se fij&oacute; en FAA seg&uacute;n Johansen (1940). Del material fijado se prepararon cortes histol&oacute;gicos a mano alzada y con micr&oacute;tomo. Los cortes a mano fueron aclarados en soluci&oacute;n de cloro comercial al 10% por 1 min, lavados en agua, colocados en &aacute;cido ac&eacute;tico 1% y te&ntilde;idos con la doble tinci&oacute;n azul de astra-fucsina b&aacute;sica (Kraus <I>et al. </I>1998). Para la obtenci&oacute;n de los cortes con micr&oacute;tomo se deshidrat&oacute; el material en una serie but&iacute;lica (Johansen 1940) con inclusi&oacute;n en parafina (Sass 1951) y posteriormente se cort&oacute; con micr&oacute;tomo rotativo. Los cortes fueron te&ntilde;idos con la doble tinci&oacute;n azul de astra-fucsina b&aacute;sica (Luque <I>et al. </I>1996).</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Se examin&oacute; y fotografi&oacute; el material con un microscopio Zeiss Axioscop 20.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">RESULTADOS&#9;</font>&#9;</P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Hoja</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">La <a href="#f1">figura 1a,b</a> muestra un corte transversal de la hoja de <I>Commelina oblicua </I>en las que se observa la epidermis de las superficies adaxial y abaxial de una capa de c&eacute;lulas. Epidermis de la superficie adaxial formada por c&eacute;lulas cuadradas a rectangulares cuya altura es equivalente a 1/2 del espesor del mesofilo; en vista paradermal las c&eacute;lulas son poli&eacute;dricas con las paredes delgadas, rectas a ligeramente onduladas (<a href="#f3">Fig. 3b</a>), tricomas simples (<a href="#f1">Fig. 1c</a>); cut&iacute;cula y estratos cuniculares finos. Epidermis abaxial formada por c&eacute;lulas rectangulares cuya altura es equivalente de 1/4 a 1/3 del espesor del mesofilo; en vista paradermal las c&eacute;lulas son poli&eacute;dricas con las paredes delgadas, rectas a ligeramente onduladas, distingui&eacute;ndose tricomas bicelulares espinosos y tricomas simples (<a href="#f3">Fig. 3a</a>), en el borde de la l&aacute;mina se observan tricomas bicelulares espinosos (<a href="#f1">Fig. 1e</a>); ambas superficies son muy similares. Hoja anfiestom&aacute;tica, en ambas superficies estomas con distribuci&oacute;n difusa y con cuatro c&eacute;lulas subsidiarias; c&aacute;mara subestom&aacute;tica profunda (<a href="#f1">Fig. 1a</a>). Mesofilo bifacial. Empalizada de una capa de c&eacute;lulas que ocupa aproximadamente 1/2 del espesor del mesofilo. Par&eacute;nquima esponjoso compacto de tres a cuatro capas de c&eacute;lulas (<a href="#f1">Fig. 1b</a>). Haces colaterales rodeados por una vaina parenquim&aacute;tica simple sin extensiones epid&eacute;rmicas. Nervio medio poco diferenciado formado por un solo haz vascular (<a href="#f1">Fig. 1c</a>). Vaina foliar con epidermis de una sola capa de c&eacute;lulas hacia ambas superficies, con estomas. Hacia la superficie adaxial se observa un aer&eacute;nquima hipod&eacute;rmico (<a href="#f1">Fig. 1d</a>). Haces vasculares colaterales con una vaina vascular parenquim&aacute;tica simple.</font></P>     <P ALIGN="center"><a name="f1"> <img border="0" src="/img/fbpe/abv/v28n2/art02img01.gif" width="429" height="693"></a></P>     
<P ALIGN="center"><a name="f3"> <img border="0" src="/img/fbpe/abv/v28n2/art02img03.gif" width="430" height="692"></a></P>     
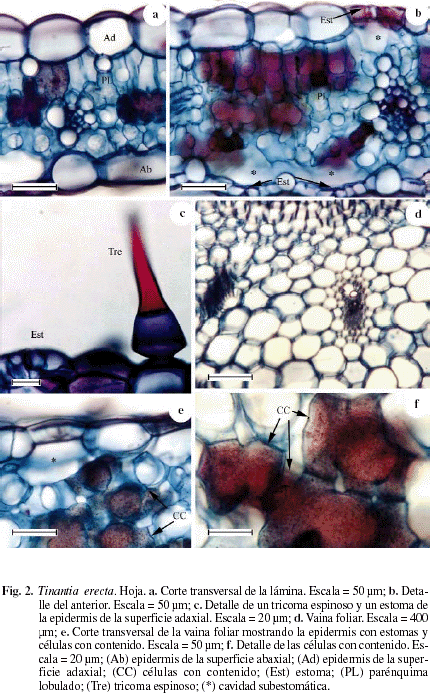
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">La <a href="#f2">Figura 2</a> representa el corte transversal de la hoja de <I>Tinantia erecta </I>en las que se observa la epidermis de las superficies adaxial y abaxial de una capa de c&eacute;lulas. Epidermis de la superficie adaxial formada por c&eacute;lulas cuadradas a rectangulares en corte transversal, con las paredes periclinales externas e internas un poco convexas (<a href="#f2">Fig. 2a, b</a>) y cuya altura corresponde aproximadamente a 1/2 del espesor del mesofilo; en vista paradermal las c&eacute;lulas son poli&eacute;dricas con las paredes ligeramente onduladas (<a href="#f3">Fig. 3c</a>), tricomas simples y tricomas bicelulares espinosos (<a href="#f2">Fig. 2c</a>). Epidermis de la superficie abaxial formada por c&eacute;lulas cuadradas a rectangulares en corte transversal y cuya altura corresponde a aproximadamente 1/3 del espesor del mesofilo; en vista paradermal las c&eacute;lulas son poli&eacute;dricas con las paredes onduladas (<a href="#f3">Fig. 3d</a>). Hojas anfiestom&aacute;ticas con una mayor densidad de estomas en la superficie abaxial. Estomas de la superficie adaxial rodeados de 4 c&eacute;lulas subsidiarias (<a href="#f3">Fig. 3c</a>) y los de la superficie abaxial rodeados por 6 c&eacute;lulas subsidiarias (<a href="#f3">Fig. 3d</a>). Cavidad subestom&aacute;tica amplia (<a href="#f2">Fig. 2b</a>). Mesofilo bifacial. Empalizada de 1-2 capas de c&eacute;lulas parenquim&aacute;ticas lobuladas en forma de H (<a href="#f2">Fig. 2a, b</a>), se observan c&eacute;lulas que se ti&ntilde;en m&aacute;s intensamente posiblemente por la presencia de sustancias fen&oacute;licas. Par&eacute;nquima esponjoso de 2-3 capas de c&eacute;lulas lobuladas. Haces vasculares colaterales rodeados por una vaina parenquim&aacute;tica simple, en el haz vascular se observa que la vaina vascular se prolonga hasta el l&iacute;mite de la c&aacute;mara subestom&aacute;tica adaxial y abaxial (<a href="#f2">Fig. 2b</a>). Aunque no se encuentra representado, el nervio medio es poco diferenciado y est&aacute; formado por un solo haz vascular. Vaina foliar (<a href="#f2">Fig. 2d-f</a>) con epidermis de una capa de c&eacute;lulas con estomas, con la cavidad subestom&aacute;tica amplia (<a href="#f2">Fig. 2e</a>), en su parte central parenquim&aacute;tica con los haces colaterales; hacia la periferia se observan c&eacute;lulas lobuladas y en el interior de algunas de ellas un contenido denso que podr&iacute;an corresponder a plasmodios (<a href="#f2">Fig. 2e, f</a>).</font></P>     <P ALIGN="center"><a name="f2"> <img border="0" src="/img/fbpe/abv/v28n2/art02img02.gif" width="430" height="693"></a></P> <B>    
]]></body>
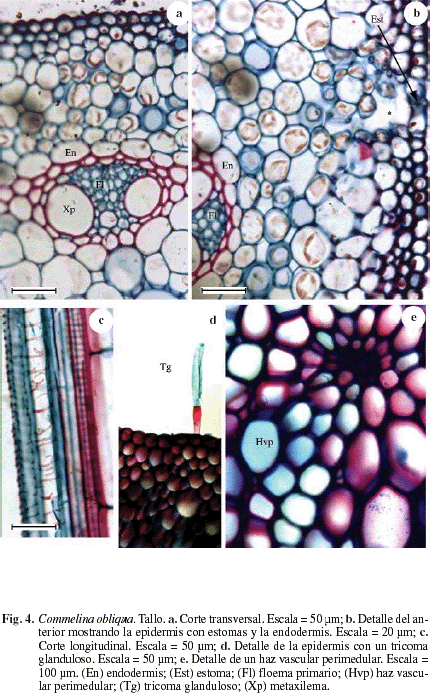
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Tallo</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">En la secci&oacute;n transversal del tallo de <I>Commelina obliqua </I>(<a href="#f4">Fig. 4a, b</a>) se observa la epidermis de una capa de c&eacute;lulas m&aacute;s o menos cuadradas a el&iacute;pticas con tricomas simples y glandulosos (<a href="#f4">Fig. 4d</a>) y estomas (<a href="#f4">Fig. 4b</a>). La corteza est&aacute; formada por una regi&oacute;n externa de 1-2 capas de c&eacute;lulas colenquim&aacute;ticas, seguida por 6-8 capas de c&eacute;lulas parenquim&aacute;ticas. El l&iacute;mite interno de la corteza est&aacute; formado por una endodermis de c&eacute;lulas hialinas grandes (<a href="#f4">Fig. 4a, b</a>). Haces vasculares perif&eacute;ricos (<a href="#f4">Fig. 4a, b</a>) y perimedulares (<a href="#f4">Fig. 4e</a>) con una vaina vascular esclerenquim&aacute;tica simple. En la <a href="#f4">Figura 4a</a> se observa un haz vascular perif&eacute;rico con dos grandes vasos del metaxilema y el floema primario. La <a href="#f4">Figura 4c</a> representa el corte longitudinal del tallo mostrando elementos de vaso anillados y espiralados.</font></P>     <P ALIGN="center"><a name="f4"> <img border="0" src="/img/fbpe/abv/v28n2/art02img04.gif" width="430" height="694"></a></P>     
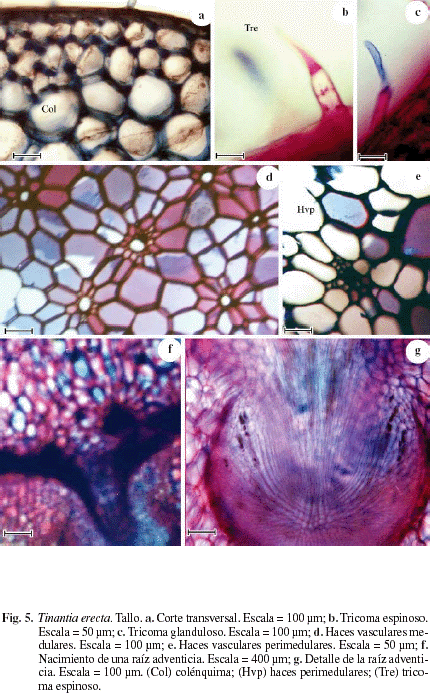
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">La <a href="#f5">Figura 5</a> representa el corte transversal del tallo de <I>Tinantia erecta </I>donde se observa una epidermis de una capa de c&eacute;lulas de paredes gruesas, con estomas y tricomas espinosos (<a href="#f5">Fig. 5b</a>) y glandulosos (<a href="#f5">Fig. 5c</a>). La corteza est&aacute; formada por una hipodermis colenquim&aacute;tica de 3-4 capas de c&eacute;lulas (<a href="#f5">Fig. 5a</a>), corteza parenquim&aacute;tica muy amplia. Haces vasculares medulares (<a href="#f5">Fig. 5d</a>) y perimedulares (<a href="#f5">Fig. 5e</a>). Se observan c&eacute;lulas con rafidios. Las <a href="#f5">figuras 5f, g</a> representan la salida de una ra&iacute;z adventicia.</font></P>     <P ALIGN="center"><a name="f5"> <img border="0" src="/img/fbpe/abv/v28n2/art02img05.gif" width="430" height="693"></a></P> <B>    
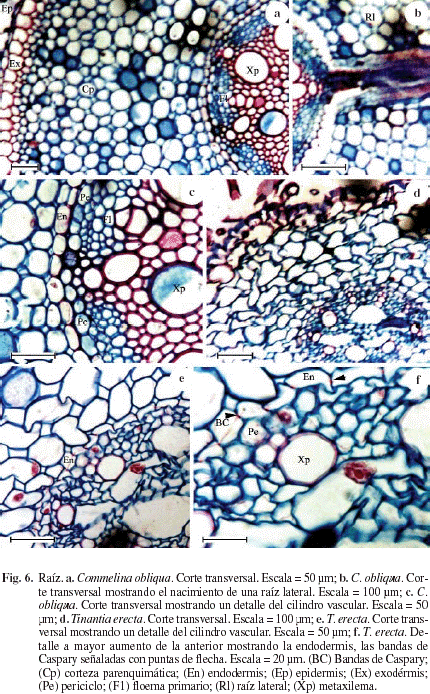
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Ra&iacute;z</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Las <a href="#f6">Figuras 6a, c</a> representan la secci&oacute;n transversal de la ra&iacute;z de <I>Commelina obliqua </I>mostrando la epidermis de c&eacute;lulas peque&ntilde;as, persistentes, internamente se diferencia la exodermis de 1-2 capas de c&eacute;lulas con paredes engrosadas, m&aacute;s grandes las externas (<a href="#f6">Fig. 6a</a>); la corteza parenquim&aacute;tica es amplia (<a href="#f6">Fig. 6a</a>) e internamente se diferencia la endodermis con bandas de Caspary (<a href="#f6">Fig. 6c</a>); aunque no se encuentra representado, cuando la ra&iacute;z alcanza un mayor desarrollo, las c&eacute;lulas de la endodermis pueden presentar engrosamientos en forma de U en sus paredes. El cilindro vascular est&aacute; formado por un periciclo de c&eacute;lulas parenquim&aacute;ticas (<a href="#f6">Fig. 6c</a>), una estela que puede variar en el n&uacute;mero de polos de protoxilema; en la <a href="#f6">Figura 6c</a> se representa una poliarca con grandes vasos del metaxilema y los polos del floema primario alternando. La <a href="#f6">Figura 6b</a> muestra la salida de una ra&iacute;z lateral.</font></P>     <P ALIGN="center"><a name="f6"> <img border="0" src="/img/fbpe/abv/v28n2/art02img06.gif" width="430" height="694"></a></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Las <a href="#f6">Figuras 6d, f</a> representan la secci&oacute;n transversal de la ra&iacute;z de <I>Tinantia erecta </I>mostrando la epidermis de una capa de c&eacute;lulas persistente con pelos radicales (<a href="#f6">Fig. 6d</a>); internamente se diferencia la exodermis con c&eacute;lulas de paredes algo engrosadas, corteza parenquim&aacute;tica amplia e internamente diferenciada la endodermis (<a href="#f6">Fig. 6e, f</a>) con bandas de Caspary (<a href="#f6">Fig. 6f</a>); aunque no se encuentra representado, cuando la ra&iacute;z alcanza un mayor desarrollo, las c&eacute;lulas de la endodermos pueden presentar engrosamientos en forma de U en sus paredes. El cilindro vascular est&aacute; formado por un periciclo de c&eacute;lulas parenquim&aacute;ticas (<a href="#f6">Fig. 6f</a>), una estela poliarca donde se observan grandes vasos del metaxilema y los polos del floema primario alternando.</font></P> <B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">DISCUSI&Oacute;N</font></P> </B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Las plantas estudiadas son herb&aacute;ceas con los ejes construidos en nudos y entrenudos. <I>Commelina obliqua </I>presenta tallos decumbentes con entrenudos largos, mientras que <I>Tinantia erecta </I>presenta largos tallos erectos. Para Commelinaceae los representantes m&aacute;s especializados son aquellos que poseen una dorsiventralidad fija. El reemplazo de la simetr&iacute;a radial por la dorsiventral parece haber tenido un origen filogen&eacute;tico pero tambi&eacute;n puede ocurrir ontogen&eacute;ticamente (Clark en Tomlinson 1969).</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Anat&oacute;micamente los &oacute;rganos vegetativos de las especies estudiadas presentan ciertos caracteres comunes:</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">1. Hojas de consistencia membran&aacute;cea, dorsiventrales; cut&iacute;cula delgada, epidermis de una capa de c&eacute;lulas en ambas superficies, formadas por c&eacute;lulas altas, car&aacute;cter &eacute;ste considerado como una adaptaci&oacute;n a los ambientes abiertos con alta radiaci&oacute;n solar; seg&uacute;n Solereder &amp; Meyer (en Tomlinson 1969), la epidermis de c&eacute;lulas altas grandes puede funcionar como un tejido reservante de agua, sin embargo, en este trabajo se consider&oacute; que estas c&eacute;lulas epid&eacute;rmicas altas podr&iacute;an estar funcionando como un filtro para el exceso de radiaci&oacute;n.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">2. Hojas anfiestom&aacute;ticas, car&aacute;cter que probablemente puede tener relaci&oacute;n con la alta radiaci&oacute;n que produce un cierto tipo de xeromorfismo. Fahn &amp; Cutler (1992) muestran que hojas anfiestom&aacute;ticas se presentan en 51% de las especies con caracteres xerom&oacute;rficos estudiadas por ellos. Parkhust (1978), utilizando modelos para correlacionar hojas anfi e hipostom&aacute;ticas con factores de ambientes x&eacute;ricos, m&eacute;sicos e hidrof&iacute;ticos, observ&oacute; que las hojas anfiestom&aacute;ticas tendr&iacute;an un mejor desempe&ntilde;o fotosint&eacute;tico. Mott <I>et al. </I>(1982) y Mott &amp; Michaelson (1991) comprobaron que la presencia de estomas en ambas superficies est&aacute; relacionada con altas intensidades de luz, lo cual podr&iacute;a explicar la presencia de hojas anfiestom&aacute;ticas en las especies estudiadas que crecen en las primeras etapas de sucesi&oacute;n de cultivo con alta radiaci&oacute;n solar.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">3. Estomas con distribuci&oacute;n difusa, car&aacute;cter variable para la familia.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">4. Cavidad subestom&aacute;tica amplia, es un car&aacute;cter com&uacute;n para representantes de la familia debido principalmente a la situaci&oacute;n de los estomas con respecto a las restantes c&eacute;lulas epid&eacute;rmicas.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">5. Tricomas tectores espinosos y glandulosos t&iacute;picos, de representantes de la familia.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">6. Mesofilo compacto, empalizada de 1-2 capas de c&eacute;lulas, tambi&eacute;n podr&iacute;a considerarse como una adaptaci&oacute;n a la alta radiaci&oacute;n a la cual est&aacute;n sometidas las plantas estudiadas.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">7. Haces vasculares colaterales rodeados por una vaina parenquim&aacute;tica simple. Nervio medio poco pronunciado formado por un haz vascular colateral, caracteres t&iacute;picos de la familia.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">8. Tallos de contorno redondeado. Epidermis de una capa de c&eacute;lulas con estomas y tricomas tectores y glandulosos. Corteza externa colenquim&aacute;tica, y la media parenquim&aacute;tica, diferenci&aacute;ndose internamente la endodermis de c&eacute;lulas grandes hialinas.</font></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">La presencia de una endodermis diferenciada en los tallos y otros &oacute;rganos de la planta es un car&aacute;cter que ha despertado pol&eacute;mica entre los investigadores; as&iacute;, seg&uacute;n Van Fleet (1961), la endodermis puede presentarse en todos los &oacute;rganos de la planta y el desarrollo de bandas de Caspary est&aacute; sujeto a factores ambientales tales como la radiaci&oacute;n. Dicho autor demuestra que tallos sometidos a per&iacute;odos de oscuridad desarrollan una endodermis en la que se observa bandas de Caspary, mientras que tallos de la misma especie que crecen en ambientes iluminados no desarrollan endodermis conspicua con bandas de Caspary. Sin embargo, seg&uacute;n Beck <I>et al. </I>(1982) la mayor&iacute;a de las veces la endodermis y el periciclo est&aacute;n ausentes del tallo de las plantas con semilla. Lo encontrado en las especies estudiadas concuerda con las ideas de Van Fleet en el sentido de que no se observan bandas de Caspary ya que las plantas estudiadas crecen en condiciones de alta radiaci&oacute;n, por lo que los autores del presente trabajo consideran que no es conveniente denominar a esta capa como <I>endodermoide </I>(como es llamada por Tomlinson 1969) ya que podr&iacute;a tratarse de una endodermis propiamente dicha.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">9. Ra&iacute;ces adventicias que parten del tallo. Ra&iacute;z con epidermis persistente, exodermis bien diferenciada con paredes engrosadas, corteza parenquim&aacute;tica amplia e internamente se diferencia la endodermis, que en sus estados juveniles muestra claramente las bandas de Caspary y en estados posteriores del desarrollo el engrosamiento en forma de U, el periciclo es parenquim&aacute;tico y la estela con un n&uacute;mero variable de polos de protoxilema. En algunas ra&iacute;ces la porci&oacute;n central puede estar ocupada por un elemento de vaso xilem&aacute;tico grande. La mayor&iacute;a de estos caracteres son comunes para la familia.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Presentan tambi&eacute;n caracteres diferenciales para cada especie:</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">1. En <I>Commelina obliqua </I>la hoja presenta la epidermis de ambas superficies formada por c&eacute;lulas con paredes rectas a  ligeramente onduladas; en <I>Tinantia erecta </I>las c&eacute;lulas de la epidermis de ambas superficies son onduladas, car&aacute;cter que podr&iacute;a darle a la hoja una mayor resistencia ya que esta especie crece m&aacute;s erguida mientras que <I>C. obliqua </I>crece postrada.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">2. Estomas en <I>C. obliqua </I>presentan 4 c&eacute;lulas subsidiarias en ambas superficies, en <I>T. erecta </I>los estomas de la epidermis de la superficie adaxial poseen 4 c&eacute;lulas subsidiarias mientras que en la superficie abaxial 6 c&eacute;lulas subsidiarias. El desarrollo de los estomas en estas especies debe ser estudiado con un mayor detalle ya que seg&uacute;n Tomlinson (1969) el n&uacute;mero de c&eacute;lulas subsidiarias es un car&aacute;cter fijo para muchos g&eacute;neros de Commelinaceae, entre &eacute;stos <I>Commelina </I>y <I>Tinantia </I>y las observaciones presentadas en este trabajo no coinciden con lo expuesto con ese autor, mucho menos la diferencia entre la epidermis de las superficies adaxial y abaxial de <I>T. erecta</I>.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">3. Par&eacute;nquima de empalizada con c&eacute;lulas de forma alargada en <I>C. oblicua </I>y lobadas en forma de H en <I>T. erecta</I>; seg&uacute;n Haberlandt (1914), la presencia de par&eacute;nquima clorof&iacute;lico en forma de H aparece espor&aacute;dicamente en los diferentes grupos de plantas vasculares, en dicotiled&oacute;neas aparece principalmente en Ranunculaceae pero tambi&eacute;n en otros grupos, en monocotiled&oacute;neas en <I>Bambusa, Calamagrostis, </I>etc. Posiblemente la forma lobada puede ser considerada como una estrategia para la translocaci&oacute;n de sustancias en el mesofilo.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">La relaci&oacute;n del tejido epid&eacute;rmico con el mesofilo debe ser estudiada con mayor detalle en estas especies. Seg&uacute;n Lee &amp; Bowling (1992), la apertura y cierre de los estomas en <I>Commelina communis </I>est&aacute; influenciada por una sustancia que se produce en el mesofilo de la hoja en presencia de luz pero no en la oscuridad y esta sustancia es producto de la fotos&iacute;ntesis. Es posible que relaciones similares puedan presentarse en las especies aqu&iacute; estudiadas y que la diferencia en la morfolog&iacute;a celular pueda ser explicada con base en procesos fisiol&oacute;gicos.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">La presencia de c&eacute;lulas con sustancias fen&oacute;licas es un car&aacute;cter com&uacute;n en Commelinaceae y puede estar representando un mecanismo de protecci&oacute;n contra herbivor&iacute;a.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Un car&aacute;cter importante observado en la vaina foliar de <I>T. erecta </I>es la presencia de c&eacute;lulas con un contenido en su citoplasma que tiene la apariencia de ser una infecci&oacute;n causada por un plasmodio u otro organismo. Para diferentes especies de la familia se ha indicado su car&aacute;cter como hospederas de enfermedades e infecciones de otros cultivos, entre ellos papa, como es el caso registrado por Brunt <I>et al.</I>(1996), quienes indican la susceptibilidad de <I>T. erecta </I>al ataque de diferentes virus. Debido a ello es probable que estas c&eacute;lulas puedan estar relacionadas con una posible infecci&oacute;n que afecte al cultivo en el que se encuentren.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">En el tallo la principal diferencia entre las dos especies es el tipo de arreglo de los haces vasculares. <I>C. obliqua </I>presenta haces vasculares perif&eacute;ricos y perimedulares mientras que <I>T. erecta </I>presenta haces perimedulares y medulares.</font></P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">CONCLUSIONES</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Las especies estudiadas presentan, en sus &oacute;rganos vegetativos, caracteres anat&oacute;micos que les permiten mostrar un comportamiento como malezas, esto es, hojas con epidermis de c&eacute;lulas altas cubiertas por una cut&iacute;cula delgada y con tricomas, estomas en ambas superficies, mesofilo compacto con clor&eacute;nquima bien diferenciado, caracter&iacute;sticas &eacute;stas que les permiten la colonizaci&oacute;n en ambientes abiertos como son los estados tempranos de la sucesi&oacute;n de cultivos.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">La formaci&oacute;n de abundantes ra&iacute;ces adventicias a partir de los tallos permite una r&aacute;pida propagaci&oacute;n vegetativa, lo que favorece su establecimiento en los cultivos.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">La presencia de c&eacute;lulas con un contenido, aparentemente producto de una infecci&oacute;n, puede estar indicando el papel de hospedero de enfermedades de cultivo que numerosos autores registran para diferentes representantes de la familia.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Se recomienda continuar con estudios fisiol&oacute;gicos en estas especies para determinar las relaciones mesofilo-epidermis foliar y determinar que tipo de organismos est&aacute; ocupando las c&eacute;lulas aparentemente infectadas.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">AGRADECIMIENTOS</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Este trabajo se realiz&oacute; en el Laboratorio de Anatom&iacute;a Vegetal del Centro Jard&iacute;n Bot&aacute;nico de la Facultad de Ciencias de la Universidad de Los Andes. Los autores quieren agradecer a la Lic. Josefina Peraza por la elaboraci&oacute;n de los cortes histol&oacute;gicos, al IIAP-ULA por facilitar la colecta en el cultivo de papas, al Prof. Ram&oacute;n Jaimez por la colaboraci&oacute;n con los datos de campo.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">BIBLIOGRAF&Iacute;A</font></P> </B>    <!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">1. Al&aacute;n, E., U. Barrantes, A. Soto &amp; R. Ag&uuml;ero. 1995. <I>Elementos para el manejo de malezas en agrosistemas tropicales. </I>Editorial Tecnol&oacute;gica de Costa Rica.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013874&pid=S0084-5906200500020000200001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">2. Beck, C.H., R. Schmid &amp; G.W. Rothwell. 1982. Stelar morphology and the primary vascular system of seed plants. <I>Bot. Rev. </I>48: 691-815.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013875&pid=S0084-5906200500020000200002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">3. Brunt, A.A., K. Crabtree, M.J. Dallwitz, A.J. Gibbs, L. Watson &amp; E.J. Zurcher (eds.). 1996. <I>Plant Viruses Online: Descriptions and Lists from the VIDE </I>Database. Version: 20th August 1996. URL <span style="text-decoration: none">http://biology.anu</span>. edu.au/Groups/MES/vide/</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013876&pid=S0084-5906200500020000200003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">4. Fahn, A. &amp; D.F. Cutler. 1992. <I>Xerophytes. </I>Encyclopedia of plant anatomy<I>. </I>Vol 13, Part 3, X. Gebr&uuml;der Borntraeger. Berlin, Stuttgart.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013877&pid=S0084-5906200500020000200004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">5. Haberlandt, G. 1914. <I>Physiological Plant Anatomy. </I>Translated from the fourth German edition by Montagu Drummond. London.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013878&pid=S0084-5906200500020000200005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">6. Jaimez, R.E., F. Castro &amp; P. Alizo. 2001. <I>Promedios mensuales de precipitaci&oacute;n, temperatura m&aacute;xima y m&iacute;nima y evaporaci&oacute;n registrados en la estaci&oacute;n climatol&oacute;gica Santa Rosa desde 1967. </I>IIAP-ULA. 6 pp. Mecanografiado.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013879&pid=S0084-5906200500020000200006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">7. Johansen, D.A. 1940. <I>Plant microtechnique. </I>Mc Graw- Hill Book. New York-London.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013880&pid=S0084-5906200500020000200007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">8. Kraus, J.E., H.C. Souza, M.H. Rezende, N.M. Castro, C. Vecchi &amp; R. Luque. 1998. Astra blue and basic fuchsin double staining of plants materials. <I>Biotech. Histochem. </I>73(5): 235-243.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013881&pid=S0084-5906200500020000200008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">9. Lee, J. &amp; D.J.F. Bowling. 1992. Effect of the mesophyll on stomatal opening in <I>Commelina communis. J. Exp. Bot. </I>43(252): 951-957.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013882&pid=S0084-5906200500020000200009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">10. Luque, R., H.C. Souza &amp; J. Krauss. 1996. Estudio comparativo dos m&eacute;todos de colora&ccedil;&atilde;o de R&ouml;eser (1972) modificado e Kropp (1972) visando a subtitu&ccedil;&atilde;o do Azul de Astra por Azul de Alci&atilde;o 8 GS ou 8 GX. <I>Acta Bot. Brasil.</I>10(2): 199-212.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013883&pid=S0084-5906200500020000200010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">11. Mott, K.A. &amp; O. Michaelson. 1991. Amphistomy as an adaptation to high light intensity in <I>Ambrosia cordifolia </I>(Compositae). <I>Amer. J. Bot. </I>78: 76-79.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013884&pid=S0084-5906200500020000200011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">12. Mott, K.A., A.C. Gibson &amp; J.W. O’Leary. 1982. The adaptative significance of amphistomatic leaves. <I>Pl. Cell Environm. </I>5: 455-460.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013885&pid=S0084-5906200500020000200012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">13. Parkhust, D.F. 1978. The adaptative significance of stomatal occurrence of one or both surfaces of leaves. <I>J. Ecol. </I>66: 367-383.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013886&pid=S0084-5906200500020000200013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">14. Sass, J. E. 1951. <I>Botanical microtechnique, 3 Ed. </I>Iowa State College Press.  </font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013887&pid=S0084-5906200500020000200014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">15. Tomlinson, P.B. 1969. <I>Anatomy of the monocotyledons. III Commelinales-Zingiberales </I>(Metcalfe, C.R. ed.). Clarendon Press. Oxford.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013888&pid=S0084-5906200500020000200015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">16. Van Flett, D.S. 1961. Hystochemistry and function of the endodermis. <I>Bot. Rev. </I>27: 165-219.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=013889&pid=S0084-5906200500020000200016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Alán]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Barrantes]]></surname>
<given-names><![CDATA[U]]></given-names>
</name>
<name>
<surname><![CDATA[Soto]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Agüero]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<source><![CDATA[Elementos para el manejo de malezas en agrosistemas tropicales]]></source>
<year>1995</year>
<publisher-name><![CDATA[Editorial Tecnológica de Costa Rica]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Beck]]></surname>
<given-names><![CDATA[C.H]]></given-names>
</name>
<name>
<surname><![CDATA[Schmid]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Rothwell]]></surname>
<given-names><![CDATA[G.W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Stelar morphology and the primary vascular system of seed plants]]></article-title>
<source><![CDATA[Bot. Rev]]></source>
<year>1982</year>
<volume>48</volume>
<page-range>691-815</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Brunt]]></surname>
<given-names><![CDATA[A.A]]></given-names>
</name>
<name>
<surname><![CDATA[Crabtree]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[Dallwitz]]></surname>
<given-names><![CDATA[M.J]]></given-names>
</name>
<name>
<surname><![CDATA[Gibbs]]></surname>
<given-names><![CDATA[A.J]]></given-names>
</name>
<name>
<surname><![CDATA[Watson]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Zurcher]]></surname>
<given-names><![CDATA[E.J]]></given-names>
</name>
</person-group>
<source><![CDATA[Plant Viruses Online: Descriptions and Lists from the VIDE Database]]></source>
<year>1996</year>
</nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Fahn]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Cutler]]></surname>
<given-names><![CDATA[D.F]]></given-names>
</name>
</person-group>
<source><![CDATA[Xerophytes: Encyclopedia of plant anatomy]]></source>
<year>1992</year>
<volume>13</volume>
<publisher-loc><![CDATA[Berlin^eStuttgart Stuttgart]]></publisher-loc>
<publisher-name><![CDATA[Gebrüder Borntraeger]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Haberlandt]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
</person-group>
<source><![CDATA[Physiological Plant Anatomy]]></source>
<year>1914</year>
<publisher-loc><![CDATA[London ]]></publisher-loc>
</nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Jaimez]]></surname>
<given-names><![CDATA[R.E]]></given-names>
</name>
<name>
<surname><![CDATA[Castro]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[Alizo]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<source><![CDATA[Promedios mensuales de precipitación, temperatura máxima y mínima y evaporación registrados en la estación climatológica Santa Rosa desde 1967]]></source>
<year>2001</year>
<page-range>6</page-range><publisher-name><![CDATA[IIAP-ULA]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Johansen]]></surname>
<given-names><![CDATA[D.A]]></given-names>
</name>
</person-group>
<source><![CDATA[Plant microtechnique]]></source>
<year>1940</year>
<publisher-loc><![CDATA[New York-London ]]></publisher-loc>
<publisher-name><![CDATA[Mc Graw- Hill Book]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Kraus]]></surname>
<given-names><![CDATA[J.E]]></given-names>
</name>
<name>
<surname><![CDATA[Souza]]></surname>
<given-names><![CDATA[H.C]]></given-names>
</name>
<name>
<surname><![CDATA[Rezende]]></surname>
<given-names><![CDATA[M.H]]></given-names>
</name>
<name>
<surname><![CDATA[Castro]]></surname>
<given-names><![CDATA[N.M]]></given-names>
</name>
<name>
<surname><![CDATA[Vecchi]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Luque]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Astra blue and basic fuchsin double staining of plants materials]]></article-title>
<source><![CDATA[Biotech. Histochem]]></source>
<year>1998</year>
<volume>73</volume>
<numero>5</numero>
<issue>5</issue>
<page-range>235-243</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lee]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Bowling]]></surname>
<given-names><![CDATA[D.J.F]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effect of the mesophyll on stomatal opening in Commelina communis]]></article-title>
<source><![CDATA[J. Exp. Bot]]></source>
<year>1992</year>
<volume>43</volume>
<numero>252</numero>
<issue>252</issue>
<page-range>951-957</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Luque]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Souza]]></surname>
<given-names><![CDATA[H.C]]></given-names>
</name>
<name>
<surname><![CDATA[Krauss]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Estudio comparativo dos métodos de coloração de Röeser (1972) modificado e Kropp (1972) visando a subtitução do Azul de Astra por Azul de Alcião 8 GS ou 8 GX]]></article-title>
<source><![CDATA[Acta Bot. Brasil]]></source>
<year>1996</year>
<volume>10</volume>
<numero>2</numero>
<issue>2</issue>
<page-range>199-212</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Mott]]></surname>
<given-names><![CDATA[K.A]]></given-names>
</name>
<name>
<surname><![CDATA[Michaelson]]></surname>
<given-names><![CDATA[O]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Amphistomy as an adaptation to high light intensity in Ambrosia cordifolia (Compositae)]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1991</year>
<volume>78</volume>
<page-range>76-79</page-range></nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Mott]]></surname>
<given-names><![CDATA[K.A]]></given-names>
</name>
<name>
<surname><![CDATA[Gibson]]></surname>
<given-names><![CDATA[A.C]]></given-names>
</name>
<name>
<surname><![CDATA[O’Leary]]></surname>
<given-names><![CDATA[J.W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The adaptative significance of amphistomatic leaves]]></article-title>
<source><![CDATA[Pl. Cell Environm]]></source>
<year>1982</year>
<volume>5</volume>
<page-range>455-460</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Parkhust]]></surname>
<given-names><![CDATA[D.F]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The adaptative significance of stomatal occurrence of one or both surfaces of leaves]]></article-title>
<source><![CDATA[J. Ecol]]></source>
<year>1978</year>
<volume>66</volume>
<page-range>367-383</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sass]]></surname>
<given-names><![CDATA[J. E]]></given-names>
</name>
</person-group>
<source><![CDATA[Botanical microtechnique]]></source>
<year>1951</year>
<edition>3</edition>
<publisher-loc><![CDATA[^eIowa Iowa]]></publisher-loc>
<publisher-name><![CDATA[State College Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tomlinson]]></surname>
<given-names><![CDATA[P.B]]></given-names>
</name>
</person-group>
<source><![CDATA[Anatomy of the monocotyledons: III Commelinales-Zingiberales]]></source>
<year>1969</year>
<publisher-loc><![CDATA[Oxford ]]></publisher-loc>
<publisher-name><![CDATA[Clarendon Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Van Flett]]></surname>
<given-names><![CDATA[D.S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Hystochemistry and function of the endodermis]]></article-title>
<source><![CDATA[Bot. Rev]]></source>
<year>1961</year>
<volume>27</volume>
<page-range>165-219</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>