<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0084-5906</journal-id>
<journal-title><![CDATA[Acta Botánica Venezuelica]]></journal-title>
<abbrev-journal-title><![CDATA[Acta Bot. Venez.]]></abbrev-journal-title>
<issn>0084-5906</issn>
<publisher>
<publisher-name><![CDATA[Fundación Instituto Botánico de Venezuela Dr. Tobías Lasser]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0084-59062006000100005</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Biología reproductiva y asignación de biomasa floral en Solanum gardneri Sendth. (Solanaceae): una especie andromonoica]]></article-title>
<article-title xml:lang="en"><![CDATA[Reproductive biology and biomass floral allocation in Solanum gardneri Sendth. (Solanaceae): an andromonoecious species]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[HOKCHE D]]></surname>
<given-names><![CDATA[Omaira]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[RAMÍREZ]]></surname>
<given-names><![CDATA[Nelson]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad Central de Venezuela Jardín Botánico de Caracas Herbario Nacional de Venezuela]]></institution>
<addr-line><![CDATA[Caracas ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A02">
<institution><![CDATA[,Universidad Central de Venezuela Facultad de Ciencias Instituto de Biología Experimental]]></institution>
<addr-line><![CDATA[Caracas ]]></addr-line>
<country>Venezuela</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>06</month>
<year>2006</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>06</month>
<year>2006</year>
</pub-date>
<volume>29</volume>
<numero>1</numero>
<fpage>69</fpage>
<lpage>88</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0084-59062006000100005&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0084-59062006000100005&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0084-59062006000100005&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[Las características florales y la estrategia reproductiva de Solanum gardneri Sendth., un arbusto ampliamente distribuido en Venezuela, fueron analizadas considerando el dimorfismo floral asociado a la longitud del estilo con el objeto de establecer si esta condición floral determina un sistema sexual andromonoico. Las flores ofrecen polen como única recompensa, presentan una antesis diurna y los polinizadores fueron abejas pertenecientes a los géneros Augochloropsis, Centris, Exomalopsisy Xylocopa. El sistema de apareamiento es la xenogamia, característico de especies autoincompatibles, asociado con una alta relación Polen/Óvulo y una alta asignación de biomasa masculina y de atracción. La esterilidad femenina del morfo floral con estilo corto, unida a diferencias significativas entre los morfos florales en cuanto al número y tamaño de los óvulos, así como en el tamaño de los granos de polen, indica la condición funcionalmente andromonoica de S. gardneri. La hipótesis de la función masculina parece explicar la producción relativamente alta de frutos. El alto nivel de aborto de óvulos encontrado se ha asociado con una mejor utilización de los recursos a nivel postcigótico y al elevado número de semillas por fruto, lo que probablemente esté relacionado con la estrategia de diseminación, siendo la ornitocoria el mecanismo de dispersión encontrado.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[The breeding system and floral characteristics of Solanum gardneri Sendth., a woody shrub widely distributed in Venezuela, were investigated considering the floral dimorphism associated with the pistil length in order to know if this floral condition determines an andromonoic sexual system. Anthesis is diurnal; flowers offering only pollen as reward, and the pollinators are bees, belonging to the genera Augochloropsis, Centris, Exomalopsis and Xylocopa. S. gardneri has a xenogamous mating system, of a self-incompatible species, related to a high P/O ratio, associated with a high biomass allocation to male and attraction functions. Female sterility in short-style flower and significant differences between floral morphs in number and ovule size, and pollen size indicate the andromonocious condition of S. gardneri. The allocation invested in the male function and in the attraction structures promote outcrossing. The male function explains the relatively high fruit-set. The high ovule abortion level found has been associated to a better postcigotic resource allocation level and the higher seed number per fruit is probably related to the fruit dispersal strategy,which is ornitochory.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Andromonoecia]]></kwd>
<kwd lng="es"><![CDATA[Asignación de biomasa floral]]></kwd>
<kwd lng="es"><![CDATA[Autoincompatibilidad]]></kwd>
<kwd lng="es"><![CDATA[Biología reproductiva]]></kwd>
<kwd lng="es"><![CDATA[Dimorfismo floral]]></kwd>
<kwd lng="es"><![CDATA[Polinización]]></kwd>
<kwd lng="es"><![CDATA[Solanum]]></kwd>
<kwd lng="es"><![CDATA[Venezuela]]></kwd>
<kwd lng="en"><![CDATA[Andromonoecy]]></kwd>
<kwd lng="en"><![CDATA[Floral biomass allocation]]></kwd>
<kwd lng="en"><![CDATA[Floral dimorphism]]></kwd>
<kwd lng="en"><![CDATA[Pollination]]></kwd>
<kwd lng="en"><![CDATA[Reproductive biology]]></kwd>
<kwd lng="en"><![CDATA[Self-incompatibility]]></kwd>
<kwd lng="en"><![CDATA[Solanum]]></kwd>
<kwd lng="en"><![CDATA[Venezuela]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[   <B>    <P ALIGN="CENTER"><font face="Verdana" size="3">BIOLOG&Iacute;A REPRODUCTIVA Y ASIGNACI&Oacute;N DE BIOMASA FLORAL EN <I>SOLANUM GARDNERI&nbsp; </I>SENDTH. (SOLANACEAE): UNA ESPECIE ANDROMONOICA</font></P>     <P ALIGN="CENTER"><font face="Verdana" size="3">Reproductive biology and biomass floral allocation in <I>Solanum gardneri&nbsp; </I>Sendth. (Solanaceae): an andromonoecious species</font></P>     <P ALIGN="center"><font size="2" face="Verdana">Omaira HOKCHE D.<SUP>1</SUP> y Nelson RAM&Iacute;REZ</font><SUP><font size="2" face="Verdana">2</font></P>     <P ALIGN="justify"><font size="2" face="Verdana">1</font></SUP></B><font size="2" face="Verdana">Postgrado en Bot&aacute;nica, Instituto de Biolog&iacute;a Experimental, Facultad de Ciencias, Universidad Central de Venezuela, Apartado 20513, Caracas, Venezuela. Direcci&oacute;n actual: Fundaci&oacute;n Instituto Bot&aacute;nico de Venezuela, Herbario Nacional de Venezuela, Jard&iacute;n Bot&aacute;nico de Caracas, Universidad Central de Venezuela, Apartado 2156, Caracas 1010-A, Venezuela. hokchede@rect.ucv.ve</font> </P> <B><SUP>    <P ALIGN="justify"><font size="2" face="Verdana">2</font></SUP></B><font size="2" face="Verdana">Centro de Bot&aacute;nica Tropical, Instituto de Biolog&iacute;a Experimental, Facultad de Ciencias, Universidad Central de Venezuela, Apartado 48312, Caracas 1041-A, Venezuela.</font>  <font size="2" face="Verdana">nramirez@reacciun.ve</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">RESUMEN</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Las caracter&iacute;sticas florales y la estrategia reproductiva de <I>Solanum gardneri </I>Sendth., un arbusto ampliamente distribuido en Venezuela, fueron analizadas considerando el dimorfismo floral asociado a la longitud del estilo con el objeto de establecer si esta condici&oacute;n floral determina un sistema sexual andromonoico. Las flores ofrecen polen como &uacute;nica recompensa, presentan una antesis diurna y los polinizadores fueron abejas pertenecientes a los g&eacute;neros <I>Augochloropsis</I>, <I>Centris</I>, <I>Exomalopsis</I>y <I>Xylocopa</I>. El sistema de apareamiento es la xenogamia, caracter&iacute;stico de especies autoincompatibles, asociado con una alta relaci&oacute;n Polen/&Oacute;vulo y una alta asignaci&oacute;n de biomasa masculina y de atracci&oacute;n. La esterilidad femenina del morfo floral con estilo corto, unida a diferencias significativas entre los morfos florales en cuanto al n&uacute;mero y tama&ntilde;o de los &oacute;vulos, as&iacute; como en el tama&ntilde;o de los granos de polen, indica la condici&oacute;n funcionalmente andromonoica de <I>S. gardneri</I>. La hip&oacute;tesis de la funci&oacute;n masculina parece explicar la producci&oacute;n relativamente alta de frutos. El alto nivel de aborto de &oacute;vulos encontrado se ha asociado con una mejor utilizaci&oacute;n de los recursos a nivel postcig&oacute;tico y al elevado n&uacute;mero de semillas por fruto, lo que probablemente est&eacute; relacionado con la estrategia de diseminaci&oacute;n, siendo la ornitocoria el mecanismo de dispersi&oacute;n encontrado.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">Palabras clave: </font> </B><font size="2" face="Verdana">Andromonoecia, Asignaci&oacute;n de biomasa floral, Autoincompatibilidad, Biolog&iacute;a reproductiva,Dimorfismo floral, Polinizaci&oacute;n, <I>Solanum</I>,Venezuela</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">ABSTRACT</font></P> </B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; The breeding system and floral characteristics of <I>Solanum gardneri </I>Sendth., a woody shrub widely distributed in Venezuela, were investigated considering the floral dimorphism associated with the pistil length in order to know if this floral condition determines an andromonoic sexual system. Anthesis is diurnal; flowers offering only pollen as reward, and the pollinators are bees, belonging to the genera <I>Augochloropsis</I>, <I>Centris</I>, <I>Exomalopsis </I>and <I>Xylocopa</I>. <I>S. gardneri </I>has a xenogamous mating system, of a self-incompatible species, related to a high P/O ratio, associated with a high biomass allocation to male and attraction functions. Female sterility in short-style flower and significant differences between floral morphs in number and ovule size, and pollen size indicate the andromonocious condition of <I>S. gardneri</I>. The allocation invested in the male function and in the attraction structures promote outcrossing. The male function explains the relatively high fruit-set. The high ovule abortion level found has been associated to a better postcigotic resource allocation level and the higher seed number per fruit is probably related to the fruit dispersal strategy,which is ornitochory.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">Key words: </font> </B><font size="2" face="Verdana">Andromonoecy, Floral biomass allocation, Floral dimorphism, Pollination, Reproductive biology, Self-incompatibility, <I>Solanum</I>,Venezuela</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">INTRODUCCI&Oacute;N</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La andromonoecia, presencia de flores masculinas (estaminadas) y bisexuales (hermafroditas) en un mismo individuo, es un sistema sexual poco com&uacute;n, presente en aproximadamente 2% de las angiospermas (Yamplosky &amp; Yamplosky 1922) y com&uacute;n en especies polinizadas por animales y por el viento (Bawa &amp; Beach 1981; Bertin 1982; Primack &amp; Lloyd 1980). Una de las hip&oacute;tesis m&aacute;s aceptadas para explicar la evoluci&oacute;n de la andromonoecia es aquella que se&ntilde;ala que se trata de un mecanismo para maximizar los recursos asignados a las funciones reproductivas (Diggle 1993). De aqu&iacute;, se ha reportado que las flores estaminadas requieren menor asignaci&oacute;n de recursos que las flores perfectas (Schlessman <I>et al. </I>2004) y se ha postulado que las plantas hermafroditas, que frecuentemente se autofertilizan, invierten menos en estructuras florales para atraer polinizadores que las especies que regularmente se entrecruzan (Charlesworth &amp; Charlesworth 1987; Lloyd 1987). De acuerdo a los modelos de asignaci&oacute;n de recursos, la andromonoecia se presenta en plantas donde el n&uacute;mero &oacute;ptimo de flores funcionalmente estaminadas es mayor que el n&uacute;mero de flores que puede producir frutos y el costo de madurar un fruto es alto.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Varias hip&oacute;tesis se han formulado para explicar el exceso de flores en plantas hermafroditas: limitaci&oacute;n de polen, atracci&oacute;n de polinizadores, predictibilidad del ambiente, funci&oacute;n masculina de las flores, entre otras (Sutherland 1986a, b, 1987; Sutherland &amp; Delph 1984). En el contexto de la andromonoecia parece imperar la hip&oacute;tesis de la funci&oacute;n masculina, la cual sostiene que el exceso de producci&oacute;n de flores contribuir&aacute; incrementando la aptitud masculina por medio de la donaci&oacute;n de polen, por lo tanto la asignaci&oacute;n de recursos para la producci&oacute;n de flores masculinas y femeninas no ser&iacute;a equivalente (Charlesworth &amp; Morgan 1991).</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La mayor&iacute;a de las especies del g&eacute;nero <I>Solanum </I>tienen flores hermafroditas; no obstante, se puede encontrar gran diversidad de formas sexuales que incluyen especies andromonoicas, androdioicas y dioicas (Symon 1970, 1979; Anderson 1979; Coleman &amp; Coleman 1982; Anderson &amp; Symon 1989; Forni-Martins <I>et al. </I>1998), las cuales pueden ser polinizadas por abejas vibradoras (Buchmann 1983; Bezerra &amp; Machado 2003). Las plantas de <I>Solanum gardneri </I>Sendth. Producen flores con diferentes longitudes de estilo, lo que permite distinguir entre flores con estilo largo que sobrepasa las anteras y flores con estilo corto nunca m&aacute;s all&aacute; de las mismas. La presencia de diferentes tipos florales es com&uacute;n en otras especies del g&eacute;nero (Coleman &amp; Coleman 1982; Forni-Martins <I>et al. </I>1998; Bezerra &amp; Machado 2003) y podr&iacute;a ser considerada dentro del contexto de la andromonoecia, si las flores con estilo corto se comportaran como flores funcionalmente masculinas.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Debido a la incidencia de andromonoecia en el g&eacute;nero <I>Solanum </I>y a la presencia de dimorfismo floral en <I>Solanum gardneri</I>, se plante&oacute; estudiar la biolog&iacute;a reproductiva considerando la capacidad de producci&oacute;n de frutos en cruces inter e intra-morfos, as&iacute; como la asignaci&oacute;n de biomasa a las estructuras reproductivas, mecanismos de polinizaci&oacute;n y las diferencias morfol&oacute;gicas asociadas a las flores.</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">MATERIALES Y M&Eacute;TODOS</font></P> </B><I>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; </font> </I> <font size="2" face="Verdana"> <I>Solanum gardneri </I>es un arbusto peque&ntilde;o, espinoso, de 0,5 a 1,5 m de alto, presente desde M&eacute;xico hasta Brasil, incluyendo las Antillas, y est&aacute; ampliamente distribuido en Venezuela, donde crece en bosques secundarios, en formaciones xerof&iacute;ticas o h&aacute;bitat perturbado (Ben&iacute;tez 1981).</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; &Aacute;rea de estudio</font></B></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Se muestrearon m&aacute;s de 15 individuos de <I>Solanum gardneri </I>distribuidos a lo largo de un sendero en el Arboretum de la Escuela de Biolog&iacute;a, Universidad Central de Venezuela, ubicado en Colinas de Bello Monte, al SO del valle de Caracas, estado Miranda,Venezuela (10°30’ Lat. N, 66°53’ Long. O), a una altitud de 1.050–1.100 m snm. Esta reserva corresponde a un Bosque Seco Premontano (Ewel <I>et al. </I>1976), con precipitaci&oacute;n media anual que var&iacute;a entre 550 y 1.100 mm, y temperatura promedio entre 18° y 24°C. La vegetaci&oacute;n es alterada, secundaria, compuesta por dos estratos: uno superior dominado por &aacute;rboles entre 8 y 18 m de altura, y uno inferior compuesto por hierbas y arbustos, mezclados con una regeneraci&oacute;n abundante de los &aacute;rboles del estrato superior.</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Morfolog&iacute;a floral</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El color de las diferentes partes florales se estableci&oacute; con material fresco utilizando el atlas de colores de K&uuml;ppers (1979). Se determin&oacute; la orientaci&oacute;n de las flores con relaci&oacute;n al sustrato. El proceso de antesis (apertura de la flor) se estim&oacute; en 20 flores de diferentes individuos, cuantificando el n&uacute;mero de flores marcadas que abre cada media hora. La longevidad floral se estim&oacute; por observaciones peri&oacute;dicas en 20 flores desde la antesis hasta el cierre de las flores.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Se estableci&oacute; la presencia de dos tipos florales de acuerdo a la longitud del estilo, y se evalu&oacute; la morfolog&iacute;a separadamente para cada tipo floral (Leppik 1977). Se cuantificaron las dimensiones florales (largo y di&aacute;metro de la flor as&iacute; como de las anteras y del estilo, y la distancia anteras-estigma) para un total de 20 flores provenientes de un m&iacute;nimo de 10 individuos, utilizando material fresco o preservado en alcohol al 70%. Se caracterizaron la forma y la ornamentaci&oacute;n del grano de polen por observaci&oacute;n directa bajo el microscopio &oacute;ptico en 25 flores en antesis o yemas bien desarrolladas. De igual manera, el tama&ntilde;o de los granos de polen y de los &oacute;vulos se evalu&oacute; en 20 mediciones usando un micr&oacute;metro. Posteriormente, se estim&oacute; el &aacute;rea del grano de polen basado en el di&aacute;metro del mismo (considerando el &aacute;rea de una esfera: A= <span style="font-size:10.0pt;font-family:Verdana; mso-fareast-font-family:&quot;Times New Roman&quot;;mso-bidi-font-family:&quot;Times New Roman&quot;; mso-ansi-language:ES;mso-fareast-language:ES;mso-bidi-language:AR-SA">š</span>.R</font><font size="2" face="Verdana"><sup>2</sup></font><font size="2" face="Verdana">, donde A = &aacute;rea, R = radio).</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El &aacute;rea estigm&aacute;tica se estim&oacute; indirectamente en cinco estigmas provenientes de flores de diferentes individuos, haciendo esquemas en c&aacute;mara clara. Estos esquemas se pesaron y se dividieron entre el aumento utilizado, el peso de cada esquema se dividi&oacute; entre el peso correspondiente a 1 cm<sup>2</sup> para obtener el &aacute;rea estigm&aacute;tica real (cm<sup>2</sup>). Esto se realiz&oacute; para cada morfo floral. El n&uacute;mero de granos de polen que te&oacute;ricamente puede depositarse sobre el estigma se calcul&oacute; dividiendo el &aacute;rea estigm&aacute;tica estimada indirectamente, entre el &aacute;rea ocupada por el grano de polen sobre la superficie del estigma.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La carga de polen sobre los estigmas se determin&oacute; en 10 flores (de cada morfo floral) bajo condiciones naturales, los estigmas fueron colectados seis horas despu&eacute;s de la antesis y te&ntilde;idos con cotton blue en lactofenol. La capacidad de germinaci&oacute;n del polen se estim&oacute; contando bajo el microscopio &oacute;ptico los granos provenientes de anteras de diferentes flores en una soluci&oacute;n de sacarosa al 20% por una semana. El n&uacute;mero de granos de polen germinado fue cuantificado en 3 r&eacute;plicas.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Estrategia reproductiva</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Para determinar el sistema reproductivo se realizaron cuatro pruebas diferentes en cinco individuos, siguiendo el m&eacute;todo descrito por Ruiz-Zapata &amp; Arroyo (1978) y Sobrevila &amp; Arroyo (1982): 1. La autofertilizaci&oacute;n se detect&oacute; en flores reci&eacute;n abiertas, aisladas previamente en estado de yemas, y luego polinizadas manualmente. Estas flores fueron nuevamente aisladas para evitar el contacto con polinizadores hasta la formaci&oacute;n de frutos. 2. La fertilizaci&oacute;n cruzada se realiz&oacute; colocando polen proveniente de diferentes individuos en estigmas receptivos de flores previamente emasculadas y aisladas. 3. El nivel de autogamia se estim&oacute; en yemas aisladas verificando posteriormente la formaci&oacute;n de frutos. 4. La agamospermia se examin&oacute; emasculando yemas florales y manteni&eacute;ndolas aisladas hasta la formaci&oacute;n de frutos. Para cada tipo de prueba aplicada se cuantific&oacute; el n&uacute;mero de frutos y semillas producido, y se verific&oacute; la presencia del embri&oacute;n en las semillas. Adem&aacute;s, para determinar la fertilidad femenina de cada morfo floral se realizaron pruebas de entrecruzamiento entre los dos tipos florales.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Biolog&iacute;a de polinizaci&oacute;n</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La actividad de los polinizadores se registr&oacute; por observaciones directas en el campo en el momento de la antesis, en horas del mediod&iacute;a y a finales de la tarde, en ocho individuos. Los agentes visitantes fueron capturados, identificados, medidos y examinados con relaci&oacute;n a la presencia de polen durante tres d&iacute;as de observaci&oacute;n, 5 h por d&iacute;a, para un total de 15. El n&uacute;mero de granos de polen sobre cada parte del cuerpo del visitante floral se cuantific&oacute; colocando cada porci&oacute;n en una soluci&oacute;n de glicerina (1–2 ml) al 50%. Despu&eacute;s de agitar con un vortex, se tom&oacute; una al&iacute;cuota de la preparaci&oacute;n (0,2–1,8 ml dependiendo del tama&ntilde;o de la parte del visitante) y se cont&oacute; el n&uacute;mero de granos de polen utilizando un hemacit&oacute;metro. Este conteo se realiz&oacute; en cinco r&eacute;plicas para cada parte del cuerpo del visitante floral. Para cada agente visitante se determin&oacute; la longitud de la proboscis utilizando una soluci&oacute;n de KOH al 10% en ba&ntilde;o de calentamiento hasta ebullici&oacute;n, para lograr la extensi&oacute;n de la estructura.</font></P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Producci&oacute;n de &oacute;vulos, polen y relaci&oacute;n P/O</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El n&uacute;mero de &oacute;vulos por flor se cuantific&oacute; en un microscopio estereosc&oacute;pico. Se disectaron 100 yemas de flores con estilo corto y 100 yemas de flores con estilo largo provenientes de cinco individuos. El n&uacute;mero de granos de polen por antera se determin&oacute; utilizando el m&eacute;todo descrito por Lloyd (1965), que consiste en suspender cinco anteras de diferentes yemas florales en 0,1 ml de una soluci&oacute;n de anilina en lactofenol y glicerina 3:1. Posteriormente, en tres preparaciones, se cuantificaron los granos de polen con un hemacit&oacute;metro en un microscopio &oacute;ptico. El n&uacute;mero de granos de polen por flor se estim&oacute; multiplicando el n&uacute;mero de granos de polen por antera por el n&uacute;mero promedio de anteras por flor. La relaci&oacute;n Polen/&Oacute;vulo (P/O) se estableci&oacute; dividiendo el n&uacute;mero promedio de granos de polen por flor entre el n&uacute;mero promedio de &oacute;vulos por flor.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Biomasa de flores, frutos y semillas</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El peso seco de las flores y de las diferentes partes florales (c&aacute;liz, verticilo vegetativo de soporte de la flor; corola, verticilo vegetativo de atracci&oacute;n; androceo y gineceo, &oacute;rganos sexuales) se cuantific&oacute; en flores en antesis, y en frutos y semillas bien desarrolladas. El peso seco floral por morfo, as&iacute; como el de frutos y semillas, se determinaron en 20 unidades, las cuales fueron secadas a 40°C durante dos (en el caso de flores) y cuatro (en el caso de frutos y semillas) semanas, y luego pesados utilizando una balanza anal&iacute;tica. Posteriormente, se establecieron las siguientes relaciones: Biomasa Masculina (androceo)/Biomasa Femenina (gineceo), Biomasa Reproductiva (androceo + gineceo)/Biomasa Vegetativa (c&aacute;liz + corola), y Biomasa de Atracci&oacute;n (corola)/Biomasa de Soporte (c&aacute;liz), como par&aacute;metros que reflejan la asignaci&oacute;n de recursos a las diferentes funciones florales, de acuerdo al sistema de apareamiento de la especie.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Producci&oacute;n de flores, frutos y semillas</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El n&uacute;mero de flores por inflorescencia y frutos por infrutescencia se determin&oacute; por conteos directos en 100 inflorescencias y 100 infrutescencias, respectivamente, en cinco individuos. Se discrimin&oacute; el n&uacute;mero de flores con estilo largo y flores con estilo corto por inflorescencia.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Se determin&oacute; el n&uacute;mero de semillas por fruto en 50-100 frutos maduros, y se cont&oacute; el n&uacute;mero de semillas abortadas por fruto discriminando, del total de semillas por fruto, aquellas semillas mal formadas, de tama&ntilde;o reducido, comprimidas o carentes de embri&oacute;n (Ram&iacute;rez 1992).</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Relaci&oacute;n de pesos y aborto de estructuras reproductivas</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Para medir la eficiencia reproductiva en ambos tipos de flores se estimaron las variables: Peso Total de Semillas/Fruto, Relaci&oacute;n Pericarpo/Semilla, Peso Fruto/Peso Flor, N&uacute;mero de &Oacute;vulos/Inflorescencia, de Semillas/Infrutescencia, de Semillas Viables/Inflorescencia, de Semillas Viables/&Oacute;vulos por Inflorescencia, %Semillas Abortadas, %&Oacute;vulos Abortados, %Flores-Frutos Abortados, %Semillas Producidas (Ram&iacute;rez 1992; Ram&iacute;rez &amp; Berry 1993). Es importante se&ntilde;alar que el n&uacute;mero de flores con estilo corto no se consider&oacute; para determinar el promedio de flores/inflorescencia, para no sobreestimar los niveles de aborto.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Biolog&iacute;a de diseminaci&oacute;n</font></P> </B>    ]]></body>
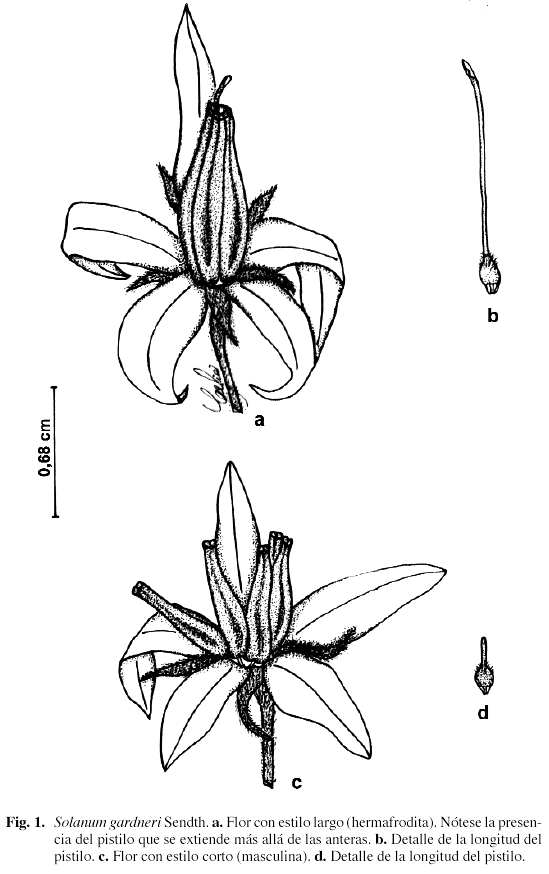
<body><![CDATA[<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Se caracteriz&oacute; morfol&oacute;gicamente el fruto, considerando las dimensiones y el color, y se estudi&oacute; el s&iacute;ndrome de dispersi&oacute;n de acuerdo a las caracter&iacute;sticas generales del fruto, tomando en cuenta la clasificaci&oacute;n de van der Pijl (1972).</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Depredaci&oacute;n predispersi&oacute;n de frutos</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; A fin de establecer la presencia de depredaci&oacute;n predispersi&oacute;n de frutos se colectaron y se aislaron 120 frutos maduros en bolsas de tela met&aacute;lica por un per&iacute;odo de dos meses. Posteriormente, se calcul&oacute; el porcentaje de depredaci&oacute;n discriminando entre el total de frutos, aquellos que presentaran da&ntilde;o en las semillas.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; An&aacute;lisis de los resultados</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La estrategia reproductiva de la especie se determin&oacute; utilizando dos &iacute;ndices: 1) &Iacute;ndice de Autoincompatibilidad, dividiendo el n&uacute;mero promedio de frutos y semillas producido por flor autofertilizada manualmente entre el n&uacute;mero promedio de frutos y semillas producido por flor por medio de fertilizaci&oacute;n cruzada manual, respectivamente para frutos y semillas, y 2) &Iacute;ndice de Autogamia (o Autopolinizaci&oacute;n Autom&aacute;tica), comparando el porcentaje de frutos y semillas producido por autofertilizaci&oacute;n autom&aacute;tica y autofertilizaci&oacute;n controlada, respectivamente para frutos y semillas (Ruiz-Zapata &amp; Arroyo 1978). Se utiliz&oacute; una prueba de t de Student de contrastaci&oacute;n de medias (Sokal &amp; Rohlf 1981) para establecer diferencias en las caracter&iacute;sticas florales en y entre morfos florales.</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">RESULTADOS</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Biolog&iacute;a floral y relaci&oacute;n Polen/&Oacute;vulo</font></P> </B> <I>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Solanum gardneri </font> </I><font size="2" face="Verdana">presenta inflorescencias axilares tipo corimbo con flores axilares, pleom&oacute;rficas, con una orientaci&oacute;n de horizontal hacia abajo a vertical hacia abajo respecto al sustrato. Las flores poseen p&eacute;talos blancos, anteras amarillas con tecas paralelas y dehiscencia poricida. Las flores no producen n&eacute;ctar y ofrecen polen como &uacute;nica recompensa para los polinizadores. El polen es solitario, de forma esf&eacute;rica, con una superficie lisa. El gineceo es sinc&aacute;rpico, con estigma difuso y estilo terete. La antesis es diurna y ocurre entre las 06:00 y 07:30 a.m. M&aacute;s del 70% de las flores analizadas abrieron entre las 06:00 y 06:30 a.m. y pueden permanecer abiertas de uno a dos d&iacute;as.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El an&aacute;lisis morfom&eacute;trico floral muestra que <I>S. gardneri </I>presenta dimorfismo floral, encontr&aacute;ndose en una misma inflorescencia flores con estilo largo y flores con estilo corto, de aspecto similar (<a href="#f1">Fig. 1</a>). Las dimensiones de los dos morfos florales se muestran en la <a href="#t1"> Tabla 1</a>. Ambos morfos difirieron significativamente en cuanto a la longitud de las flores, del estilo, de las anteras y a la distancia anteras - estigma (medida &eacute;sta por la diferencia en longitud entre ambos &oacute;rganos, por tratarse de anteras con dehiscencia poricida) (<a href="#t2">Tabla 2</a>, <a href="#an1"> Anexo 1</a>). Tambi&eacute;n se encontraron diferencias significativas tanto en el n&uacute;mero como en el tama&ntilde;o de los &oacute;vulos producidos y en el tama&ntilde;o de los granos de polen entre los morfos florales (<a href="#t2">Tabla 2</a>, <a href="#an1"> Anexo 1</a>). El n&uacute;mero de granos de polen producido por flor con estilo largo fue mayor que el producido por flor con estilo corto; sin embargo, esta diferencia no fue significativa (<a href="#t2">Tabla 2</a>, <a href="#an1"> Anexo 1</a>). Las flores con estilo largo presentaron un &aacute;rea estigm&aacute;tica significativamente mayor que las flores con estilo corto (<a href="#t2">Tabla 2</a>, <a href="#an1"> Anexo 1</a>). La relaci&oacute;n P/O fue mayor en las flores con estilo corto asociada con un menor n&uacute;mero de &oacute;vulos por flor (<a href="#t2">Tabla 2</a>).</font></P> <FONT SIZE=2>     <P ALIGN="center"><a name="f1"><img border="0" src="/img/fbpe/abv/v29n1/art05img01.gif" width="549" height="874"></a></P>     
]]></body>
<body><![CDATA[<P ALIGN="center"><a name="t1"><img border="0" src="/img/fbpe/abv/v29n1/art05tab1.gif" width="547" height="165"></a></P>      
<P ALIGN="center"><a name="t2"><img border="0" src="/img/fbpe/abv/v29n1/art05tab2.gif" width="547" height="166"></a></P> </FONT> <B>    
<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Estrategia reproductiva</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Como resultado de las pruebas reproductivas se encontr&oacute; que <I>S. Gardneri </I>es una especie xen&oacute;gama obligada, que s&oacute;lo produjo frutos y semillas por fertilizaci&oacute;n cruzada (<a href="#t3">Tabla 3</a>). El &iacute;ndice de autoincompatibilidad gen&eacute;tica (IAI = 0) muestra que se trata de una especie autoincompatible, de acuerdo al criterio de Ruiz-Zapata &amp; Arroyo (1978) y Sobrevila &amp; Arroyo (1982). En flores con estilo corto no hubo formaci&oacute;n de frutos, lo cual muestra que estas flores son funcionalmente masculinas, y las flores con estilo largo son hermafroditas, de aqu&iacute; que se pueda considerar a <I>S. gardneri </I>como una especie andromonoica.</font></P>  <FONT SIZE=2>    <P ALIGN="center"><a name="t3"><img border="0" src="/img/fbpe/abv/v29n1/art05tab3.gif" width="544" height="304"></a></P> </FONT> <B>     
<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp; Carga de polen</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El n&uacute;mero de granos de polen estimado te&oacute;ricamente que puede cubrir el &aacute;rea estigm&aacute;tica fue 1.314,42 para flores hermafroditas, y 1.017,34 para flores masculinas. Para flores hermafroditas, el n&uacute;mero de granos de polen obtenido experimentalmente sobre el estigma (X = 1.328,44, DS = 496,52) se correspondi&oacute; con el n&uacute;mero de granos de polen estimado te&oacute;ricamente; esta variable no fue determinada para flores masculinas. El n&uacute;mero promedio de granos de polen germinados fue de 152,33, lo que representa un porcentaje de germinaci&oacute;n bajo (X = 19,33%, DS = 2,75, N = 457) comparado con el n&uacute;mero promedio de granos de polen no germinados (X = 80,67%, DS = 2,75, N = 1.944). El n&uacute;mero de granos de polen germinados relativo al n&uacute;mero promedio de granos de polen depositados sobre el estigma (152,33 x 1.328,44/100 = 2.023,61) es considerablemente mayor que el n&uacute;mero promedio de &oacute;vulos por flor (<a href="#t2">Tabla 2</a>).</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Biolog&iacute;a de polinizaci&oacute;n</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Las flores de <I>S. gardneri </I>fueron visitadas por abejas de las familias Anthophoridae, Apidae y Halictidae. Los polinizadores fueron discriminados de los visitantes florales de acuerdo al comportamiento y posici&oacute;n de las cargas de polen sobre el cuerpo. La m&aacute;xima actividad de los polinizadores correspondi&oacute; con las primeras horas despu&eacute;s de la antesis, destac&aacute;ndose <I>Exomalopsis </I>sp., <I>Xylocopa frontalis </I>(Anthophoridae), <I>Centris </I>(<I>Hemisiella</I>) <I>trigonoides</I>, <I>Centris inermis </I>y <I>Augochloropsis callichroa </I>(Halictidae), principalmente aquellos con grandes cargas de polen sobre su cuerpo, espec&iacute;ficamente en el tercer par de patas, parte ventral  del t&oacute;rax y abdomen (<a href="#t4">Tabla 4</a>). Las abejas grandes (<I>Xylocopa </I>sp.) se posan sobre los poros de las anteras y la vibraci&oacute;n de sus cuerpos ocasiona que el polen se deposite sobre las patas traseras y parte ventral principalmente, garantizando el contacto posterior del polen con el estigma. <I>Dialictus </I>sp. (Halictidae) y <I>Trigona testaceicornis </I>(Apidae) mostraron menor n&uacute;mero de granos de polen sobre su cuerpo (<a href="#t4">Tabla 4</a>). Cabe destacar que las abejas peque&ntilde;as remueven m&aacute;s f&aacute;cilmente el polen de las flores hermafroditas y permanecen comparativamente mayor tiempo sobre la flor (observaci&oacute;n no cuantificada). <I>Centris </I>(<I>Hemisiella</I>) <I>trigonoides </I>y <I>C. inermis </I>tuvieron un comportamiento similar a <I>Xylocopa frontalis </I>al visitar la flor, por lo que pueden ser considerados polinizadores efectivos a&uacute;n cuando no se pudo cuantificar la carga de polen sobre su cuerpo. Dos especies de cole&oacute;pteros se capturaron aliment&aacute;ndose de las partes florales y portando polen muy escaso y disperso en todo el cuerpo, por lo que fueron catalogados como visitantes florales.</font></P> <FONT SIZE=2>     <P ALIGN="center"><a name="t4"><img border="0" src="/img/fbpe/abv/v29n1/art05tab4.gif" width="542" height="453"></a></P> </FONT><B>     
]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Asignaci&oacute;n de biomasa floral</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Los promedios del peso seco de las flores y de las partes florales se se&ntilde;alan en la <a href="#t5"> Tabla 5</a>. El peso seco de las flores hermafroditas fue significativativamente mayor comparado con el de las flores masculinas (<a href="#an1">Anexo 1</a>). Para ambos tipos florales la biomasa masculina (androceo) fue significativamente mayor que la biomasa femenina (gineceo); este mismo patr&oacute;n se encontr&oacute; al comparar la biomasa de atracci&oacute;n (corola) con la de soporte (c&aacute;liz), y la reproductiva (androceo + gineceo) con la vegetativa (c&aacute;liz + corola). Aun cuando entre morfos los valores de biomasa fueron significativamente mayores en las flores hermafroditas y la biomasa masculina fue similar, las relaciones de biomasa reproductiva/biomasa vegetativa, biomasa de atracci&oacute;n/biomasa de soporte y biomasa masculina/biomasa femenina fueron mayores en las flores masculinas (<a href="#t5">Tabla 5</a>).</font></P>     <P ALIGN="CENTER"><a name="t5"><img border="0" src="/img/fbpe/abv/v29n1/art05tab5.gif" width="547" height="222"></a></P> <B>    
<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Eficiencia reproductiva</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El n&uacute;mero promedio de frutos/infrutescencia fue significativamente menor comparado con el n&uacute;mero promedio de flores/inflorescencia, lo que indica que algunas flores abortan antes de producir frutos (<a href="#t6">Tabla 6</a>). Este mismo patr&oacute;n se encontr&oacute; a nivel de semillas por fruto (incluidas las abortivas) comparado con el n&uacute;mero de &oacute;vulos por flor para ambos morfos florales, es decir, hay una gran cantidad de &oacute;vulos que no llega a formar semillas. Esta tendencia se mantiene al comparar los altos valores de &oacute;vulos/inflorescencia con el bajo n&uacute;mero de semillas/infrutescencia (<a href="#t6">Tabla 6</a>). La proporci&oacute;n de aborto a nivel de flores-frutos inmaduros fue 34,5%, y 50,8% a nivel de &oacute;vulos; la proporci&oacute;n de semillas abortadas fue baja (2,1%); todo esto se traduce en una baja eficiencia reproductiva (31,6%).</font></P>     <P ALIGN="center"><a name="t6"><img border="0" src="/img/fbpe/abv/v29n1/art05tab6.gif" width="543" height="249"></a></P>     
<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El peso seco del fruto fue 0,050 (DS = 0,026). Se encontr&oacute; una relaci&oacute;n peso fruto/peso flor de 8,32. El peso seco de la semilla fue 0,0014 g. La relaci&oacute;n peso semillas/fruto fue 0,031 y la de pericarpo/semilla fue 0,61.</font></P> <FONT SIZE=2> </FONT><B>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Diseminaci&oacute;n y depredaci&oacute;n</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El fruto de <I>S. gardneri </I>es una baya globosa con c&aacute;liz persistente y pubescente, de 1,00 cm largo y 0,89 cm di&aacute;metro, de color rojo cuando maduro, con superficie lisa y brillante. Estas caracter&iacute;sticas del fruto sugieren que el s&iacute;ndrome de dispersi&oacute;n es la ornitocoria. Asociados con las semillas de <I>S. gardneri </I>se encontraron insectos de la familia Anobiidae (Coleoptera), que se consideraron como depredadores predispersi&oacute;n produciendo da&ntilde;o casi total de las semillas afectadas y dejando s&oacute;lo el borde intacto. El porcentaje de depredaci&oacute;n predispersi&oacute;n encontrado fue 26,66%, observ&aacute;ndose un s&oacute;lo orificio de salida en las paredes del fruto lo que indica la presencia de un insecto por fruto.</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">DISCUSI&Oacute;N</font></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Biolog&iacute;a floral y polinizaci&oacute;n</font></P> </B>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Aunque las solan&aacute;ceas presentan diversos modos de polinizaci&oacute;n (Bowers 1975; Voss <I>et al. </I>1979; Coleman &amp; Coleman 1982; Sullivan 1984; Fern&aacute;ndez 1988; Cocucci 1991; Galetto 1991; Grases &amp; Ram&iacute;rez 1996; Vesprini &amp; Galetto 2000; Stehmann &amp; Semir 2001), las caracter&iacute;sticas florales de <I>Solanum gardneri </I>revelan adaptaciones a la polinizaci&oacute;n entom&oacute;fila, espec&iacute;ficamente la melitofilia: antesis diurna, flores pleom&oacute;rficas, de color blanco y anteras amarillas, e inflorescencias m&aacute;s o menos densas, atributos comunes en especies polinizadas por abejas (Faegri &amp; van der Pijl 1971; Proctor &amp; Yeo 1973; Harborne 1977; Dafni &amp; Neal 1997). Esto concuerda con lo reportado por Symon (1979) y Smith &amp; Knapp (2002), quienes sostienen que las abejas son los principales agentes polinizadores en el g&eacute;nero <I>Solanum</I>.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La extracci&oacute;n del polen de las anteras poricidas es realizada por la vibraci&oacute;n de las abejas. Adem&aacute;s, la orientaci&oacute;n de las flores facilita la llegada de los polinizadores y la deposici&oacute;n del polen sobre ellos. Es importante se&ntilde;alar que las abejas peque&ntilde;as tienen mayor probabilidad de remover polen de las flores con estilo largo sin tocar el estigma, por lo que no ser&iacute;an los polinizadores m&aacute;s efectivos, a diferencia de las abejas grandes que a&uacute;n cuando portan menor cantidad de polen, la probabilidad de contactar el estigma con la parte ventral del abdomen es mayor como resultado de la forma de posarse sobre la flor. No obstante, la carga de polen transportada ventralmente por los insectos grandes y peque&ntilde;os excede la capacidad m&aacute;xima del &aacute;rea estigm&aacute;tica de esta especie y garantiza la deposici&oacute;n de suficiente polen sobre el estigma. Sin embargo, las abejas colectan grandes cantidades de polen en sus patas, el cual pocas veces estar&aacute; disponible para la polinizaci&oacute;n. Probablemente, la alta producci&oacute;n de polen en flores hermafroditas, adem&aacute;s del polen producido en flores masculinas, promuevan cantidades adecuadas de polen depositadas ventralmente sobre el cuerpo del polinizador.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El incremento en la relaci&oacute;n P/O asociado con la andromonoecia se ha interpretado como un sistema favorecido cuando los sistemas de polinizaci&oacute;n requieren grandes cantidades de polen (Heithaus <I>et al. </I>1974). La alta relaci&oacute;n P/O que resulta de la condici&oacute;n andromonoica puede ser una respuesta a un sistema de polinizaci&oacute;n entom&oacute;filo en el que parte del polen puede perderse con el movimiento de los polinizadores al visitar la flor, donde adem&aacute;s, la planta ofrece polen como &uacute;nica recompensa a los agentes visitantes. Tomando en consideraci&oacute;n el car&aacute;cter andromonoico de la especie, esta relaci&oacute;n ser&aacute; mucho mayor. Cabe destacar que los bajos niveles de granos de polen germinados son suficientes para fertilizar los &oacute;vulos. Adem&aacute;s, el exceso de polen depositado sobre el estigma garantiza la fertilizaci&oacute;n.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El presente estudio revel&oacute; que <I>Solanum gardneri </I>posee un sistema de autoincompatibilidad. La dehiscencia poricida de las anteras, la ubicaci&oacute;n de anteras y estigmas a diferentes niveles, y una alta relaci&oacute;n P/O son caracter&iacute;sticas que promueven el entrecruzamiento. Esta especie es catalogada, de acuerdo con la clasificaci&oacute;n de Cruden (1977), como xen&oacute;gama obligada y concuerda con el hecho que las abejas son indispensables para la polinizaci&oacute;n.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La ausencia de producci&oacute;n de frutos en cruces intra- e inter-morfos florales en flores con estilo corto demuestra la condici&oacute;n masculina de este tipo de flores y, por lo tanto, <I>S. gardneri </I>puede ser considerada como una especie andromonoica en la cual la producci&oacute;n de flores masculinas es aproximadamente 50%. La condici&oacute;n masculina de las flores con estilo corto es reforzada por la presencia de estilos y estigmas reducidos, menor n&uacute;mero y tama&ntilde;o de &oacute;vulos, gineceo de menor tama&ntilde;o y biomasa con relaci&oacute;n a las flores con estilo largo. Una situaci&oacute;n similar se reporta para varias especies de <I>Solanum </I>(Anderson &amp; Symon 1989; Forni-Martins <I>et al. </I>1998) y para <I>Bauhinia ungulata </I>(Caesalpiniaceae) (Ram&iacute;rez <I>et al. </I>1984), donde las flores con estilo corto tienen &oacute;vulos abortivos. Aparentemente, los cambios morfol&oacute;gicos observados en el gineceo de las flores con estilo corto en <I>Solanum </I>parecen representar algunas de las alteraciones que acompa&ntilde;an la evoluci&oacute;n de la andromonoecia.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La evoluci&oacute;n de la andromonoecia ha sido muy discutida (Heithaus <I>et al. </I>1974; Ruiz-Zapata &amp; Arroyo 1978; Bawa &amp; Beach 1981; Bertin 1982; Coleman &amp; Coleman 1982; Willson 1983; Solomon 1987) y, en general, se ha atribuido a presiones selectivas que promueven el entrecruzamiento e incrementan el despliegue floral (Lloyd 1979; Primack &amp; Lloyd 1980). En <I>S. gardneri </I>las caracter&iacute;sticas florales podr&iacute;an representar no s&oacute;lo una especializaci&oacute;n del papel sexual sino tambi&eacute;n una adaptaci&oacute;n para promover el entrecruzamiento. As&iacute;, el papel reproductivo de las flores estaminadas en esta especie involucra mayor donaci&oacute;n de polen y/o atracci&oacute;n de polinizadores. Schlessman <I>et al. </I>(2004) se&ntilde;alan que la funci&oacute;n principal de las flores estaminadas de <I>Pseudocymopterus montanus </I>(Apiaceae) es la de donantes de polen.</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Asignaci&oacute;n de biomasa floral</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; La teor&iacute;a de asignaci&oacute;n sexual predice que el &eacute;xito femenino podr&iacute;a estar limitado por la disponibilidad de recursos para la producci&oacute;n de frutos y semillas, mientras que el &eacute;xito masculino podr&iacute;a estar limitado por la capacidad de atraer polinizadores (Charnov 1982). La menor asignaci&oacute;n de recursos a &oacute;vulos o a partes vegetativas, podr&iacute;a considerarse una estrategia de producci&oacute;n de granos de polen m&aacute;s peque&ntilde;os o un incremento en la cantidad de los mismos (Willson 1979). En <I>S. gardneri </I>la mayor asignaci&oacute;n de recursos a la biomasa reproductiva, espec&iacute;ficamente a la funci&oacute;n masculina, en ambos tipos de flores, as&iacute; como la biomasa asignada a las estructuras de atracci&oacute;n, indican un desbalance entre los verticilos florales y concuerdan con la condici&oacute;n al&oacute;gama de esta especie autoincompatible.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Adem&aacute;s, se ha se&ntilde;alado que la producci&oacute;n de mayor n&uacute;mero de flores donantes de polen incrementa la capacidad de atracci&oacute;n de la planta a los polinizadores y, por tanto, refuerza la funci&oacute;n masculina (Lloyd 1979; Bertin 1982; Solomon 1987). Los altos valores de la relaci&oacute;n biomasa masculina/biomasa femenina evidencian una mayor asignaci&oacute;n a la biomasa masculina comparada con la biomasa femenina a nivel de la flor. Las mayores relaciones de asignaci&oacute;n de biomasa encontradas en las flores masculinas respecto a las flores hermafroditas, espec&iacute;ficamente la de biomasa masculina/biomasa femenina, podr&iacute;an estar asociadas con la especializaci&oacute;n de las flores masculinas.</font></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Se ha reportado que la andromonoecia es muy variable y puede estar determinada por variaciones en los recursos a nivel del individuo, por cambios ambientales, o estar gen&eacute;ticamente establecida (Diggle 1993, 1994). La ventaja de la andromonoecia puede reflejarse por el incremento del n&uacute;mero de flores masculinas y/o por la reducci&oacute;n de la proporci&oacute;n de flores que producen &oacute;vulos (Bertin 1982). Solomon (1986) se&ntilde;ala que la reducci&oacute;n en el n&uacute;mero de flores que producen semillas puede conducir a ahorro de energ&iacute;a que puede ser invertida en el mantenimiento vegetativo, en la reproducci&oacute;n o en la producci&oacute;n de m&aacute;s flores estaminadas. En <I>Solanum gardneri </I>la producci&oacute;n de flores masculinas es una ventaja ya que el incremento en la cantidad de polen garantiza la producci&oacute;n de semillas. Considerando que las flores funcionalmente masculinas poseen estructuras femeninas que en algunos casos son casi vestigiales, puede suponerse que la andromonoecia en esta especie ha sido derivada de la condici&oacute;n hermafrodita, como ha sido sugerido por varios autores (Lewis 1942; Bertin 1982; Willson 1983).</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; </font> <B><font size="2" face="Verdana">Eficiencia reproductiva y niveles de aborto</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; Es muy frecuente que las plantas hermafroditas al&oacute;gamas presenten una baja relaci&oacute;n fruto-flor (Willson &amp; Burley 1983; Sutherland &amp; Delph 1984; Sutherland 1986a, b, 1987). La producci&oacute;n de frutos en <I>S. gardneri </I>es relativamente alta. Este resultado concuerda con la hip&oacute;tesis de la funci&oacute;n masculina (Sutherland 1986a), en la cual se produce un exceso de flores hermafroditas que funciona s&oacute;lo como donante de polen; las flores con estilo corto cumplen esta funci&oacute;n. Adem&aacute;s, las flores funcionalmente masculinas contribuyen a la atracci&oacute;n de los polinizadores y a la donaci&oacute;n de polen. La condici&oacute;n andromonoica contribuye a la aptitud masculina, al producir grandes cantidades de polen.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; En <I>Solanum gardneri </I>la alta relaci&oacute;n peso fruto/peso flor indica una baja similitud entre las estructuras reproductivas, donde el costo de producci&oacute;n del fruto es alto comparado con el costo de las flores masculinas. La alta inversi&oacute;n requerida para la formaci&oacute;n del fruto carnoso (comparada con la de la flor) es producida a niveles relativamente elevados de &oacute;vulos y flores-frutos abortados. Desde el punto de vista energ&eacute;tico, es conveniente que el aborto ocurra a nivel de flores y &oacute;vulos y no malgastar energ&iacute;a en la formaci&oacute;n de frutos y semillas que posteriormente aborten (semillas abortadas). Probablemente, hay selecci&oacute;n a favor de la calidad de la progenie que se forma a expensas de un mayor aborto a nivel de &oacute;vulos los cuales, aparentemente, determinan la baja eficiencia global de <I>S. gardneri</I>. El alto aborto de &oacute;vulos puede estar asociado con la condici&oacute;n autoincompatible de esta planta. En las especies autoincompatibles, el aborto de &oacute;vulos puede ser interpretado como la primera respuesta a la diversidad de granos de polen que llegan al estigma (Lloyd 1980).</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El n&uacute;mero de granos de polen transportado por los polinizadores y las cargas de polen depositadas sobre los estigmas en <I>S. gardneri </I>fueron mayores al n&uacute;mero de &oacute;vulos. Probablemente, los altos niveles de &oacute;vulos abortados respondan a caracter&iacute;sticas diferentes a la limitaci&oacute;n de polinizadores en <I>S. gardneri </I>y pudieran ser asociados con fallas en la polinizaci&oacute;n y en consecuencia en la fertilizaci&oacute;n, con aborto selectivo o limitaciones de recursos (Sutherland 1986a, b, 1987). Ram&iacute;rez &amp; Berry (1993) se&ntilde;alan que los mayores niveles de aborto de &oacute;vulos en especies con numerosas semillas est&aacute;n asociados a una mayor eficiencia en la utilizaci&oacute;n de los recursos maternos. La relaci&oacute;n pericarpo/semilla aporta un estimado del costo de empaquetamiento de semillas por fruto, es decir, de la inversi&oacute;n de biomasa en pericarpo (inversi&oacute;n materna) relativa a la inversi&oacute;n de biomasa en progenie. En <I>S. gardneri </I>esta relaci&oacute;n indica que existe una menor inversi&oacute;n de biomasa en la producci&oacute;n de semillas que en el pericarpo del fruto. Esto, asociado con un gran n&uacute;mero de semillas por fruto probablemente est&eacute; relacionado con la estrategia de diseminaci&oacute;n, es decir, en frutos carnosos tipo baya el &eacute;xito reproductivo se garantiza a trav&eacute;s de un gran n&uacute;mero de semillas por fruto (Ram&iacute;rez &amp; Berry 1993). Snow (1981) reporta que un incremento en el n&uacute;mero de semillas se refleja en un aumento en la biomasa del fruto, y esto puede mejorar la atracci&oacute;n del fruto puesto que la producci&oacute;n de frutos ornitoc&oacute;ricos requiere de una gran inversi&oacute;n materna (frutos costosos) donde las unidades dispersantes deben tener ciertas caracter&iacute;sticas morfol&oacute;gicas (tama&ntilde;o y forma) y bioqu&iacute;micas (color, olor, composici&oacute;n nutricional de la recompensa) que permitan la atracci&oacute;n, el consumo, y consecuentemente, la dispersi&oacute;n de las semillas. En la especie estudiada parece establecerse un compromiso entre el costo de empaquetamiento de las semillas y la estrategia de diseminaci&oacute;n; es decir, el fruto carnoso garantiza la protecci&oacute;n, dispersi&oacute;n y diseminaci&oacute;n de un elevado n&uacute;mero de semillas por fruto.</font></P>     <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; En conclusi&oacute;n, el dimorfismo floral en <I>S. gardneri </I>corresponde a una condici&oacute;n andromonoica en la cual las flores funcionalmente masculinas presentan diferencias morfol&oacute;gicas notorias con relaci&oacute;n a las flores hermafroditas. <I>Solanum gardneri </I>mostr&oacute; valores intermedios en la producci&oacute;n de frutos, asociados a un sistema de autoincompatibilidad, lo cual responde a la condici&oacute;n andromonoica. La eficiencia global, semillas por &oacute;vulo por inflorescencia, fue baja, principalmente asociada a altos niveles de &oacute;vulos abortados.</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">AGRADECIMIENTOS</font></P> </B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">&nbsp;&nbsp;&nbsp; El primer autor agradece al Laboratorio de Biolog&iacute;a Reproductiva, Instituto de Biolog&iacute;a Experimental, UCV, por facilitar las instalaciones para el desarrollo de la parte experimental de este trabajo. Agradecemos a la Lic. Celia Gil por la elaboraci&oacute;n de los esquemas bot&aacute;nicos. A los &aacute;rbitros por sus comentarios y sugerencias. Este trabajo es el producto de la asignatura Biolog&iacute;a Reproductiva de Angiospermas, Postgrado en Bot&aacute;nica, Universidad Central de Venezuela.</font></P>     <P ALIGN="JUSTIFY"><B><font size="2" face="Verdana">BIBLIOGRAFIA</font></P> </B>    <!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">1. Anderson, G.J. 1979. Dioecious <I>Solanum </I>species of hermaphroditic origin as an example of a broad evolutionary convergence. <I>Nature, Lond. </I>282: 836-838.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017365&pid=S0084-5906200600010000500001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">2. Anderson, G.J. &amp; D.E. Symon. 1989. Functional dioecy and andromonoecy in <I>Solanum. Evolution </I>43: 204-219.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017366&pid=S0084-5906200600010000500002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">3. Bawa, K.S. &amp; J.H. Beach. 1981. Evolution of sexual systems in flowering plants. <I>Ann. Missouri Bot. Gard. </I>68: 254-274.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017367&pid=S0084-5906200600010000500003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">4. Ben&iacute;tez, C.E. 1981. Notas sobre especies de <I>Solanum </I>en Venezuela (II). <I>Ernstia </I>7: 18–19.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017368&pid=S0084-5906200600010000500004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">5. Bertin, R.I. 1982. The evolution and maintenance of andromonoecy. <I>Evol. Theor. </I>6: 25-32.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017369&pid=S0084-5906200600010000500005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">6. Bezerra, E.L. de &amp; I.C. Machado. 2003. Biologia floral e sistema de poliniza&ccedil;&atilde;o de <I>Solanum stramonifolium </I>Jacq. (Solanaceae) en remanescente de Mata Atl&acirc;ntica, Pernambuco. <I>Acta Bot. Bras. </I>17(2): 247-257.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017370&pid=S0084-5906200600010000500006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">7. Bowers, K.A.W. 1975. The pollination ecology of <I>Solanum rostratum </I>(Solanaceae). <I>Amer. J. Bot. </I>62: 633-638.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017371&pid=S0084-5906200600010000500007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">8. Buchmann, S.L. 1983. Buzz pollination in Angiosperms. In: <I>Handbook of experimental pollination biology </I>(Jones, C.E. &amp; R.J. Little, eds.), pp. 73-113. New York.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017372&pid=S0084-5906200600010000500008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">9. Charlesworth, D. &amp; B. Charlesworth. 1987. The effect of investment in attractive structures on allocation to male and female functions in plants. <I>Evolution </I>41: 948-968.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017373&pid=S0084-5906200600010000500009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">10. Charlesworth, D. &amp; M.T. Morgan. 1991. Allocation of resources to sex functions in flowering plants. <I>Philos. Trans., Ser. B </I>332: 91-102.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017374&pid=S0084-5906200600010000500010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">11. Charnov, E.L. 1982. <I>The theory of sex allocation. </I>Princeton Univ. Press, Princeton, NJ.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017375&pid=S0084-5906200600010000500011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">12. Cocucci, A.A. 1991. Pollination biology of <I>Nierembergia </I>(Solanaceae). <I>Pl. Syst. Evol</I>. 174: 17-35.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017376&pid=S0084-5906200600010000500012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">13. Coleman, J.R. &amp; M.A. Coleman. 1982. Reproductive biology of an andromonoecious <I>Solanum </I>(<I>S. palinacanthum </I>Dunal). <I>Biotropica </I>14: 69-75.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017377&pid=S0084-5906200600010000500013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">14. Cruden, R.W. 1977. Pollen-Ovule ratios: A conservative indicator of breeding systems in flowering plants. <I>Evolution </I>31: 32-46.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017378&pid=S0084-5906200600010000500014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">15. Dafni, A. &amp; P.R. Neal. 1997. Sex and shape in floral advertisement: measurement, concepts and implications. <I>Acta Hort. </I>437: 121-140.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017379&pid=S0084-5906200600010000500015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">16. Diggle, P.K. 1993. Developmental plasticity, genetic variation, and the evolution of andromonoecy in <I>Solanum hirtum </I>(Solanaceae). <I>Amer. J. Bot. </I>80: 967-973.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017380&pid=S0084-5906200600010000500016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">17. Diggle, P.K. 1994. The expression of andromonoecy in <I>Solanum hirtum </I>(Solanaceae): Phenotypic plasticity and ontogenetic contingency. <I>Amer. J. Bot. </I>81: 1354-1365.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017381&pid=S0084-5906200600010000500017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">18. Ewel, J.J., A. Madriz &amp; J.A. Tosi Jr. 1976. <I>Zonas de vida de Venezuela. Estado Sucre</I>. Caracas (Fondo Nacional de Investigaciones Agropecuarias, Caracas).</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017382&pid=S0084-5906200600010000500018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">19. Faegri, K. &amp; L. van der Pijl. 1971. <I>The principles of pollination ecology</I>. Pergamon Press, New York.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017383&pid=S0084-5906200600010000500019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">20. Fern&aacute;ndez, S.E. 1988. Biolog&iacute;a floral de <I>Solanum sessiliflorum </I>Dun. var. <I>sessiliflorum</I>, na regi&atilde;o de Manaus, AM. <I>Acta Amazon. </I>18: 55-65.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017384&pid=S0084-5906200600010000500020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">21. Forni-Martins, E.R., M.C. Mendes Marques &amp; M.R. Lemes. 1998. Biolog&iacute;a floral e reprodu&ccedil;&atilde;o de <I>Solanum paniculatum </I>L. (Solanaceae) no estado de S&atilde;o Paulo, Brasil. <I>Revista Brasil. Bot. </I>21: 117-124.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017385&pid=S0084-5906200600010000500021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">22. Galetto, L. 1991. Sobre el n&eacute;ctar y los nectarios de algunas especies de <I>Nicotiana </I>(Solanaceae). <I>Kurtziana </I>21: 165-176.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017386&pid=S0084-5906200600010000500022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">23. Grases, C. &amp; N. Ram&iacute;rez. 1996. <I>Biolog&iacute;a reproductiva de especies ornit&oacute;filas de un bosque deciduo secundario tropical</I>. Trabajo Especial de Grado. Escuela de Biolog&iacute;a. Facultad de Ciencias. Universidad Central de Venezuela. Caracas. Venezuela.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017387&pid=S0084-5906200600010000500023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">24. Harborne, J.B. 1977. <I>Introduction ecological biochemistry</I>. Academic Press, London.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017388&pid=S0084-5906200600010000500024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">25. Heithaus, E.R., P.A. Opler &amp; H.G. Baker. 1974. Bat activity and pollination of <I>Bauhinia pauletia</I>: Plant pollinator coevolution. <I>Ecology </I>55: 412-419.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017389&pid=S0084-5906200600010000500025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">26. K&uuml;ppers, H. 1979. <I>Atlas de los colores. </I>Editorial Blume, Barcelona.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017390&pid=S0084-5906200600010000500026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">27. Leppik, E.E. 1977. <I>Floral evolution in relation to pollination ecology. </I>Today &amp; Tomorrow's Printers and Publishers, New Delhi.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017391&pid=S0084-5906200600010000500027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">28. Lewis, D. 1942. The evolution of sex in flowering plants. <I>Biol. Rev. </I>17: 46-67.</font> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017392&pid=S0084-5906200600010000500028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">29. Lloyd, D.G. 1965. Evolution of self-compatibility and racial differentiation in <I>Leavenworthia </I>(Cruciferae). <I>Contr. Gray Herb. </I>195: 3-134.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017393&pid=S0084-5906200600010000500029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">30. Lloyd, D.G. 1979. Evolution towards dioecy in heterostyly plants. <I>Pl. Syst. Evol. </I>131: 71-80.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017394&pid=S0084-5906200600010000500030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">31. Lloyd, D.G. 19870. Sexual strategies in plants. I. An hypothesis of serial adjustment of maternal investment during one reproductive session. <I>New Phytol. </I>86: 69-79.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017395&pid=S0084-5906200600010000500031&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">32. Lloyd, D.G. 1987. Allocation to pollen, seeds and pollination mechanisms in self-fertilizing plants. <I>Funct. Evol. </I>1: 83-89.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017396&pid=S0084-5906200600010000500032&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">33. Primack, R.B. &amp; D.G. Lloyd. 1980. Andromonoecy in the New Zealand montane shrub Manuka, <I>Leptospermum scoparium </I>(Myrtaceae). <I>Amer. J. Bot. </I>67: 361–368.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017397&pid=S0084-5906200600010000500033&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">34. Proctor, M. &amp; P. Yeo. 1973. <I>The pollination of flowers. </I>W. Collins Sons &amp; Co. London.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017398&pid=S0084-5906200600010000500034&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">35. Ram&iacute;rez, N. 1992. Las caracter&iacute;sticas de las estructuras reproductivas, niveles de aborto y semillas producidas. <I>Acta Ci. Venez. </I>43: 167-177.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017399&pid=S0084-5906200600010000500035&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">36. Ram&iacute;rez, N. &amp; P. Berry. 1993. Producci&oacute;n y costo de frutos y semillas relacionados a los tipos morfol&oacute;gicos de frutos, unidad de dispersi&oacute;n y s&iacute;ndromes de dispersi&oacute;n. <I>Ecotropicos </I>6: 43-60.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017400&pid=S0084-5906200600010000500036&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">37. Ram&iacute;rez, N., C. Sobrevila, N.X. de Enrech &amp; T. Ruiz-Zapata. 1984. Floral biology and breeding system of <I>Bauhinia ungulata </I>L. (Leguminosae), a bat-pollinated tree in Venezuelan "Llanos". <I>Amer. J. Bot. </I>71: 273-280.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017401&pid=S0084-5906200600010000500037&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">38. Ruiz-Zapata, T. &amp; M.T.K. Arroyo. 1978. Plant reproductive ecology of a secondary deciduous tropical forest in Venezuela. <I>Biotropica </I>10: 221-230.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017402&pid=S0084-5906200600010000500038&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">39. Schlessman, M.A., N. Underwood, T. Watkins, L.M. Graceffa &amp; D. Cordray. 2004. Functions of staminate flowers in andromonoecious <I>Pseudocymopterus montanus </I>(Apiaceae, Apioideae). <I>Pl. Spec. Biol. </I>19: 1-12.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017403&pid=S0084-5906200600010000500039&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">40. Smith, S.D. &amp; S. Knapp. 2002. The natural history of reproduction in <I>Solanum </I>and <I>Lycianthes </I>(Solanaceae) in a subtropical moist forest. <I>Bull. Nat. Hist. Mus. Lond. (Bot.) </I>32: 125-136.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017404&pid=S0084-5906200600010000500040&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">41. Snow, D.W. 1981. Tropical frugivorous birds and their food plants: A world survey. <I>Biotropica </I>13: 1-14.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017405&pid=S0084-5906200600010000500041&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">42. Sobrevila, C. &amp; M.T.K. Arroyo. 1982. Breeding systems in a montane tropical cloud forest in Venezuela. <I>Pl. Syst. Evol. </I>140: 19-37.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017406&pid=S0084-5906200600010000500042&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">43. Sokal, R.R. &amp; F.J. Rohlf. 1981. <I>Biometry</I>. 2nd ed. W.H. Freeman, New York.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017407&pid=S0084-5906200600010000500043&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">44. Solomon, B.P. 1986. Sexual allocation and andromonoecy: Resource investment in male and hermaphrodite flowers of <I>Solanum carolinense </I>(Solanaceae). <I>Amer. J. Bot. </I>73: 1215-1221.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017408&pid=S0084-5906200600010000500044&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">45. Solomon, B.P. 1987. The role of male flowers in <I>Solanum carolinense: </I>pollen donors or pollinator attractors?. <I>Evol. Trends Pl. </I>1: 89-93.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017409&pid=S0084-5906200600010000500045&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">46. Stehmann, J.R. &amp; J. Semir. 2001. Biologia reproductiva de <I>Calibrachoa elegans </I>(Miers) Stehmann &amp; Semir (Solanaceae). <I>Revista Brasil. Bot. </I>24: 43-49.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017410&pid=S0084-5906200600010000500046&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">47. Sullivan, J.R. 1984. Pollination biology of <I>Physalis viscosa </I>var. <I>cineracens </I>(Solanaceae). <I>Amer. J. Bot. </I>71: 815-820.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017411&pid=S0084-5906200600010000500047&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">48. Sutherland, S. 1986a. Patterns of fruit-set: What controls fruit-flower ratios in plants?. <I>Evolution </I>40: 117-128.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017412&pid=S0084-5906200600010000500048&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">49. Sutherland, S. 1986b. Floral sex ratios, fruit-set, and resource allocation in plants. <I>Ecology </I>67: 991-1001.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017413&pid=S0084-5906200600010000500049&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">50. Sutherland, S. 1987. Why hemaphroditic plants produce many more flowers than fruits: Experimental tests with <I>Agave mckelveyana. Evolution </I>4: 750-759.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017414&pid=S0084-5906200600010000500050&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">51. Sutherland, S. &amp; L.F. Delph. 1984. On the importance of male fitness in plants: Patterns of fruit-set. <I>Ecology </I>65: 1093-1104.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017415&pid=S0084-5906200600010000500051&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">52. Symon, D.E. 1970. Dioecious Solanums. <I>Taxon </I>19: 909–910.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017416&pid=S0084-5906200600010000500052&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">53. Symon, D.E. 1979. Sex forms in <I>Solanum </I>(Solanaceae) and the role of pollen collecting insects. In: <I>The biology and taxonomy of Solanaceae </I>(Hawes, J.G., R.N. Lester &amp; A.D. Skelding, eds.), pp. 385–397. Academic Press, London, U.K.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017417&pid=S0084-5906200600010000500053&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">54. van der Pijl, L. 1972. <I>Principles of dispersal in higher plants</I>. Second edition. Springer-Verlag, New York.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017418&pid=S0084-5906200600010000500054&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">55. Vesprini, J.L. &amp; L. Galetto. 2000. The reproductive biology of <I>Jaborosa integrifolia </I>(Solanaceae):Why its fruits are so rare?. <I>Pl. Syst. Evol. </I>225: 15-28.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017419&pid=S0084-5906200600010000500055&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">56. Voss, R., M. Turner, R. Inouye, M. Fisher &amp; R. Cort. 1979. Floral biology of <I>Markea neurantha </I>Hemsley (Solanaceae), a bat-pollinated epiphyte. <I>Amer. Midl. Naturalist </I>103: 262-268.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017420&pid=S0084-5906200600010000500056&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">57. Willson, M.F. 1979. Sexual selection in plants. <I>Amer. Naturalist </I>113: 777-790.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017421&pid=S0084-5906200600010000500057&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">58. Willson, M.F. 1983. <I>Plant Reproductive Ecology</I>. John Wiley &amp; Sons, New York.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017422&pid=S0084-5906200600010000500058&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">59. Willson, M.F. &amp; N. Burley. 1983. <I>Mate choice in plants: Tactics, mechanisms, and consequences. </I>Princeton Univ. Press, Princeton.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017423&pid=S0084-5906200600010000500059&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font size="2" face="Verdana">60. Yamplosky, C. &amp; H. Yamplosky. 1922. Distribution of sex forms in the phanerogamic flora. <I>Biblioth. Genet. </I>3: 1-62.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=017424&pid=S0084-5906200600010000500060&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><P ALIGN="center"><a name="an1"><img border="0" src="/img/fbpe/abv/v29n1/art05ane1.gif" width="542" height="588"></a></P> </FONT>    
]]></body>
<body><![CDATA[ ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Anderson]]></surname>
<given-names><![CDATA[G.J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Dioecious Solanum species of hermaphroditic origin as an example of a broad evolutionary convergence]]></article-title>
<source><![CDATA[Nature, Lond]]></source>
<year>1979</year>
<volume>282</volume>
<page-range>836-838</page-range></nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Anderson]]></surname>
<given-names><![CDATA[G.J]]></given-names>
</name>
<name>
<surname><![CDATA[Symon]]></surname>
<given-names><![CDATA[D.E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Functional dioecy and andromonoecy in Solanum]]></article-title>
<source><![CDATA[Evolution]]></source>
<year>1989</year>
<volume>43</volume>
<page-range>204-219</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bawa]]></surname>
<given-names><![CDATA[K.S]]></given-names>
</name>
<name>
<surname><![CDATA[Beach]]></surname>
<given-names><![CDATA[J.H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Evolution of sexual systems in flowering plants]]></article-title>
<source><![CDATA[Ann. Missouri Bot. Gard]]></source>
<year>1981</year>
<volume>68</volume>
<page-range>254-274</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Benítez]]></surname>
<given-names><![CDATA[C.E]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Notas sobre especies de Solanum en Venezuela (II)]]></article-title>
<source><![CDATA[Ernstia]]></source>
<year>1981</year>
<volume>7</volume>
<page-range>18-19</page-range></nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bertin]]></surname>
<given-names><![CDATA[R.I]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The evolution and maintenance of andromonoecy]]></article-title>
<source><![CDATA[Evol. Theor]]></source>
<year>1982</year>
<volume>6</volume>
<page-range>25-32</page-range></nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bezerra]]></surname>
<given-names><![CDATA[E.L. de]]></given-names>
</name>
<name>
<surname><![CDATA[Machado]]></surname>
<given-names><![CDATA[I.C]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Biologia floral e sistema de polinização de Solanum stramonifolium Jacq. (Solanaceae) en remanescente de Mata Atlântica, Pernambuco]]></article-title>
<source><![CDATA[Acta Bot. Bras]]></source>
<year>2003</year>
<volume>17</volume>
<numero>2</numero>
<issue>2</issue>
<page-range>247-257</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bowers]]></surname>
<given-names><![CDATA[K.A.W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The pollination ecology of Solanum rostratum (Solanaceae)]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1975</year>
<volume>62</volume>
<page-range>633-638</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Buchmann]]></surname>
<given-names><![CDATA[S.L]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Buzz pollination in Angiosperms]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Jones]]></surname>
<given-names><![CDATA[C.E]]></given-names>
</name>
<name>
<surname><![CDATA[Little]]></surname>
<given-names><![CDATA[R.J]]></given-names>
</name>
</person-group>
<source><![CDATA[Handbook of experimental pollination biology]]></source>
<year>1983</year>
<page-range>73-113</page-range><publisher-loc><![CDATA[New York ]]></publisher-loc>
</nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Charlesworth]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Charlesworth]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The effect of investment in attractive structures on allocation to male and female functions in plants]]></article-title>
<source><![CDATA[Evolution]]></source>
<year>1987</year>
<volume>41</volume>
<page-range>948-968</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Charlesworth]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Morgan]]></surname>
<given-names><![CDATA[M.T]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Allocation of resources to sex functions in flowering plants]]></article-title>
<source><![CDATA[Philos. Trans., Ser. B]]></source>
<year>1991</year>
<volume>332</volume>
<page-range>91-102</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Charnov]]></surname>
<given-names><![CDATA[E.L]]></given-names>
</name>
</person-group>
<source><![CDATA[The theory of sex allocation]]></source>
<year>1982</year>
<publisher-loc><![CDATA[Princeton^eNJ NJ]]></publisher-loc>
<publisher-name><![CDATA[Princeton Univ. Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cocucci]]></surname>
<given-names><![CDATA[A.A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Pollination biology of Nierembergia (Solanaceae)]]></article-title>
<source><![CDATA[Pl. Syst. Evol]]></source>
<year>1991</year>
<volume>174</volume>
<page-range>17-35</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Coleman]]></surname>
<given-names><![CDATA[J.R]]></given-names>
</name>
<name>
<surname><![CDATA[Coleman]]></surname>
<given-names><![CDATA[M.A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Reproductive biology of an andromonoecious Solanum (S. palinacanthum Dunal)]]></article-title>
<source><![CDATA[Biotropica]]></source>
<year>1982</year>
<volume>14</volume>
<page-range>69-75</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cruden]]></surname>
<given-names><![CDATA[R.W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Pollen-Ovule ratios: A conservative indicator of breeding systems in flowering plants]]></article-title>
<source><![CDATA[Evolution]]></source>
<year>1977</year>
<volume>31</volume>
<page-range>32-46</page-range></nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Dafni]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Neal]]></surname>
<given-names><![CDATA[P.R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sex and shape in floral advertisement: measurement, concepts and implications]]></article-title>
<source><![CDATA[Acta Hort]]></source>
<year>1997</year>
<volume>437</volume>
<page-range>121-140</page-range></nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Diggle]]></surname>
<given-names><![CDATA[P.K]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Developmental plasticity, genetic variation, and the evolution of andromonoecy in Solanum hirtum (Solanaceae)]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1993</year>
<volume>80</volume>
<page-range>967-973</page-range></nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Diggle]]></surname>
<given-names><![CDATA[P.K]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The expression of andromonoecy in Solanum hirtum (Solanaceae): Phenotypic plasticity and ontogenetic contingency]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1994</year>
<volume>81</volume>
<page-range>1354-1365</page-range></nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ewel]]></surname>
<given-names><![CDATA[J.J]]></given-names>
</name>
<name>
<surname><![CDATA[Madriz]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Tosi Jr]]></surname>
<given-names><![CDATA[J.A]]></given-names>
</name>
</person-group>
<source><![CDATA[Zonas de vida de Venezuela: Estado Sucre]]></source>
<year>1976</year>
<publisher-loc><![CDATA[Caracas ]]></publisher-loc>
<publisher-name><![CDATA[Fondo Nacional de Investigaciones Agropecuarias, Caracas]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B19">
<label>19</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Faegri]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[van der Pijl]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<source><![CDATA[The principles of pollination ecology]]></source>
<year>1971</year>
<publisher-loc><![CDATA[New York ]]></publisher-loc>
<publisher-name><![CDATA[Pergamon Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B20">
<label>20</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Fernández]]></surname>
<given-names><![CDATA[S.E]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Biología floral de Solanum sessiliflorum Dun. var. sessiliflorum, na região de Manaus, AM]]></article-title>
<source><![CDATA[Acta Amazon]]></source>
<year>1988</year>
<volume>18</volume>
<page-range>55-65</page-range></nlm-citation>
</ref>
<ref id="B21">
<label>21</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Forni-Martins]]></surname>
<given-names><![CDATA[E.R]]></given-names>
</name>
<name>
<surname><![CDATA[Mendes Marques]]></surname>
<given-names><![CDATA[M.C]]></given-names>
</name>
<name>
<surname><![CDATA[Lemes]]></surname>
<given-names><![CDATA[M.R]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Biología floral e reprodução de Solanum paniculatum L. (Solanaceae) no estado de São Paulo, Brasil]]></article-title>
<source><![CDATA[Revista Brasil. Bot]]></source>
<year>1998</year>
<volume>21</volume>
<page-range>117-124</page-range></nlm-citation>
</ref>
<ref id="B22">
<label>22</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Galetto]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Sobre el néctar y los nectarios de algunas especies de Nicotiana (Solanaceae)]]></article-title>
<source><![CDATA[Kurtziana]]></source>
<year>1991</year>
<volume>21</volume>
<page-range>165-176</page-range></nlm-citation>
</ref>
<ref id="B23">
<label>23</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Grases]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<source><![CDATA[Biología reproductiva de especies ornitófilas de un bosque deciduo secundario tropical]]></source>
<year>1996</year>
</nlm-citation>
</ref>
<ref id="B24">
<label>24</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Harborne]]></surname>
<given-names><![CDATA[J.B]]></given-names>
</name>
</person-group>
<source><![CDATA[Introduction ecological biochemistry]]></source>
<year>1977</year>
<publisher-loc><![CDATA[London ]]></publisher-loc>
<publisher-name><![CDATA[Academic Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B25">
<label>25</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Heithaus]]></surname>
<given-names><![CDATA[E.R]]></given-names>
</name>
<name>
<surname><![CDATA[Opler]]></surname>
<given-names><![CDATA[P.A]]></given-names>
</name>
<name>
<surname><![CDATA[Baker]]></surname>
<given-names><![CDATA[H.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Bat activity and pollination of Bauhinia pauletia: Plant pollinator coevolution]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>1974</year>
<volume>55</volume>
<page-range>412-419</page-range></nlm-citation>
</ref>
<ref id="B26">
<label>26</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Küppers]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<source><![CDATA[Atlas de los colores]]></source>
<year>1979</year>
<publisher-loc><![CDATA[Barcelona ]]></publisher-loc>
<publisher-name><![CDATA[Editorial Blume]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B27">
<label>27</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Leppik]]></surname>
<given-names><![CDATA[E.E]]></given-names>
</name>
</person-group>
<source><![CDATA[Floral evolution in relation to pollination ecology]]></source>
<year>1977</year>
<publisher-loc><![CDATA[New Delhi ]]></publisher-loc>
<publisher-name><![CDATA[Today & Tomorrow's Printers and Publishers]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B28">
<label>28</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lewis]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The evolution of sex in flowering plants]]></article-title>
<source><![CDATA[Biol. Rev]]></source>
<year>1942</year>
<volume>17</volume>
<page-range>46-67</page-range></nlm-citation>
</ref>
<ref id="B29">
<label>29</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lloyd]]></surname>
<given-names><![CDATA[D.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Evolution of self-compatibility and racial differentiation in Leavenworthia (Cruciferae)]]></article-title>
<source><![CDATA[Contr. Gray Herb]]></source>
<year>1965</year>
<volume>195</volume>
<page-range>3-134</page-range></nlm-citation>
</ref>
<ref id="B30">
<label>30</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lloyd]]></surname>
<given-names><![CDATA[D.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Evolution towards dioecy in heterostyly plants]]></article-title>
<source><![CDATA[Pl. Syst. Evol]]></source>
<year>1979</year>
<volume>131</volume>
<page-range>71-80</page-range></nlm-citation>
</ref>
<ref id="B31">
<label>31</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lloyd]]></surname>
<given-names><![CDATA[D.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sexual strategies in plants: I. An hypothesis of serial adjustment of maternal investment during one reproductive session]]></article-title>
<source><![CDATA[New Phytol]]></source>
<year>1987</year>
<volume>86</volume>
<page-range>69-79</page-range></nlm-citation>
</ref>
<ref id="B32">
<label>32</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lloyd]]></surname>
<given-names><![CDATA[D.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Allocation to pollen, seeds and pollination mechanisms in self-fertilizing plants]]></article-title>
<source><![CDATA[Funct. Evol]]></source>
<year>1987</year>
<volume>1</volume>
<page-range>83-89</page-range></nlm-citation>
</ref>
<ref id="B33">
<label>33</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Primack]]></surname>
<given-names><![CDATA[R.B]]></given-names>
</name>
<name>
<surname><![CDATA[Lloyd]]></surname>
<given-names><![CDATA[D.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Andromonoecy in the New Zealand montane shrub Manuka, Leptospermum scoparium (Myrtaceae)]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1980</year>
<volume>67</volume>
<page-range>361-368</page-range></nlm-citation>
</ref>
<ref id="B34">
<label>34</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Proctor]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Yeo]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<source><![CDATA[The pollination of flowers]]></source>
<year>1973</year>
<publisher-loc><![CDATA[London ]]></publisher-loc>
<publisher-name><![CDATA[W. Collins Sons & Co]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B35">
<label>35</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Las características de las estructuras reproductivas, niveles de aborto y semillas producidas]]></article-title>
<source><![CDATA[Acta Ci. Venez]]></source>
<year>1992</year>
<volume>43</volume>
<page-range>167-177</page-range></nlm-citation>
</ref>
<ref id="B36">
<label>36</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Berry]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Producción y costo de frutos y semillas relacionados a los tipos morfológicos de frutos, unidad de dispersión y síndromes de dispersión]]></article-title>
<source><![CDATA[Ecotropicos]]></source>
<year>1993</year>
<volume>6</volume>
<page-range>43-60</page-range></nlm-citation>
</ref>
<ref id="B37">
<label>37</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Sobrevila]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[de Enrech]]></surname>
<given-names><![CDATA[N.X]]></given-names>
</name>
<name>
<surname><![CDATA[Ruiz-Zapata]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Floral biology and breeding system of Bauhinia ungulata L. (Leguminosae), a bat-pollinated tree in Venezuelan "Llanos"]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1984</year>
<volume>71</volume>
<page-range>273-280</page-range></nlm-citation>
</ref>
<ref id="B38">
<label>38</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ruiz-Zapata]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Arroyo]]></surname>
<given-names><![CDATA[M.T.K]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Plant reproductive ecology of a secondary deciduous tropical forest in Venezuela]]></article-title>
<source><![CDATA[Biotropica]]></source>
<year>1978</year>
<volume>10</volume>
<page-range>221-230</page-range></nlm-citation>
</ref>
<ref id="B39">
<label>39</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Schlessman]]></surname>
<given-names><![CDATA[M.A]]></given-names>
</name>
<name>
<surname><![CDATA[Underwood]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Watkins]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Graceffa]]></surname>
<given-names><![CDATA[L.M]]></given-names>
</name>
<name>
<surname><![CDATA[Cordray]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Functions of staminate flowers in andromonoecious Pseudocymopterus montanus (Apiaceae, Apioideae)]]></article-title>
<source><![CDATA[Pl. Spec. Biol]]></source>
<year>2004</year>
<volume>19</volume>
<page-range>1-12</page-range></nlm-citation>
</ref>
<ref id="B40">
<label>40</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Smith]]></surname>
<given-names><![CDATA[S.D]]></given-names>
</name>
<name>
<surname><![CDATA[Knapp]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The natural history of reproduction in Solanum and Lycianthes (Solanaceae) in a subtropical moist forest]]></article-title>
<source><![CDATA[Bull. Nat. Hist. Mus. Lond. (Bot.)]]></source>
<year>2002</year>
<volume>32</volume>
<page-range>125-136</page-range></nlm-citation>
</ref>
<ref id="B41">
<label>41</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Snow]]></surname>
<given-names><![CDATA[D.W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Tropical frugivorous birds and their food plants: A world survey]]></article-title>
<source><![CDATA[Biotropica]]></source>
<year>1981</year>
<volume>13</volume>
<page-range>1-14</page-range></nlm-citation>
</ref>
<ref id="B42">
<label>42</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sobrevila]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Arroyo]]></surname>
<given-names><![CDATA[M.T.K]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Breeding systems in a montane tropical cloud forest in Venezuela]]></article-title>
<source><![CDATA[Pl. Syst. Evol]]></source>
<year>1982</year>
<volume>140</volume>
<page-range>19-37</page-range></nlm-citation>
</ref>
<ref id="B43">
<label>43</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sokal]]></surname>
<given-names><![CDATA[R.R]]></given-names>
</name>
<name>
<surname><![CDATA[Rohlf]]></surname>
<given-names><![CDATA[F.J]]></given-names>
</name>
</person-group>
<source><![CDATA[Biometry]]></source>
<year>1981</year>
<edition>2nd</edition>
<publisher-loc><![CDATA[New York ]]></publisher-loc>
<publisher-name><![CDATA[W.H. Freeman]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B44">
<label>44</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Solomon]]></surname>
<given-names><![CDATA[B.P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sexual allocation and andromonoecy: Resource investment in male and hermaphrodite flowers of Solanum carolinense (Solanaceae)]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1986</year>
<volume>73</volume>
<page-range>1215-1221</page-range></nlm-citation>
</ref>
<ref id="B45">
<label>45</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Solomon]]></surname>
<given-names><![CDATA[B.P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The role of male flowers in Solanum carolinense: pollen donors or pollinator attractors?]]></article-title>
<source><![CDATA[Evol. Trends Pl]]></source>
<year>1987</year>
<volume>1</volume>
<page-range>89-93</page-range></nlm-citation>
</ref>
<ref id="B46">
<label>46</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stehmann]]></surname>
<given-names><![CDATA[J.R]]></given-names>
</name>
<name>
<surname><![CDATA[Semir]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Biologia reproductiva de Calibrachoa elegans (Miers) Stehmann & Semir (Solanaceae)]]></article-title>
<source><![CDATA[Revista Brasil. Bot]]></source>
<year>2001</year>
<volume>24</volume>
<page-range>43-49</page-range></nlm-citation>
</ref>
<ref id="B47">
<label>47</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sullivan]]></surname>
<given-names><![CDATA[J.R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Pollination biology of Physalis viscosa var. cineracens (Solanaceae)]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1984</year>
<volume>71</volume>
<page-range>815-820</page-range></nlm-citation>
</ref>
<ref id="B48">
<label>48</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sutherland]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Patterns of fruit-set: What controls fruit-flower ratios in plants?]]></article-title>
<source><![CDATA[Evolution]]></source>
<year>1986</year>
<volume>40</volume>
<page-range>117-128</page-range></nlm-citation>
</ref>
<ref id="B49">
<label>49</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sutherland]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Floral sex ratios, fruit-set, and resource allocation in plants]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>1986</year>
<volume>67</volume>
<page-range>991-1001</page-range></nlm-citation>
</ref>
<ref id="B50">
<label>50</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sutherland]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Why hemaphroditic plants produce many more flowers than fruits: Experimental tests with Agave mckelveyana]]></article-title>
<source><![CDATA[Evolution]]></source>
<year>1987</year>
<volume>4</volume>
<page-range>750-759</page-range></nlm-citation>
</ref>
<ref id="B51">
<label>51</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sutherland]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Delph]]></surname>
<given-names><![CDATA[L.F]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[On the importance of male fitness in plants: Patterns of fruit-set]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>1984</year>
<volume>65</volume>
<page-range>1093-1104</page-range></nlm-citation>
</ref>
<ref id="B52">
<label>52</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Symon]]></surname>
<given-names><![CDATA[D.E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Dioecious Solanums]]></article-title>
<source><![CDATA[Taxon]]></source>
<year>1970</year>
<volume>19</volume>
<page-range>909-910</page-range></nlm-citation>
</ref>
<ref id="B53">
<label>53</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Symon]]></surname>
<given-names><![CDATA[D.E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sex forms in Solanum (Solanaceae) and the role of pollen collecting insects]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Hawes]]></surname>
<given-names><![CDATA[J.G]]></given-names>
</name>
<name>
<surname><![CDATA[Lester]]></surname>
<given-names><![CDATA[R.N]]></given-names>
</name>
<name>
<surname><![CDATA[Skelding]]></surname>
<given-names><![CDATA[A.D]]></given-names>
</name>
</person-group>
<source><![CDATA[The biology and taxonomy of Solanaceae]]></source>
<year>1979</year>
<page-range>385-397</page-range><publisher-loc><![CDATA[London ]]></publisher-loc>
<publisher-name><![CDATA[Academic Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B54">
<label>54</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[van der Pijl]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<source><![CDATA[Principles of dispersal in higher plants]]></source>
<year>1972</year>
<edition>Second</edition>
<publisher-loc><![CDATA[New York ]]></publisher-loc>
<publisher-name><![CDATA[Springer-Verlag]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B55">
<label>55</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Vesprini]]></surname>
<given-names><![CDATA[J.L]]></given-names>
</name>
<name>
<surname><![CDATA[Galetto]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The reproductive biology of Jaborosa integrifolia (Solanaceae): Why its fruits are so rare?]]></article-title>
<source><![CDATA[Pl. Syst. Evol]]></source>
<year>2000</year>
<volume>225</volume>
<page-range>15-28</page-range></nlm-citation>
</ref>
<ref id="B56">
<label>56</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Voss]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Turner]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Inouye]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Fisher]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Cort]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Floral biology of Markea neurantha Hemsley (Solanaceae), a bat-pollinated epiphyte]]></article-title>
<source><![CDATA[Amer. Midl. Naturalist]]></source>
<year>1979</year>
<volume>103</volume>
<page-range>262-268</page-range></nlm-citation>
</ref>
<ref id="B57">
<label>57</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Willson]]></surname>
<given-names><![CDATA[M.F]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sexual selection in plants]]></article-title>
<source><![CDATA[Amer. Naturalist]]></source>
<year>1979</year>
<volume>113</volume>
<page-range>777-790</page-range></nlm-citation>
</ref>
<ref id="B58">
<label>58</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Willson]]></surname>
<given-names><![CDATA[M.F]]></given-names>
</name>
</person-group>
<person-group person-group-type="editor">
<name>
</name>
</person-group>
<source><![CDATA[Plant Reproductive Ecology]]></source>
<year>1983</year>
<publisher-loc><![CDATA[New York ]]></publisher-loc>
<publisher-name><![CDATA[John Wiley & Sons]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B59">
<label>59</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Willson]]></surname>
<given-names><![CDATA[M.F]]></given-names>
</name>
</person-group>
<person-group person-group-type="editor">
<name>
</name>
<name>
<surname><![CDATA[Burley]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<source><![CDATA[Mate choice in plants: Tactics, mechanisms, and consequences]]></source>
<year>1983</year>
<publisher-loc><![CDATA[Princeton ]]></publisher-loc>
<publisher-name><![CDATA[Princeton Univ. Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B60">
<label>60</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Yamplosky]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Yamplosky]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Distribution of sex forms in the phanerogamic flora]]></article-title>
<source><![CDATA[Biblioth. Genet]]></source>
<year>1922</year>
<volume>3</volume>
<page-range>1-62</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>
