<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0084-5906</journal-id>
<journal-title><![CDATA[Acta Botánica Venezuelica]]></journal-title>
<abbrev-journal-title><![CDATA[Acta Bot. Venez.]]></abbrev-journal-title>
<issn>0084-5906</issn>
<publisher>
<publisher-name><![CDATA[Fundación Instituto Botánico de Venezuela Dr. Tobías Lasser]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0084-59062005000200006</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Anatomía ecológica del xilema secundario de un bosque seco tropical de Venezuela]]></article-title>
<article-title xml:lang="en"><![CDATA[Ecological anatomy of secondary xylem in a tropical dry forest of Venezuela]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[LEÓN H]]></surname>
<given-names><![CDATA[Williams J]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad de Los Andes Facultad de Ciencias Forestales y Ambientales Departamento de Botánica]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>00</month>
<year>2005</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>00</month>
<year>2005</year>
</pub-date>
<volume>28</volume>
<numero>2</numero>
<fpage>257</fpage>
<lpage>274</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0084-59062005000200006&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0084-59062005000200006&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0084-59062005000200006&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[Se estudió la anatomía de la madera de 51 individuos de especies arbóreas colectados en el bosque El Caimital, que corresponde a un bosque seco tropical, y se correlacionó la estructura anatómica con las condiciones del medio ambiente. Las características estudiadas fueron número de poros por mm², diámetro de poros, diámetro de punteaduras, longitud de elementos vasculares, tipo de platinas de perforación, presencia de cristales y sílice. Se determinaron los índices de vulnerabilidad, mesomorfía y agrupamiento de vasos. En general se observó un predominio de caracteres que se orientan hacia la eficiencia de la conducción. Según el tamaño de los poros, número de vasos y los índices de vulnerabilidad y mesomorfía, el leño de los individuos estudiados puede designarse como mesomórfico.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[The wood anatomy of 51 trees from El Caimital forest were studied from an ecological perspective and were compared with data from other habitats. The features studied were vessel frequency, vessel diameter, vessel element length, perforation plates, intervessel pit size, presence of crystals and silica. Vulnerability, mesomorphy and vessels grouping index were calculated. A predominance of characters towards hydraulic efficiency was observed. In accordance with vessel size, vessel number, mesomorphy and vulnerability index, the wood of the studied individuals can be characterized as mesomorphic.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Ecoanatomía]]></kwd>
<kwd lng="es"><![CDATA[ndice de vulnerabilidad]]></kwd>
<kwd lng="es"><![CDATA[Mesomorfía]]></kwd>
<kwd lng="es"><![CDATA[Bosque seco tropical]]></kwd>
<kwd lng="es"><![CDATA[Disponibilidad de agua]]></kwd>
<kwd lng="es"><![CDATA[Barinas]]></kwd>
<kwd lng="es"><![CDATA[Venezuela]]></kwd>
<kwd lng="en"><![CDATA[Ecological wood anatomy]]></kwd>
<kwd lng="en"><![CDATA[Vulnerability index]]></kwd>
<kwd lng="en"><![CDATA[Mesomorphy]]></kwd>
<kwd lng="en"><![CDATA[Water availability]]></kwd>
<kwd lng="en"><![CDATA[Dry tropical forest]]></kwd>
<kwd lng="en"><![CDATA[Barinas]]></kwd>
<kwd lng="en"><![CDATA[Venezuela]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[   <B>    <P ALIGN="center"><font face="Verdana">ANATOM&Iacute;A ECOL&Oacute;GICA DEL XILEMA SECUNDARIO DE UN BOSQUE SECO TROPICAL DE VENEZUELA</font></P>     <P ALIGN="center"><font face="Verdana">Ecological anatomy of secondary xylem in a tropical dry forest of Venezuela</font></P>     <P ALIGN="center"><font face="Verdana" size="2">Williams J. LE&Oacute;N H.</font></P> </B>    <P ALIGN="justify"><font face="Verdana" size="2">Universidad de Los Andes. Facultad de Ciencias Forestales y Ambientales. Departamento de Bot&aacute;nica. Laboratorio de Anatom&iacute;a de Maderas.</font><font face="Verdana" size="2"><I> </I>wleon@ula.ve</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">RESUMEN</font></P> </B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Se estudi&oacute; la anatom&iacute;a de la madera de 51 individuos de especies arb&oacute;reas colectados en el bosque El Caimital, que corresponde a un bosque seco tropical, y se correlacion&oacute; la estructura anat&oacute;mica con las condiciones del medio ambiente. Las caracter&iacute;sticas estudiadas fueron n&uacute;mero de poros por mm<sup>2</sup>, di&aacute;metro de poros, di&aacute;metro de punteaduras, longitud de elementos vasculares, tipo de platinas de perforaci&oacute;n, presencia de cristales y s&iacute;lice. Se determinaron los &iacute;ndices de vulnerabilidad, mesomorf&iacute;a y agrupamiento de vasos. En general se observ&oacute; un predominio de caracteres que se orientan hacia la eficiencia de la conducci&oacute;n. Seg&uacute;n el tama&ntilde;o de los poros, n&uacute;mero de vasos y los &iacute;ndices de vulnerabilidad y mesomorf&iacute;a, el le&ntilde;o de los individuos estudiados puede designarse como mesom&oacute;rfico.</font></P> <B>    <P ALIGN="JUSTIFY"><font size="2" face="Verdana">Palabras clave: </font> </B> <font face="Verdana"><font size="2">Ecoanatom&iacute;a, &Iacute;ndice de vulnerabilidad, Mesomorf&iacute;a, Bosque seco tropical, Disponibilidad de agua, Barinas,Venezuela</font></font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">ABSTRACT</font></P> </B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">The wood anatomy of 51 trees from El Caimital forest were studied from an ecological perspective and were compared with data from other habitats. The features studied were vessel frequency, vessel diameter, vessel element length, perforation plates, intervessel pit size, presence of crystals and silica. Vulnerability, mesomorphy and vessels grouping index were calculated. A predominance of characters towards hydraulic efficiency was observed. In accordance with vessel size, vessel number, mesomorphy and vulnerability index, the wood of the studied individuals can be characterized as mesomorphic.</font></P> <B>    ]]></body>
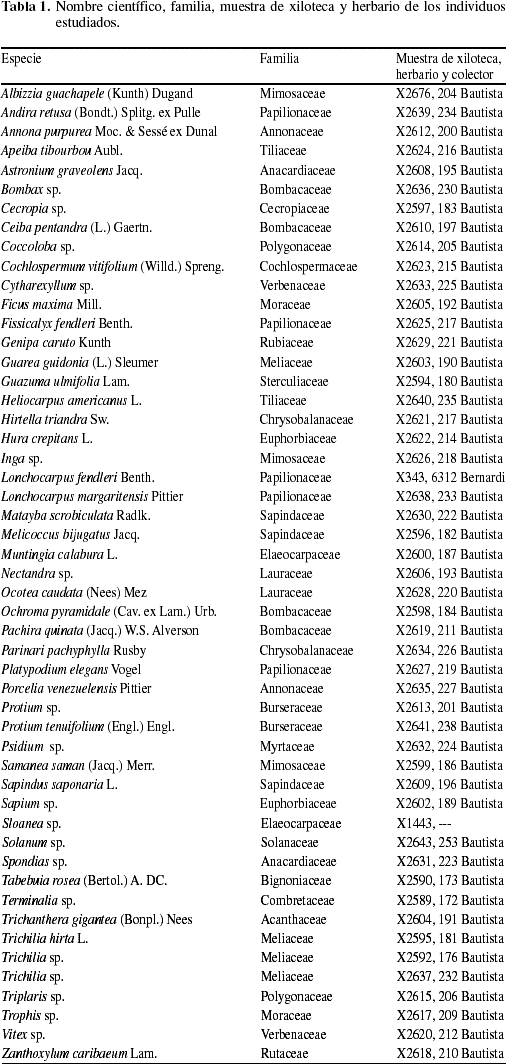
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana"><font size="2">Key words: </font> </font> </B><font face="Verdana"><font size="2">Ecological wood anatomy, Vulnerability index, Mesomorphy,Water availability, Dry tropical forest, Barinas,Venezuela</font></font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">INTRODUCCI&Oacute;N</font></P> </B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">La relaci&oacute;n entre estructura de la madera y factores clim&aacute;ticos ha sido reconocida desde hace muchos a&ntilde;os. Se han realizado diferentes estudios con &eacute;nfasis en el an&aacute;lisis del efecto de algunos par&aacute;metros ecol&oacute;gicos como humedad, temperatura, estacionalidad, altitud y distribuci&oacute;n geogr&aacute;fica sobre caracteres anat&oacute;micos cuantitativos como di&aacute;metro de poros, frecuencia de vasos, grado de agrupamiento de los vasos, longitud de elementos vasculares y tama&ntilde;o de punteaduras intervasculares. Tambi&eacute;n se ha hecho &eacute;nfasis en la presencia de engrosamientos espiralados y platinas de perforaci&oacute;n escalariformes, as&iacute; como de un sistema de conducci&oacute;n subsidiario representado por elementos traqueales imperforados (Lindorf 1994). Las tendencias ecol&oacute;gicas han sido interpretadas como el resultado de adaptaciones funcionales a factores ambientales y al considerar el transporte de agua como una de las principales funciones del xilema (Zhang <I>et al. </I>1992), es l&oacute;gico esperar que los estudios ecoanat&oacute;micos est&eacute;n orientados hacia aspectos relacionados con los elementos de conducci&oacute;n.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">La realizaci&oacute;n de estudios ecoanat&oacute;micos ha tomado en consideraci&oacute;n el an&aacute;lisis de la estructura de la madera de diferentes ambientes, desde condiciones de aridez hasta de selva nublada. Las tendencias ecol&oacute;gicas y evolutivas en cuanto al di&aacute;metro de los poros, tipo de platinas de perforaci&oacute;n, frecuencia de vasos, longitud de elementos vasculares, longitud total de vasos y tipos de fibras han sido discutidas en t&eacute;rminos de seguridad y eficiencia en el transporte de agua. Tanto la eficiencia o m&aacute;xima conductividad como la seguridad est&aacute;n fuertemente relacionadas con el di&aacute;metro y frecuencia de vasos, observ&aacute;ndose que un aumento del di&aacute;metro de los poros incrementa notablemente la eficiencia en cuanto a conducci&oacute;n, pero al mismo tiempo disminuye la seguridad (Sidiyasa &amp; Baas 1998). Los estudios ecoanat&oacute;micos han buscado conocer c&oacute;mo var&iacute;an algunos elementos xilem&aacute;ticos ante cambios en las condiciones del medio donde crece la planta (Baas 1973; Dickinson <I>et al. </I>1978; Oever <I>et al. </I>1981; Baas <I>et al. </I>1983; Baas &amp; Carlquist 1985; Carlquist &amp; Hoekman 1985; Zhang <I>et al. </I>1992; Villagra &amp; Roig 1997; Sidiyasa &amp; Baas 1998; Moglia &amp; L&oacute;pez 2001). En Venezuela son pocos los trabajos que se han realizado en este aspecto, destacando los de P&eacute;rez (1989), Silva (1991), Lindorf (1994, 1997), Le&oacute;n (2001) y Araque &amp; G&aacute;mez (2004), donde tomaron como elemento b&aacute;sico de an&aacute;lisis los &iacute;ndices de vulnerabilidad y mesomorf&iacute;a propuestos por Carlquist (1977), con los cuales se busca determinar el grado de seguridad o eficiencia que presentan los elementos de conducci&oacute;n que se desarrollan en un medio determinado. Estos &iacute;ndices consideran aspectos fundamentales del tejido de conducci&oacute;n como di&aacute;metro, frecuencia y longitud del elemento vascular. Algunos autores han argumentado la carencia de significado predictivo o funcional de estos &iacute;ndices, bas&aacute;ndose en el hecho de que en algunos casos los valores obtenidos muestran un amplio rango de variaci&oacute;n, a pesar de la uniformidad del h&aacute;bitat (Lindorf 1994). Sin embargo, a pesar de esas amplias variaciones, los &iacute;ndices de Carlquist son los &uacute;nicos que se han propuesto para determinar relaciones de elementos de conducci&oacute;n con el medio donde crece la planta, y las razones por las cuales son objetados se deben a que parte de esas caracter&iacute;sticas tienen que ver con aspectos gen&eacute;ticos y evolutivos propios de cada especie.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">En el pa&iacute;s se han realizado algunos estudios ecoanat&oacute;micos de la madera para diferentes zonas de vida, pero no se tienen reportes para una de las de mayor amplitud y en la cual se encuentra el &aacute;rea de estudio: el bosque seco tropical. En este sentido, el presente trabajo tiene como objetivo establecer la relaci&oacute;n entre la estructura de la madera y las caracter&iacute;sticas del medio ambiente de individuos de porte arb&oacute;reo de diferentes especies que crecen en la zona conocida como bosque El Caimital, Barinas.</font></P> <B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">MATERIALES Y M&Eacute;TODOS</font></P> </B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">El material de estudio est&aacute; representado por muestras de madera colectadas en la zona conocida con el nombre de El Caimital, estado Barinas. Esta localidad pertenece a la zona de vida del Bosque Seco Tropical (BST). Seg&uacute;n Veillon (1985), las caracter&iacute;sticas clim&aacute;ticas generales del &aacute;rea de estudio son las siguientes: precipitaci&oacute;n media anual de 1400-1500 mm con 4-5 meses de sequ&iacute;a, temperatura media anual de 26°C, 100-150 m snm, terrenos planos, suelos generalmente arcillosos y pertenecientes a la categor&iacute;a de Vertisoles. Las muestras estudiadas (<a href="#t1">Tabla 1</a>) pertenecen a la colecci&oacute;n de la Xiloteca MERv del Laboratorio de Anatom&iacute;a de Maderas y cuentan con el material bot&aacute;nico de respaldo en el herbario MER, ambos adscritos a la Universidad de Los Andes. Para la realizaci&oacute;n del estudio microsc&oacute;pico se hicieron cortes con un micr&oacute;tomo de deslizamiento para obtener secciones transversales, radiales y tangenciales de 15-25 µm de espesor y como medio de tinci&oacute;n se utiliz&oacute; la soluci&oacute;n de safranina (Corothie 1967). La preparaci&oacute;n de macerados se realiz&oacute; sumergiendo astillas en una soluci&oacute;n de per&oacute;xido de hidr&oacute;geno y &aacute;cido ac&eacute;tico glacial (2:1) e introduci&eacute;ndolas en estufa a 60°C durante 12 horas (Franklin 1937). Las caracter&iacute;sticas tomadas en consideraci&oacute;n corresponden a di&aacute;metro de poros, n&uacute;mero de poros por mm<sup>2</sup>, agrupaci&oacute;n de poros, longitud de elementos vasculares, di&aacute;metro de punteaduras intervasculares, presencia de traqueidas vasculares o vasic&eacute;ntricas, tipo de platinas de perforaci&oacute;n y presencia de cristales. Para determinar el n&uacute;mero de mediciones realizadas en cada uno de los caracteres mencionados y categorizarlos se utiliz&oacute; lo establecido por IAWA Committee (1989). Adicionalmente se calcularon los &iacute;ndices de vulnerabilidad (IV) y mesomorf&iacute;a (IM) propuestos por Carlquist (1977), as&iacute; como el &iacute;ndice de agrupamiento de vasos (IVg). Las f&oacute;rmulas utilizadas para cada uno de estos &iacute;ndices fueron las siguientes:</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">IV = Di&aacute;metro de poros/poros por mm<sup>2</sup></font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">IM = IV x Longitud de elementos vasculares</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">IVg = N&uacute;mero total de poros / N&uacute;mero de grupos de poros</font></P>     ]]></body>
<body><![CDATA[<P ALIGN="center"><a name="t1"> <img border="0" src="/img/fbpe/abv/v28n2/art06tab1.gif" width="506" height="1064"></a></P>     
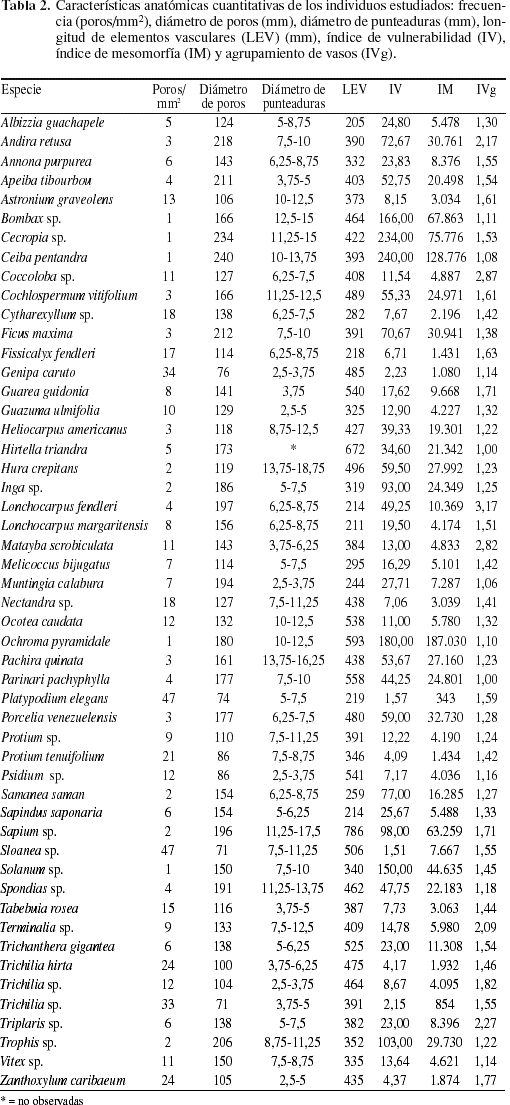
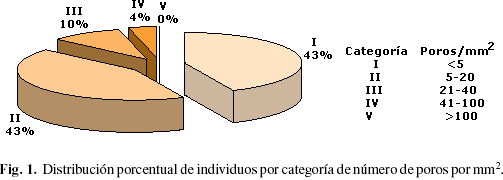
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Se establecieron comparaciones con los valores obtenidos para la selva nublada andina (P&eacute;rez 1989), para un bosque muy seco tropical (Lindorf 1994), en la zona de vida de bosque h&uacute;medo premontano (Araque &amp; G&aacute;mez 2004) y para el bosque higr&oacute;filo o manglar (Le&oacute;n 2001).</font></P> <B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">RESULTADOS</font></P> </B>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">En la <a href="#t2">Tabla 2</a> se presentan los valores correspondientes a poros por mm<sup>2</sup>, di&aacute;metro de poros, di&aacute;metro de punteaduras, longitud de elementos vasculares, &iacute;ndices de vulnerabilidad, mesomorf&iacute;a y de agrupamiento de vasos para cada individuo estudiado. Para la frecuencia de poros se observ&oacute; que m&aacute;s del 80% de los individuos poseen menos de 20 poros por mm<sup>2</sup> y dentro de este rango, 43,14% de los individuos presenta un n&uacute;mero de poros inferior a 5 por mm<sup>2</sup> (<a href="#f1">Fig. 1</a>).</font></P>     <P ALIGN="center"><a name="t2"> <img border="0" src="/img/fbpe/abv/v28n2/art06tab2.gif" width="510" height="1105"></a></P>     
<P ALIGN="center"><a name="f1"> <img border="0" src="/img/fbpe/abv/v28n2/art06img01.gif" width="503" height="180"></a></P>     
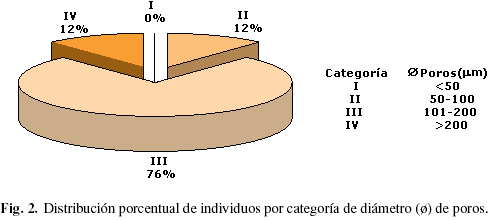
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Con relaci&oacute;n al di&aacute;metro promedio de los poros (<a href="#t2">Tabla 2</a>), el promedio m&iacute;nimo fue 71 µm para <I>Sloanea </I>sp. y <I>Trichilia </I>sp. y el m&aacute;ximo fue 240 µm en <I>Ceiba pentandra</I>. La mayor parte de los individuos estudiados poseen poros medianos (<a href="#f2">Fig. 2</a>), observ&aacute;ndose que 76,48% del material de estudio se ubic&oacute; en esta categor&iacute;a.</font></P>     <P ALIGN="center"><a name="f2"> <img border="0" src="/img/fbpe/abv/v28n2/art06img02.gif" width="488" height="220"></a></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Con respecto al tama&ntilde;o de las punteaduras, 9,8% de los individuos present&oacute; punteaduras exclusivamente diminutas, 11,77% punteaduras de diminutas a peque&ntilde;as, 1,96% con punteaduras exclusivamente peque&ntilde;as, 29,41% con punteaduras peque&ntilde;as a medianas, 11,77% de punteaduras exclusivamente medianas, 11,76% con punteaduras medianas a grandes y 21,57% de los individuos present&oacute; punteaduras exclusivamente grandes. En el caso de <I>Hirtella triandra </I>no se observaron punteaduras y este individuo representa 1,96% del total estudiado.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Las platinas de perforaci&oacute;n son exclusivamente simples en 94,23% del material estudiado mientras que 5,77% present&oacute; una combinaci&oacute;n de platinas simples y m&uacute;ltiples. El desarrollo de platinas m&uacute;ltiples se observ&oacute; en forma de platinas foraminadas y radiadas en <I>Cytharexyllum </I>sp., escalariformes en <I>Nectandra </I>sp., y reticuladas en <I>Sloanea </I>sp.</font></P>     ]]></body>
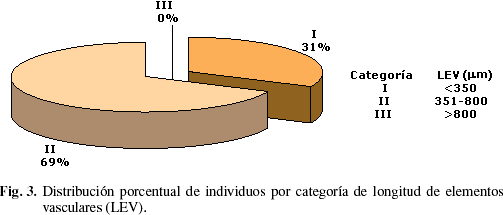
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">La longitud promedio de los elementos vasculares oscil&oacute; entre un m&iacute;nimo de 205 µm en <I>Albizzia guachapele </I>y un m&aacute;ximo de 786 µm en <I>Sapium </I>sp. En la distribuci&oacute;n de individuos por categor&iacute;a de longitud de elementos vasculares se observa que 68,63% de los individuos se ubica en la categor&iacute;a de elementos vasculares medianos (<a href="#f3">Fig. 3</a>).</font></P>     <P ALIGN="center"><a name="f3"> <img border="0" src="/img/fbpe/abv/v28n2/art06img03.gif" width="503" height="215"></a></P>     
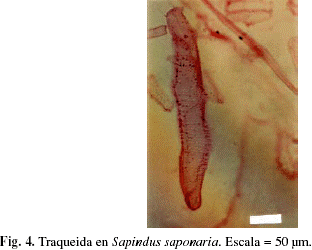
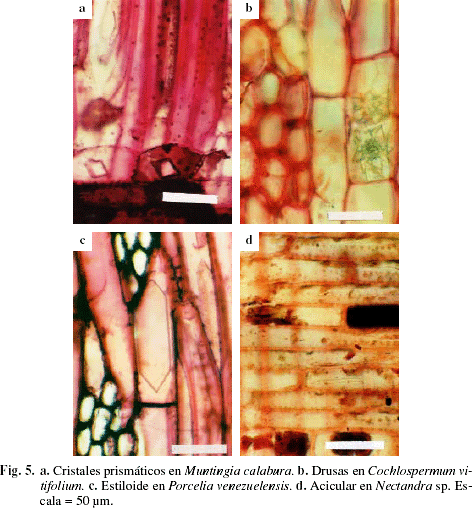
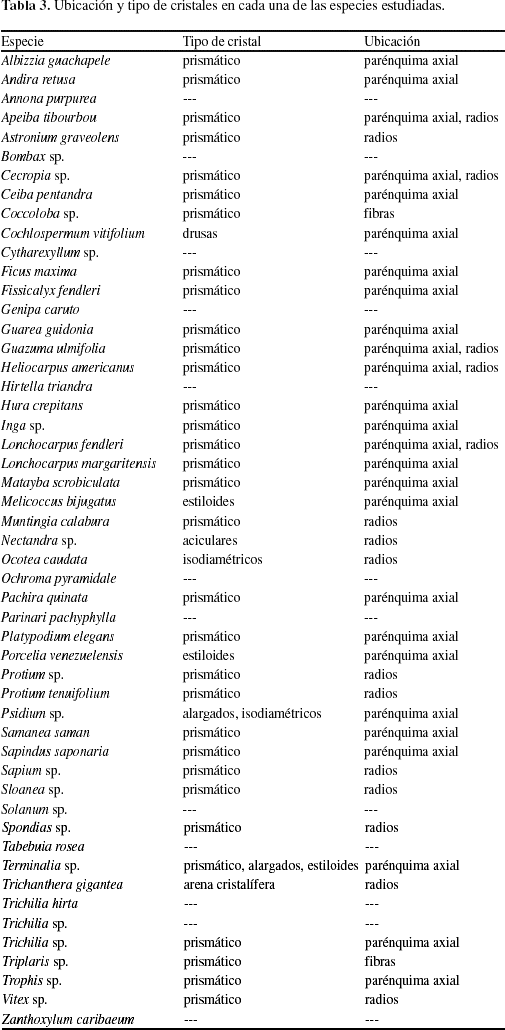
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">La presencia de traqueidas s&oacute;lo se observ&oacute; en la especie <I>Sapindus saponaria </I>(<a href="#f4">Fig. 4</a>). Los cristales se presentaron en 76,92% de los individuos estudiados y el principal tipo de cristal encontrado fue el prism&aacute;tico (<a href="#f5">Fig. 5a</a>), aunque tambi&eacute;n se observaron drusas en <I>Cochlospermum vitifolium </I>(<a href="#f5">Fig. 5b</a>), estiloides en <I>Melicoccus bijugatus, Porcelia venezuelensis </I>(<a href="#f5">Fig. 5c</a>) y <I>Terminalia </I>sp., aciculares en <I>Nectandra </I>sp. (<a href="#f5">Fig. 5d</a>), isodiam&eacute;tricos en <I>Ocotea </I>sp., <I>Psidium </I>sp., alargados en <I>Psidium </I>sp., <I>Terminalia </I>sp. y arena cristal&iacute;fera en <I>Trichanthera gigantea</I>. Los cristales com&uacute;nmente se presentaron en c&eacute;lulas parenquim&aacute;ticas axiales y/o radiales, exceptuando los dos representantes de la familia Polygonaceae (<I>Coccoloba </I>sp., <I>Triplaris </I>sp.), donde los cristales se ubicaron en las fibras (<a href="#t3">Tabla 3</a>). La presencia de s&iacute;lice se observ&oacute; s&oacute;lo en cuatro especies (<I>Hirtella triandra, Parinari pachyphyllum, Protium tenuifolium, Trichilia </I>sp.), lo cual representa 7,69% del material estudiado.</font></P>     <P ALIGN="center"><a name="f4"> <img border="0" src="/img/fbpe/abv/v28n2/art06img04.gif" width="312" height="250"></a></P>     
<P ALIGN="center"><a name="f5"> <img border="0" src="/img/fbpe/abv/v28n2/art06img05.gif" width="472" height="508"></a></P>     
<P ALIGN="center"><a name="t3"> <img border="0" src="/img/fbpe/abv/v28n2/art06tab3.gif" width="505" height="1030"></a></P>     
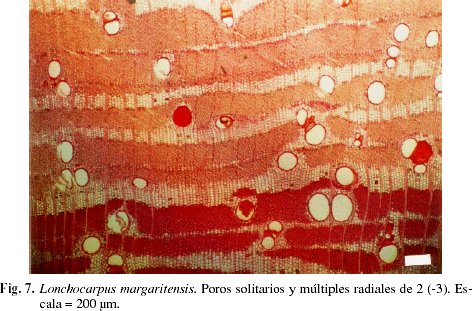
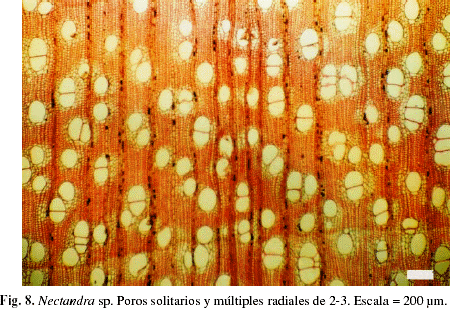
<P ALIGN="JUSTIFY"><font face="Verdana" size="2">El valor correspondiente a los &iacute;ndices de vulnerabilidad y mesomorf&iacute;a (<a href="#t2">Tabla 2</a>) indican que todos los individuos presentan un le&ntilde;o con comportamiento mesom&oacute;rfico, sin embargo se observa un amplio rango de variaci&oacute;n entre individuos, oscilando el &iacute;ndice de vulnerabilidad entre 1,51 (<I>Sloanea </I>sp.) y 240 (<I>Ceiba pentandra</I>). Se presenta la distribuci&oacute;n porcentual de individuos por categor&iacute;as de &iacute;ndice de vulnerabilidad, observ&aacute;ndose que el mayor porcentaje se encuentra en la categor&iacute;a que incluye individuos con &iacute;ndice de vulnerabilidad menor de diez (<a href="#f6">Fig. 6</a>). Con relaci&oacute;n al &iacute;ndice de mesomorf&iacute;a (<a href="#t2">Tabla 2</a>), los valores obtenidos oscilaron entre un m&iacute;nimo de 343 en <I>Platypodium elegans </I>y un m&aacute;ximo de 187.030 en <I>Ochroma pyramidale</I>. La combinaci&oacute;n de poros solitarios y m&uacute;ltiples (<a href="#f7">Fig. 7</a>,  <a href="#f8">8</a>), expresada a trav&eacute;s del &iacute;ndice de agrupamiento de vasos, alcanz&oacute; su valor m&aacute;ximo en <I>Lonchocarpus fendleri </I>con 3,17, mientras que el m&iacute;nimo se observ&oacute; en <I>Hirtella triandra, Muntingia calabura </I>y <I>Parinari pachyphylla</I>, en las cuales dicho &iacute;ndice alcanza valores cercanos a la unidad.</font></P>     <P align="center"><a name="f6"> <img border="0" src="/img/fbpe/abv/v28n2/art06img06.gif" width="503" height="196"></a></P>     
<P align="center"><a name="f7"> <img border="0" src="/img/fbpe/abv/v28n2/art06img07.gif" width="472" height="311"></a></P>     
<P align="center"><a name="f8"> <img border="0" src="/img/fbpe/abv/v28n2/art06img08.gif" width="450" height="310"></a></P> <B>     
]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">DISCUSI&Oacute;N</font></P> </B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Seg&uacute;n Carlquist &amp; Hoekman (1985), los principales indicadores de mesomorf&iacute;a son n&uacute;mero reducido de vasos por mm<sup>2</sup> y por grupo, amplio di&aacute;metro de poros, elementos vasculares largos y ausencia tanto de traqueidas como de engrosamientos espiralados. Lindorf (1994) se&ntilde;ala que las especies con rasgos mesom&oacute;rficos desarrollan una estructura conectada con una alta eficiencia, pero una baja seguridad de conducci&oacute;n, lo cual se manifiesta con vasos o poros de mayor tama&ntilde;o y en menor n&uacute;mero por unidad de superficie. Estas caracter&iacute;sticas coinciden con lo observado en el presente estudio. Mientras m&aacute;s se aleja el &iacute;ndice de vulnerabilidad del valor correspondiente a la unidad significa una mayor orientaci&oacute;n hacia condiciones que garanticen la eficiencia de la conductividad en sacrificio de la seguridad. Cerca de 26% de los individuos estudiados mostraron &iacute;ndices de vulnerabilidad menores de 10, lo que indica eficiencia en conducci&oacute;n combinada con cierto grado de seguridad. El 74% restante se ubic&oacute; en valores superiores y aproximadamente 12% de los individuos presentaron &iacute;ndices de vulnerabilidad mayores de 100 lo que indica su mayor orientaci&oacute;n hacia la eficiencia en la conducci&oacute;n hidr&aacute;ulica.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Desde el punto de vista de frecuencia de poros, la zona de bosque seco tropical se caracteriza porque los individuos arb&oacute;reos que all&iacute; se desarrollan tienden a tener un n&uacute;mero de poros por mm<sup>2</sup> bajo, mientras que en condiciones extremas de aridez (bosque muy seco tropical) o excesiva humedad y salinidad (manglar), la tendencia es a desarrollar mayor n&uacute;mero de elementos de conducci&oacute;n. Lindorf (1994) reporta para un bosque muy seco tropical un n&uacute;mero de poros por mm<sup>2</sup> entre 24 y 208, mientras que para una selva nublada P&eacute;rez (1989) menciona valores que van desde 3 hasta 64 poros por mm<sup>2</sup> y 50% de los individuos estudiados corresponden a diez o menos poros por mm<sup>2</sup>, Le&oacute;n (2001) reporta valores que var&iacute;an entre 10 y 40 para una zona de manglar y Araque &amp; G&aacute;mez (2004) se&ntilde;alan que en la especie <I>Ochotereneae colombiana </I>que crece en zona de bosque h&uacute;medo premontano se encontraron entre 9 y 14 poros por mm<sup>2</sup>. En la zona de estudio se observ&oacute; que m&aacute;s de 80% de los individuos estudiados poseen 20 o menos poros por mm<sup>2</sup>, valores que son notablemente inferiores a los encontrados en condiciones de bosque muy seco tropical o de manglar.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">El comportamiento encontrado al comparar los resultados obtenidos con lo reportado para el bosque muy seco tropical y el bosque h&uacute;medo montano coinciden con lo mencionado por Zhang <I>et al. </I>(1992) quienes, estudiando la familia Rosaceae, indican que la frecuencia de vasos aumenta a medida que disminuye la disponibilidad de humedad. Igualmente,Moglia &amp; L&oacute;pez (2001) se&ntilde;alan que los elementos de los vasos disminuyen su di&aacute;metro y longitud, aumentan su frecuencia y espesor de pared celular, as&iacute; como tambi&eacute;n tienden a agruparse en mayor proporci&oacute;n para prevenir el colapso bajo condiciones de presiones negativas a medida que aumenta el grado de aridez.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">El di&aacute;metro de los vasos es probablemente la variable m&aacute;s importante para garantizar la eficiencia en la conducci&oacute;n de agua, observ&aacute;ndose que &eacute;sta aumenta a medida que se incrementa el di&aacute;metro de los vasos; pero al mismo tiempo disminuye la seguridad debido a la relaci&oacute;n inversa que mantiene con la frecuencia de poros (Zhang <I>et al. </I>1992); mientras que los vasos estrechos son m&aacute;s seguros debido a que al encontrarse en mayor n&uacute;mero, los embolismos locales no afectan una parte considerable del tejido de conducci&oacute;n (Baas <I>et al. </I>1983). El hecho que 88,2% de los individuos estudiados se ubiquen en la categor&iacute;a de poros medianos a grandes se&ntilde;ala que para la zona de estudio existe una orientaci&oacute;n hacia la eficiencia de la conducci&oacute;n, al igual que ocurre en la selva nublada donde, seg&uacute;n P&eacute;rez (1989), 65,8% de los individuos poseen poros medianos. Por el contrario, para el bosque muy seco tropical 5,3% de los individuos posee poros medianos y 94,7% poseen poros de muy peque&ntilde;os a peque&ntilde;os (Lindorf 1994), mientras que en la zona de manglar 91,3% poseen poros peque&ntilde;os (Le&oacute;n 2001), lo que indica que en estas dos &uacute;ltimas zonas de vida existe mayor tendencia hacia el desarrollo de elementos de conducci&oacute;n con caracter&iacute;sticas orientadas hacia la seguridad.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">A medida que disminuye la cantidad de humedad disponible se produce un acortamiento en la longitud de los elementos vasculares, esto coincide con lo obtenido en el presente estudio y concuerda con lo que ocurre en otras zonas de vida. Lindorf (1994) se&ntilde;ala, para el bosque muy seco tropical, que 84,2% de los individuos desarrolla elementos vasculares cortos, mientras que en la selva nublada andina P&eacute;rez (1989) reporta que 55% se ubican en la categor&iacute;a de elementos vasculares medianos, 13% cortos y 32% largos. Con relaci&oacute;n al manglar, Le&oacute;n (2001) se&ntilde;ala que 50% de los individuos posee elementos vasculares cortos y 50% medianos. Los valores obtenidos en la zona de estudio indican que aproximadamente 69% de los individuos poseen elementos vasculares medianos, lo cual es mayor a lo encontrado en las zonas de vida antes mencionadas. Dentro de las tres zonas de vida comparadas, la menor disponibilidad de humedad ocurre en la zona correspondiente al bosque muy seco tropical y all&iacute; es donde se desarrolla la mayor proporci&oacute;n de individuos con elementos vasculares cortos; en la zona de bosque tropical se observa una reducci&oacute;n del n&uacute;mero de individuos con elementos vasculares cortos y un notable incremento en la categor&iacute;a de medianos, pero sin desarrollarse individuos con elementos vasculares largos. En el extremo opuesto, representado por la zona de vida correspondiente a la selva nublada o bosque h&uacute;medo montano, disminuye a&uacute;n m&aacute;s la proporci&oacute;n de individuos con elementos vasculares cortos y se observa un notable porcentaje con elementos vasculares largos.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Al establecer comparaciones con otras zonas de vida, especialmente con la selva nublada o bosque h&uacute;medo montano y el bosque muy seco tropical se observa que el comportamiento en la zona de estudio se manifiesta como intermedio entre lo reportado por Lindorf (1994) para el bosque muy seco tropical y lo indicado por P&eacute;rez (1989) para el bosque h&uacute;medo montano. Esto es una respuesta ante las diferentes condiciones representadas por cada una de estas zonas de vida. Mientras que el &aacute;rea del bosque El Caimital presenta precipitaci&oacute;n promedio de 1.400-1.500 mm/a&ntilde;o con 4-5 meses de sequ&iacute;a (Veillon 1985), la zona de bosque muy seco tropical tiene precipitaci&oacute;n promedio anual de 558 mm, siete meses de sequ&iacute;a y una tasa de evapotranspiraci&oacute;n que, en muchos casos, sobrepasa a la precipitaci&oacute;n (Lindorf 1994). La zona de selva nublada o bosque h&uacute;medo montano reportada por P&eacute;rez (1989) corresponde a &aacute;reas con m&aacute;s de 2.000 mm de precipitaci&oacute;n promedio anual y cerca de 10 meses de lluvia. Tanto en el bosque h&uacute;medo montano como en el bosque seco tropical, todos los individuos tienen un comportamiento de tipo mesom&oacute;rfico, mientras que en el bosque muy seco tropical la tendencia es hacia un comportamiento xerom&oacute;rfico.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">El &iacute;ndice de agrupamiento de vasos presenta valores que est&aacute;n, en la mayor&iacute;a de los casos, por encima de la unidad. Solamente en las especies <I>Hirtella triandra, Muntingia calabura </I>y <I>Parinari pachyphylla </I>se observaron valores que indican la presencia de poros exclusivamente solitarios. El grado de contacto entre los poros es un elemento importante tanto en la eficiencia como en seguridad de conducci&oacute;n debido a que garantiza la posibilidad de mayores longitudes de desplazamiento de la columna de agua, o sea que representan rutas alternas en caso que ocurran embolismos. En las especies con &iacute;ndice de agrupamiento de vasos cercanos a la unidad, se observ&oacute; que tienen un di&aacute;metro promedio de poros mayor de 150 µm; esto permite inferir que a pesar de existir un n&uacute;mero reducido de &aacute;reas de contacto entre vasos adyacentes, desarrollan elementos de conducci&oacute;n con di&aacute;metros grandes para movilizar la mayor cantidad de humedad posible y aprovechar al m&aacute;ximo las pocas &aacute;reas de contacto existentes. Villagra &amp; Roig (1997) se&ntilde;alan que el agrupamiento de los vasos, as&iacute; como su frecuencia, permiten maximizar la seguridad del sistema hidr&aacute;ulico al proporcionar v&iacute;as alternativas para la conducci&oacute;n de agua, especialmente en las especies que carecen de traqueidas. Aunque P&eacute;rez (1989) y Lindorf (1994) no calcularon el &iacute;ndice de agrupamiento de vasos, es importante notar que para el bosque muy seco tropical 90% de las especies estudiadas poseen vasos m&uacute;ltiples, con un promedio de 3,6 vasos por grupo. Este valor es mayor al observado en el presente estudio donde la mayor&iacute;a de las especies se caracteriz&oacute; por poseer una combinaci&oacute;n de vasos solitarios y m&uacute;ltiples predominantemente de 2-3 vasos por agrupaci&oacute;n. Seg&uacute;n Carlquist (1984), citado por Lindorf (1997), el agrupamiento de los vasos garantiza una mayor seguridad en la conducci&oacute;n ya que permite que la movilizaci&oacute;n de agua que se efect&uacute;a a trav&eacute;s de un vaso pueda continuar a trav&eacute;s de los vasos adyacentes. Tomando en consideraci&oacute;n este criterio, es l&oacute;gico esperar que el &iacute;ndice de agrupamiento de vasos sea mayor en la zona correspondiente al bosque muy seco tropical.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Las punteaduras intervasculares observadas fueron exclusivamente alternas y este tipo de punteaduras es considerado como el m&aacute;s evolucionado, en comparaci&oacute;n con los tipos escalariforme y opuesto, y la m&aacute;s eficiente para la conducci&oacute;n. El amplio rango de variaci&oacute;n encontrado en el tama&ntilde;o de las punteaduras est&aacute; directamente relacionado con los grupos taxon&oacute;micos presentes en el &aacute;rea de estudio ya que representantes de familias como Meliaceae se caracterizan por el desarrollo de punteaduras diminutas o peque&ntilde;as, mientras que los de la familia Lauraceae tienden a desarrollar punteaduras grandes, independientemente del lugar donde se encuentren.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">El valor correspondiente al &iacute;ndice de vulnerabilidad indica que 100% de los individuos presentan un le&ntilde;o con comportamiento de tipo mesom&oacute;rfico. Este &iacute;ndice trata de expresar la seguridad de conducci&oacute;n ante la diferencia de condiciones ambientales en donde se pueda desarrollar un individuo. Los bajos valores indican una alta redundancia de los vasos o, en otras palabras, una menor vulnerabilidad y los valores menores de uno representan maderas xerom&oacute;rficas y valores mayores a la unidad corresponden a maderas mesom&oacute;rficas.</font></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Los valores del &iacute;ndice de mesomorf&iacute;a tienen un rango de variaci&oacute;n mucho mayor que el &iacute;ndice de vulnerabilidad. Esto se debe a que en el c&aacute;lculo de los valores de mesomorf&iacute;a se incluye la longitud de los elementos vasculares, caracter&iacute;stica que est&aacute; relacionada directamente con el grado de especializaci&oacute;n, por lo que especies que crecen en una misma &aacute;rea tendr&aacute;n tendencias distintas en cuanto al &iacute;ndice de mesomorf&iacute;a de acuerdo a su grado evolutivo. Por esta raz&oacute;n se consideran m&aacute;s confiables los valores correspondientes al &iacute;ndice de vulnerabilidad, aunque es un hecho aceptado que la longitud de los elementos vasculares tiene una influencia notable sobre la eficiencia de la conducci&oacute;n; sin embargo, la longitud total del vaso es m&aacute;s importante que la de sus elementos individuales y el &iacute;ndice de mesomorf&iacute;a no toma en consideraci&oacute;n la longitud total de los vasos. Oever <I>et al. </I>(1981) indican que adem&aacute;s del di&aacute;metro y frecuencia de poros, par&aacute;metros como la longitud total de los vasos y la proporci&oacute;n de tejido con actividad fisiol&oacute;gica de conducci&oacute;n pueden ejercer una notable influencia sobre la eficiencia del movimiento de l&iacute;quidos en el xilema.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">BIBLIOGRAF&Iacute;A</font></P> </B>    <!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">1. Araque, O. &amp; L. G&aacute;mez. 2004. Anatom&iacute;a foliar y xilem&aacute;tica de <I>Ochoterenaea colombiana </I>Barkley. <I>Revista Forest. Venez</I>. 49 (En imprenta).</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014463&pid=S0084-5906200500020000600001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">2. Baas, P. 1973. The wood anatomical range in <I>Ilex </I>(Aquifoliaceae) and its ecological and phylogenetic significance. <I>Blumea </I>21: 193-258.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014464&pid=S0084-5906200500020000600002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">3. Baas, P. &amp; S. Carlquist. 1985. A comparison of ecological wood anatomy of the floras of southern California and Israel. <I>IAWA Bull. n.s. </I>8: 245-274.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014465&pid=S0084-5906200500020000600003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">4. Baas, P., E. Werker &amp; A. Fahn. 1983. Some ecological trends in vessel characters. <I>IAWA Bull. n.s. </I>4: 141-159.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014466&pid=S0084-5906200500020000600004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">5. Carlquist, S. 1977. Ecological factors in wood evolution: a floristic approach. <I>Amer. J. Bot. </I>64: 887-896.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014467&pid=S0084-5906200500020000600005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">6. Carlquist, S. &amp; D. Hoekman. 1985. Ecological wood anatomy of the woody southern flora. <I>IAWA Bull. n.s. </I>6: 319-347.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014468&pid=S0084-5906200500020000600006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">7. Corothie, H. 1967. <I>Estructura anat&oacute;mica de 47 maderas de la Guayana venezolana. </I>Laboratorio Nacional de Productos Forestales. Universidad de Los Andes-Ministerio de Agricultura y Cr&iacute;a. M&eacute;rida,Venezuela.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014469&pid=S0084-5906200500020000600007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">8. Dickinson,W., P. Rury &amp; G. Stebbins. 1978. Xylem anatomy of <I>Hibbertia </I>(Dilleniaceae) in relation to ecology and evolution. <I>J. Arnold Arbor. </I>59: 32-49.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014470&pid=S0084-5906200500020000600008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">9. Franklin, G. 1937. Permanent preparations of macerated wood fibres. <I>Trop. Woods </I>49: 21-22.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014471&pid=S0084-5906200500020000600009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">10. IAWA Committee. 1989. IAWA list of microscopic features for hardwood identification. <I>IAWA Bull. n.s. </I>10: 219-332.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014472&pid=S0084-5906200500020000600010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">11. Le&oacute;n H.,W. 2001. Anatom&iacute;a del le&ntilde;o, aspectos ecol&oacute;gicos y filogenia en mangles de Venezuela. <I>Revista Forest. Venez. </I>45: 191-203.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014473&pid=S0084-5906200500020000600011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">12. Lindorf, H. 1994. Eco-anatomical wood features of species from a very dry tropical forest. <I>IAWA J. </I>15: 361-376.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014474&pid=S0084-5906200500020000600012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">13. Lindorf, H. 1997. Wood and leaf anatomy in <I>Sessea corymbiflora </I>from an ecological perspective. <I>IAWA J. </I>18: 157-168.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014475&pid=S0084-5906200500020000600013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">14. Moglia, J. &amp; C. L&oacute;pez. 2001. Estrategia adaptativa del le&ntilde;o de <I>Aspidosperma quebracho-blanco. Madera y Bosques </I>7(2): 13-25.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014476&pid=S0084-5906200500020000600014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">15. Oever van den, L., P. Baas &amp; M. Zandee. 1981. Comparative wood anatomy of <I>Symplocos </I>and latitude and altitude of provenance. <I>IAWA Bull. n.s. </I>2: 3-24.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014477&pid=S0084-5906200500020000600015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">16. P&eacute;rez, A. 1989. Caracterizaci&oacute;n ecoanat&oacute;mica del le&ntilde;o de 40 especies del bosque La Mucuy, Estado M&eacute;rida,Venezuela. <I>Revista Forest. Venez. </I>33: 43-51.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014478&pid=S0084-5906200500020000600016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">17. Sidiyasa, K. &amp; P. Baas. 1998. Ecological and systematic wood anatomy of <I>Alstonia </I>(Apocynaceae). <I>IAWA J. </I>19: 207-229.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014479&pid=S0084-5906200500020000600017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">18. Silva, A. 1991. Anatom&iacute;a de la madera de ocho especies propias del bosque de galer&iacute;a (vertiente sur) del Parque Nacional El &Aacute;vila. <I>Bol. Soc. Venez. Ci. Nat. </I>147: 85-136.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014480&pid=S0084-5906200500020000600018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">19. Veillon, J. 1985. El crecimiento de algunos bosques naturales de Venezuela en relaci&oacute;n con los par&aacute;metros del medio ambiente. <I>Revista Forest. Venez. </I>29: 5-122.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014481&pid=S0084-5906200500020000600019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">20. Villagra, P. &amp; F. Roig. 1997. Wood structure of <I>Prosopis alpataco </I>y <I>P. argentina </I>growing under different edaphic conditions. <I>IAWA J. </I>18: 37-51.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014482&pid=S0084-5906200500020000600020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><font face="Verdana" size="2">21. Zhang, S., P. Baas &amp; M. Zandee. 1992. Wood structure of the Rosaceae in relation to ecology, habit and phenology. <I>IAWA Bull. n.s. </I>13: 307-349.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=014483&pid=S0084-5906200500020000600021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Araque]]></surname>
<given-names><![CDATA[O]]></given-names>
</name>
<name>
<surname><![CDATA[Gámez]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Anatomía foliar y xilemática de Ochoterenaea colombiana Barkley]]></article-title>
<source><![CDATA[Revista Forest. Venez]]></source>
<year>2004</year>
<volume>49</volume>
</nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Baas]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The wood anatomical range in Ilex (Aquifoliaceae) and its ecological and phylogenetic significance]]></article-title>
<source><![CDATA[Blumea]]></source>
<year>1973</year>
<volume>21</volume>
<page-range>193-258</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Baas]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Carlquist]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A comparison of ecological wood anatomy of the floras of southern California and Israel]]></article-title>
<source><![CDATA[IAWA Bull. n.s]]></source>
<year>1985</year>
<volume>8</volume>
<page-range>245-274</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Baas]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Werker]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Fahn]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Some ecological trends in vessel characters]]></article-title>
<source><![CDATA[IAWA Bull. n.s]]></source>
<year>1983</year>
<volume>4</volume>
<page-range>141-159</page-range></nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Carlquist]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ecological factors in wood evolution: a floristic approach]]></article-title>
<source><![CDATA[Amer. J. Bot]]></source>
<year>1977</year>
<volume>64</volume>
<page-range>887-896</page-range></nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Carlquist]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Hoekman]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ecological wood anatomy of the woody southern flora]]></article-title>
<source><![CDATA[IAWA Bull. n.s]]></source>
<year>1985</year>
<volume>6</volume>
<page-range>319-347</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Corothie]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<source><![CDATA[Estructura anatómica de 47 maderas de la Guayana venezolana]]></source>
<year>1967</year>
<publisher-loc><![CDATA[^eMérida Mérida]]></publisher-loc>
<publisher-name><![CDATA[Laboratorio Nacional de Productos Forestales. Universidad de Los Andes-Ministerio de Agricultura y Cría]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Dickinson]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
<name>
<surname><![CDATA[Rury]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Stebbins]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Xylem anatomy of Hibbertia (Dilleniaceae) in relation to ecology and evolution]]></article-title>
<source><![CDATA[J. Arnold Arbor]]></source>
<year>1978</year>
<volume>59</volume>
<page-range>32-49</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Franklin]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Permanent preparations of macerated wood fibres]]></article-title>
<source><![CDATA[Trop. Woods]]></source>
<year>1937</year>
<volume>49</volume>
<page-range>21-22</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<collab>IAWA Committee</collab>
<article-title xml:lang="en"><![CDATA[IAWA list of microscopic features for hardwood identification]]></article-title>
<source><![CDATA[IAWA Bull. n.s]]></source>
<year>1989</year>
<volume>10</volume>
<page-range>219-332</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[León H]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Anatomía del leño, aspectos ecológicos y filogenia en mangles de Venezuela]]></article-title>
<source><![CDATA[Revista Forest. Venez]]></source>
<year>2001</year>
<volume>45</volume>
<page-range>191-203</page-range></nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lindorf]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Eco-anatomical wood features of species from a very dry tropical forest]]></article-title>
<source><![CDATA[IAWA J]]></source>
<year>1994</year>
<volume>15</volume>
<page-range>361-376</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lindorf]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Wood and leaf anatomy in Sessea corymbiflora from an ecological perspective]]></article-title>
<source><![CDATA[IAWA J]]></source>
<year>1997</year>
<volume>18</volume>
<page-range>157-168</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Moglia]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[López]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Estrategia adaptativa del leño de Aspidosperma quebracho-blanco]]></article-title>
<source><![CDATA[Madera y Bosques]]></source>
<year>2001</year>
<volume>7</volume>
<numero>2</numero>
<issue>2</issue>
<page-range>13-25</page-range></nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Oever van den]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Baas]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Zandee]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Comparative wood anatomy of Symplocos and latitude and altitude of provenance]]></article-title>
<source><![CDATA[IAWA Bull. n.s]]></source>
<year>1981</year>
<volume>2</volume>
<page-range>3-24</page-range></nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Pérez]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Caracterización ecoanatómica del leño de 40 especies del bosque La Mucuy, Estado Mérida,Venezuela]]></article-title>
<source><![CDATA[Revista Forest. Venez]]></source>
<year>1989</year>
<volume>33</volume>
<page-range>43-51</page-range></nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sidiyasa]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[Baas]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ecological and systematic wood anatomy of Alstonia (Apocynaceae)]]></article-title>
<source><![CDATA[IAWA J]]></source>
<year>1998</year>
<volume>19</volume>
<page-range>207-229</page-range></nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Silva]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Anatomía de la madera de ocho especies propias del bosque de galería (vertiente sur) del Parque Nacional El Ávila]]></article-title>
<source><![CDATA[Bol. Soc. Venez. Ci. Nat]]></source>
<year>1991</year>
<volume>147</volume>
<page-range>85-136</page-range></nlm-citation>
</ref>
<ref id="B19">
<label>19</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Veillon]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[El crecimiento de algunos bosques naturales de Venezuela en relación con los parámetros del medio ambiente]]></article-title>
<source><![CDATA[Revista Forest. Venez]]></source>
<year>1985</year>
<volume>29</volume>
<page-range>5-122</page-range></nlm-citation>
</ref>
<ref id="B20">
<label>20</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Villagra]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Roig]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
</person-group>
<source><![CDATA[IAWA J]]></source>
<year>1997</year>
<volume>18</volume>
<page-range>37-51</page-range></nlm-citation>
</ref>
<ref id="B21">
<label>21</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Zhang]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Baas]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Zandee]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Wood structure of the Rosaceae in relation to ecology, habit and phenology]]></article-title>
<source><![CDATA[IAWA Bull. n.s]]></source>
<year>1992</year>
<volume>13</volume>
<page-range>307-349</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>