<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0378-1844</journal-id>
<journal-title><![CDATA[Interciencia]]></journal-title>
<abbrev-journal-title><![CDATA[INCI]]></abbrev-journal-title>
<issn>0378-1844</issn>
<publisher>
<publisher-name><![CDATA[ASOCIACIÓN INTERCIENCIA]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0378-18442006000100004</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Sistemas neurales de retroalimentación durante el ciclo reproductivo anual de la oveja: Una revisión]]></article-title>
<article-title xml:lang="en"><![CDATA[FEEDBACK NEURAL SYSTEMS OPERATING DURING THE CIRCANNUAL REPRODUCTIVE CYCLE OF THE EWE]]></article-title>
<article-title xml:lang="pt"><![CDATA[SISTEMAS NEURAIS DE RETROALIMENTAÇÃO DURANTE O CICLO REPRODUTIVO ANUAL DA OVELHA: UMA REVISÃO]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Arroyo Ledezma]]></surname>
<given-names><![CDATA[Jaime]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Gallegos-Sánchez]]></surname>
<given-names><![CDATA[Jaime]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Villa Godoy]]></surname>
<given-names><![CDATA[Alejandro]]></given-names>
</name>
<xref ref-type="aff" rid="A03"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Valencia Méndez]]></surname>
<given-names><![CDATA[Javier]]></given-names>
</name>
<xref ref-type="aff" rid="A04"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad Autónoma Metropolitana Departamento de Producción Agrícola y Animal ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>México</country>
</aff>
<aff id="A02">
<institution><![CDATA[,UNAM Colegio de Postgraduados ]]></institution>
<addr-line><![CDATA[Montecillo ]]></addr-line>
<country>México</country>
</aff>
<aff id="A03">
<institution><![CDATA[,UNAM Facultad de Medicina Veterinaria y Zootecnia ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>México</country>
</aff>
<aff id="A04">
<institution><![CDATA[,UNAM Facultad de Medicina Veterinaria y Zootecnia ]]></institution>
<addr-line><![CDATA[México D.F ]]></addr-line>
<country>México</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>01</month>
<year>2006</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>01</month>
<year>2006</year>
</pub-date>
<volume>31</volume>
<numero>1</numero>
<fpage>8</fpage>
<lpage>15</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0378-18442006000100004&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0378-18442006000100004&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0378-18442006000100004&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[El ciclo reproductivo anual de la oveja es regulado por la amplitud del fotoperiodo. La señal luminosa se traduce en una señal hormonal a través de la síntesis de melatonina. La disminución en la duración del fotoperiodo induce la actividad reproductiva y el aumento en las horas luz, inhibe la actividad ovulatoria estral, la conducta de estro y la ovulación (anestro estacional). Durante la época reproductiva, la progesterona (P4) regula los ciclos estrales de la oveja inhibiendo la secreción pulsátil de la hormona liberadora de gonadotropinas (GnRH) a nivel del área preóptica (POA) del hipotálamo, donde ejerce su acción de manera indirecta, posiblemente a través del ácido gama amino butírico (GABA) y los péptidos opioides endógenos (POEs). En la fase folicular del ciclo estral, el estradiol (E2) ejerce un efecto de retroalimentación positiva a nivel del hipotálamo mediobasal (HMB), incrementa la secreción pulsátil de GnRH y de la hormona luteinizante (LH), e induce el pico preovulatorio de ambas hormonas, provocando la conducta de estro y la ovulación. Durante la época de anestro estacional, el patrón de secreción de melatonina favorece el aumento en la sensibilidad del hipotálamo a la concentración basal de E2; este esteroide inhibe la secreción pulsátil de GnRH, actuando específicamente en el núcleo A15 dopaminérgico del área retroquiasmática lateral (Arch) hipotalámica. En este mecanismo, el sistema dopaminérgico participa como intermediario entre el E2 y las neuronas GnRH.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[The annual reproductive cycle in the ewe is controlled by the changes in the amplitud of photoperiod. The light stimulus is converted into a hormonal signal: the circadian rhytm of melatonin secretion. Short days are inductive whereas long days inhibits the ovulatory activity. During the reproductive season, progesterone regulates the estrous cycle of the ewe inhibiting the GnRH pulsatil secretion. Progesterone exerts its action on the preoptic area of the hypothalamus indirectly, possibly via the gamma aminobutiric acid and the endogeneous opiod peptides. Estradiol (E2) increases the GnRH pulsatile secretion by a positive feedback effect. Increments in GnRH pulses induce the preovulatory peak of LH evoking estrous behaviour and ovulation. During the seasonal anestrus, the secretion pattern of melatonin increases the sensivity of the hypothalamus to the negative effect of E2, then estradiol inhibits the pulsatil secretion of GnRH, acting in the A-15 dopaminergic nucleous of the retrochiasmatic lateral area of the hypothalamus; in this mechanism the dopaminergic system mediates the effect of estradiol on the GnRHergic neurons.]]></p></abstract>
<abstract abstract-type="short" xml:lang="pt"><p><![CDATA[O ciclo reprodutivo anual da ovelha é regulado pela amplitude do foto período. O sinal luminoso se traduz em um sinal hormonal a través da síntese de melatonina. A diminuição na duração do foto período induz a atividade reprodutiva e o aumento nas horas luz, inibe a atividade ou ciclo estral, a conduta de estro e a ovulação (anestro estacional). Durante a época reprodutiva, a progesterona (P4) regula os ciclos estrais da ovelha inibindo a secreção pulsátil do hormônio liberador de gonadotropinas (GnRH) a nível da área preóptica (POA) do hipotálamo, onde exerce sua ação de maneira indireta, possivelmente a través do ácido gama amino butírico (GABA) e os peptídeos opioides endógenos (POEs). Na fase folicular do ciclo estral, o estradiol (E2) exerce um efeito de retro alimentação positiva a nível do hipotálamo mediobasal (HMB), incrementa a secreção pulsátil de GnRH e do hormônio luteinizante (LH), e induz o pico pré ovulatório de ambos hormônios, provocando a conduta de estro e a ovulação. Durante a época de anestro estacional, o padrão se secreção de melatonina favorece o aumento na sensibilidade do hipotálamo à concentração basal de E2; este esteróide inibe a secreção pulsátil de GnRH, atuando especificamente no núcleo A15 dopaminérgico da área retroquiasmática lateral (Arch) hipotalâmica. Neste mecanismo, o sistema dopaminérgico participa como intermediário entre o E2 e os neurônios GnRH.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Actividad Reproductiva]]></kwd>
<kwd lng="es"><![CDATA[Anestro Estacional]]></kwd>
<kwd lng="es"><![CDATA[Estro]]></kwd>
<kwd lng="es"><![CDATA[Neuroendocrinología]]></kwd>
<kwd lng="es"><![CDATA[Oveja]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[   <B>    <P align="center"><font face="Verdana" size="3">SISTEMAS NEURALES DE RETROALIMENTACI&Oacute;N DURANTE EL CICLO REPRODUCTIVO ANUAL DE LA OVEJA: UNA REVISI&Oacute;N</font></P>     <P align="center"><font face="Verdana" size="2">Jaime Arroyo Ledezma, Jaime Gallegos-S&aacute;nchez, Alejandro Villa Godoy y Javier Valencia M&eacute;ndez</font></P> </B>    <P align="justify"><font face="Verdana" size="2">Jaime Arroyo Ledezma. </font> <B><font face="Verdana" size="2">M. en C., Programa de Ganader&iacute;a, Colegio de Postgraduados, M&eacute;xico. Candidato a Doctor, Programa de Doctorado en Ciencias de la Producci&oacute;n y de la Salud Animal, Facultad de Medicina Veterinaria y Zootecnia, Universidad Nacional Aut&oacute;noma de M&eacute;xico (UNAM). Profesor, Departamento de Producci&oacute;n Agr&iacute;cola y Animal, Universidad Aut&oacute;noma Metropolitana (UAM), Unidad Xochimilco, M&eacute;xico.</font></P> </B>    <P align="justify"><font face="Verdana" size="2">Jaime Gallegos-S&aacute;nchez.</font><B> <font face="Verdana" size="2"> Doctor en Ciencias, Universidad de Par&iacute;s VI, Francia. Profesor Investigador, Colegio de Postgraduados, Campus Montecillo, M&eacute;xico.</font></P> </B>    <P align="justify"><font face="Verdana" size="2">Alejandro Villa Godoy. </font> <B><font face="Verdana" size="2">Doctor en Filosof&iacute;a, Michigan State University, EEUU. Profesor, Facultad de Medicina Veterinaria y Zootecnia, UNAM, M&eacute;xico.</font></P> </B>    <P align="justify"><font face="Verdana" size="2">Javier Valencia M&eacute;ndez. </font> <B><font face="Verdana" size="2">Doctor en Medicina Veterinaria, Tieraerztliche, Hochschule, Hanover, Alemania. Investigador, UNAM, M&eacute;xico. Direcci&oacute;n: Facultad de Medicina Veterinaria y Zootecnia, UNAM. Ciudad Universitaria, M&eacute;xico D.F., C.P. 04510, M&eacute;xico. e-mail: jjvm@servidor.unam.mx</font></P> </B>    <P align="justify"><font face="Verdana" size="2"><b>Resumen</b></font></P>     <P align="justify"><font face="Verdana" size="2">El ciclo reproductivo anual de la oveja es regulado por la amplitud del fotoperiodo. La se&ntilde;al luminosa se traduce en una se&ntilde;al hormonal a trav&eacute;s de la s&iacute;ntesis de melatonina. La disminuci&oacute;n en la duraci&oacute;n del fotoperiodo induce la actividad reproductiva y el aumento en las horas luz, inhibe la actividad ovulatoria estral, la conducta de estro y la ovulaci&oacute;n (anestro estacional). Durante la &eacute;poca reproductiva, la progesterona (P<sub>4</sub>) regula los ciclos estrales de la oveja inhibiendo la secreci&oacute;n puls&aacute;til de la hormona liberadora de gonadotropinas (GnRH) a nivel del &aacute;rea pre&oacute;ptica (POA) del hipot&aacute;lamo, donde ejerce su acci&oacute;n de manera indirecta, posiblemente a trav&eacute;s del &aacute;cido gama amino but&iacute;rico (GABA) y los p&eacute;ptidos opioides end&oacute;genos (POEs). En la fase folicular del ciclo estral, el estradiol (E<sub>2</sub>) ejerce un efecto de retroalimentaci&oacute;n positiva a nivel del hipot&aacute;lamo mediobasal (HMB), incrementa la secreci&oacute;n puls&aacute;til de GnRH y de la hormona luteinizante (LH), e induce el pico preovulatorio de ambas hormonas, provocando la conducta de estro y la ovulaci&oacute;n. Durante la &eacute;poca de anestro estacional, el patr&oacute;n de secreci&oacute;n de melatonina favorece el aumento en la sensibilidad del hipot&aacute;lamo a la concentraci&oacute;n basal de E<sub>2</sub>; este esteroide inhibe la secreci&oacute;n puls&aacute;til de GnRH, actuando espec&iacute;ficamente en el n&uacute;cleo A15 dopamin&eacute;rgico del &aacute;rea retroquiasm&aacute;tica lateral (Arch) hipotal&aacute;mica. En este mecanismo, el sistema dopamin&eacute;rgico participa como intermediario entre el E<sub>2</sub> y las neuronas GnRH.</font> </P> <B>    <P align="center"><font face="Verdana" size="2">FEEDBACK NEURAL SYSTEMS OPERATING DURING THE CIRCANNUAL REPRODUCTIVE CYCLE OF THE EWE</font></P> </B>    ]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2"><b>Summary</b></font></P>     <P align="justify"><font face="Verdana" size="2">The annual reproductive cycle in the ewe is controlled by the changes in the amplitud of photoperiod. The light stimulus is converted into a hormonal signal: the circadian rhytm of melatonin secretion. Short days are inductive whereas long days inhibits the ovulatory activity. During the reproductive season, progesterone regulates the estrous cycle of the ewe inhibiting the GnRH pulsatil secretion. Progesterone exerts its action on the preoptic area of the hypothalamus indirectly, possibly via the gamma aminobutiric acid and the endogeneous opiod peptides. Estradiol (E<sub>2</sub>) increases the GnRH pulsatile secretion by a positive feedback effect. Increments in GnRH pulses induce the preovulatory peak of LH evoking estrous behaviour and ovulation. During the seasonal anestrus, the secretion pattern of melatonin increases the sensivity of the hypothalamus to the negative effect of E<sub>2</sub>, then estradiol inhibits the pulsatil secretion of GnRH, acting in the A-15 dopaminergic nucleous of the retrochiasmatic lateral area of the hypothalamus; in this mechanism the dopaminergic system mediates the effect of estradiol on the GnRHergic neurons.</font></P> <B>    <P align="center"><font face="Verdana" size="2">SISTEMAS NEURAIS DE RETROALIMENTA&Ccedil;&Atilde;O DURANTE O CICLO REPRODUTIVO ANUAL DA OVELHA: UMA REVIS&Atilde;O</font></P> </B>    <P align="justify"><font face="Verdana" size="2"><b>Resumo</b></font></P>     <P align="justify"><font face="Verdana" size="2">O ciclo reprodutivo anual da ovelha &eacute; regulado pela amplitude do foto per&iacute;odo. O sinal luminoso se traduz em um sinal hormonal a trav&eacute;s da s&iacute;ntese de melatonina. A diminui&ccedil;&atilde;o na dura&ccedil;&atilde;o do foto per&iacute;odo induz a atividade reprodutiva e o aumento nas horas luz, inibe a atividade ou ciclo estral, a conduta de estro e a ovula&ccedil;&atilde;o (anestro estacional). Durante a &eacute;poca reprodutiva, a progesterona (P<sub>4</sub>) regula os ciclos estrais da ovelha inibindo a secre&ccedil;&atilde;o puls&aacute;til do horm&ocirc;nio liberador de gonadotropinas (GnRH) a n&iacute;vel da &aacute;rea pre&oacute;ptica (POA) do hipot&aacute;lamo, onde exerce sua a&ccedil;&atilde;o de maneira indireta, possivelmente a trav&eacute;s do &aacute;cido gama amino but&iacute;rico (GABA) e os pept&iacute;deos opioides end&oacute;genos (POEs). Na fase folicular do ciclo estral, o estradiol (E<sub>2</sub>) exerce um efeito de retro alimenta&ccedil;&atilde;o positiva a n&iacute;vel do hipot&aacute;lamo mediobasal (HMB), incrementa a secre&ccedil;&atilde;o puls&aacute;til de GnRH e do horm&ocirc;nio luteinizante (LH), e induz o pico pr&eacute; ovulat&oacute;rio de ambos horm&ocirc;nios, provocando a conduta de estro e a ovula&ccedil;&atilde;o. Durante a &eacute;poca de anestro estacional, o padr&atilde;o se secre&ccedil;&atilde;o de melatonina favorece o aumento na sensibilidade do hipot&aacute;lamo &agrave; concentra&ccedil;&atilde;o basal de E<sub>2</sub>; este ester&oacute;ide inibe a secre&ccedil;&atilde;o puls&aacute;til de GnRH, atuando especificamente no n&uacute;cleo A15 dopamin&eacute;rgico da &aacute;rea retroquiasm&aacute;tica lateral (Arch) hipotal&acirc;mica. Neste mecanismo, o sistema dopamin&eacute;rgico participa como intermedi&aacute;rio entre o E<sub>2</sub> e os neur&ocirc;nios GnRH.</font> </P> <B>    <P align="justify"><font face="Verdana" size="2">Palabras clave / Actividad Reproductiva / Anestro Estacional / Estro / Neuroendocrinolog&iacute;a / Oveja /</font></P> </B><FONT SIZE=2>    <P align="justify"><font face="Verdana" size="2">Recibido: 19/08/2005. Aceptado: 08/11/2005.</font></P> </FONT>     <P align="justify"><font face="Verdana" size="2">La estacionalidad reproductiva es un proceso de adaptaci&oacute;n mediante el cual los animales silvestres y algunos dom&eacute;sticos reducen los efectos de los cambios anuales de temperatura y disponibilidad de alimento (Karsch <I>et al</I>., 1984). El patr&oacute;n reproductivo estacional en muchas especies se regula por el fotoperiodo (Yeates, 1949; Hafez, 1952; Karsch <I>et al</I>., 1984, Malpaux <I>et al</I>., 1999). En bovinos y porcinos, el proceso de domesticaci&oacute;n condujo a la p&eacute;rdida casi total de esta forma de reproducci&oacute;n; sin embargo, se mantiene en la mayor&iacute;a de las razas ovinas, caprinas y equinas originarias de latitudes &gt;35º (Malpaux <I>et al</I>., 1996).</font></P>     <P align="justify"><font face="Verdana" size="2">Los ovinos traducen la se&ntilde;al luminosa a una se&ntilde;al hormonal a trav&eacute;s de la melatonina, que se sintetiza durante la noche en la gl&aacute;ndula pineal e indica al animal los cambios en el ciclo luz-oscuridad (Williams y Helliwell, 1993; McMillen <I>et al</I>., 1995; Arendt, 1998; Malpaux <I>et al</I>., 2002). En latitudes &gt;35º, la funci&oacute;n reproductiva de la oveja involucra una serie de eventos fisiol&oacute;gicos que difieren a trav&eacute;s del a&ntilde;o (Gallegos-S&aacute;nchez <I>et al</I>., 1998). El ciclo reproductivo anual de la oveja se clasifica en una etapa de actividad reproductiva y una de ausencia de reproducci&oacute;n (anestro). En la mayor&iacute;a de las razas ovinas, la &eacute;poca reproductiva se inicia a finales del verano y se caracteriza por ciclos estrales sucesivos de 17 d&iacute;as. La &eacute;poca de anestro inicia a finales del invierno y se caracteriza por la ausencia de ciclos ov&aacute;ricos regulares y ovulaci&oacute;n. Estos cambios fisiol&oacute;gicos se asocian con las variaciones anuales de las horas de luz (Yeates, 1949; Legan y Karsch, 1979; Lincoln and Short, 1980; Karsch <I>et al</I>., 1984; Lehman <I>et al</I>., 2002; Thi&eacute;ry <I>et al</I>., 2002).</font></P>     <P align="justify"><font face="Verdana" size="2">La secreci&oacute;n puls&aacute;til de hormona liberadora de gonadotropinas (GnRH) se correlaciona con la secreci&oacute;n de hormona luteinizante (LH) hipofisiaria; un pulso de GnRH antecede a un pulso de LH (Clarke y Cummins, 1982; Karsch <I>et al</I>., 1993). Estudios posteriores realizados en ovejas mostraron que la GnRH se libera de manera puls&aacute;til al l&iacute;quido cerebroespinal (CSF) del tercer ventr&iacute;culo. Este modo de secreci&oacute;n se correlaciona con las concentraciones perif&eacute;ricas de LH (Skinner <I>et al</I>., 1995).</font></P>     ]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">La &eacute;poca de anestro se caracteriza por la disminuci&oacute;n en la frecuencia de secreci&oacute;n puls&aacute;til de GnRH y LH, con 1 a 2 pulsos de ambas hormonas en un periodo de 12h (Legan y Karsch, 1979; Barrell <I>et al</I>., 1992). En el anestro estacional, la menor duraci&oacute;n de la secreci&oacute;n de melatonina provoca un aumento en la sensibilidad hipotal&aacute;mica al efecto de retroalimentaci&oacute;n negativa del estradiol (E<sub>2</sub>), inhibiendo la secreci&oacute;n puls&aacute;til de GnRH/LH (Karsch <I>et al</I>., 1984; Vigui&eacute; <I>et al</I>., 1997; Gallegos-S&aacute;nchez <I>et al</I>., 1998; Malpaux <I>et al</I>., 1999). En este proceso se ha demostrado la participaci&oacute;n de monoaminas, de las cuales se han descrito con &eacute;nfasis particular las catecolaminas. Entre &eacute;stas, el papel de la dopamina en la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de GnRH durante el anestro es importante, as&iacute; como el n&uacute;cleo hipotal&aacute;mico A15, donde se lleva a cabo su s&iacute;ntesis (Thi&eacute;ry <I>et al</I>., 1995). De manera contraria, durante la &eacute;poca reproductiva, el aumento en la duraci&oacute;n de secreci&oacute;n de melatonina induce el incremento en la secreci&oacute;n puls&aacute;til de GnRH/LH y restablece los ciclos estrales y la ovulaci&oacute;n (Williams y Helliwell, 1993; Vigui&eacute; <I>et al.</I>, 1997; Malpaux <I>et al</I>., 2002). Durante la fase folicular del ciclo estral, el E2 ejerce un efecto de retroalimentaci&oacute;n positiva a nivel hipotal&aacute;mico, aumenta la frecuencia de secreci&oacute;n de pulsos de GnRH/LH y genera el "pico" preovulatorio de ambas hormonas. Durante la fase l&uacute;tea, la progesterona (P<sub>4</sub>) ejerce un potente efecto inhibidor de la secreci&oacute;n puls&aacute;til de GnRH/LH y act&uacute;a en el &aacute;rea pre&oacute;ptica (POA) del hipot&aacute;lamo (Robinson y Kendrick, 1992; Evans <I>et al</I>., 2002; Jackson y Kuehl, 2002). Se ha sugerido la participaci&oacute;n del &aacute;cido gama amino but&iacute;rico (GABA) como mediador en este proceso inhibitorio (Robinson, 1995).</font></P>     <P align="justify"><font face="Verdana" size="2">Aunque la melatonina regula el ciclo reproductivo anual de la oveja y su patr&oacute;n de secreci&oacute;n determina los eventos neuroendocrinos en la especie, el prop&oacute;sito de esta revisi&oacute;n no es describir de manera detallada y exhaustiva los mecanismos implicados en dichos eventos, pues existen revisiones que describen la participaci&oacute;n de esta hormona en la estacionalidad reproductiva de los mam&iacute;feros, con enfoque especial en los ovinos (Williams y Helliwell, 1993; McMillen <I>et al</I>., 1995; Malpaux<I> et al.</I>, 1996; Arendt, 1998; Malpaux <I>et al</I>., 1999; Chemineau <I>et al.</I>, 2002; Malpaux <I>et al.</I>, 2002).</font></P>     <P align="justify"><font face="Verdana" size="2">Se han realizado numerosos estudios con el prop&oacute;sito de explicar los mecanismos neuroendocrinos que regulan el ciclo reproductivo anual de la oveja y su relaci&oacute;n con los cambios en el fotoperiodo, particularmente, los neurotransmisores que regulan la secreci&oacute;n de hormonas reproductivas espec&iacute;ficas, tales como la GnRH y LH (Deaver y Dailey, 1982; Thi&eacute;ry <I>et al</I>., 1989, 1995, 2002; Le Corre y Chemineau, 1993a, b; Tillet, 1995; Lehman <I>et al</I>., 1996; Vigui&eacute; <I>et al</I>., 1996; Gallegos-S&aacute;nchez <I>et al</I>., 1997). Por ello, el prop&oacute;sito de la presente revisi&oacute;n fue analizar y discutir la informaci&oacute;n disponible referente a los sistemas neurales de retroalimentaci&oacute;n y los neurotransmisores que intervienen en el ciclo reproductivo anual de la oveja.</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Retroalimentaci&oacute;n Positiva del Estradiol durante el Ciclo Estral</font></P> </B>    <P align="justify"><font face="Verdana" size="2">El ciclo reproductivo anual de la oveja incluye un periodo en el cual una secuencia de eventos neuroendocrinos culminan en la ovulaci&oacute;n (&eacute;poca reproductiva; <a href="#f1"> Figura 1</a>) y un periodo en el que esto no ocurre (&eacute;poca de anestro o inactividad reproductiva; Barrell <I>et al</I>., 1992). En la &eacute;poca reproductiva, un aumento en la frecuencia de pulsos de GnRH/LH provoca la ovulaci&oacute;n, lo cual se conoce como "pico" preovulatorio. Al final de la fase l&uacute;tea, al iniciarse la lute&oacute;lisis por efecto de la acci&oacute;n de la prostaglandina F2</font><font size="2" face="Symbol">D</font><font face="Verdana" size="2"> (PGF2</font><font size="2" face="Symbol">D</font><font face="Verdana" size="2">) liberada por el endometrio uterino, la concentraci&oacute;n plasm&aacute;tica de progesterona desciende. La disminuci&oacute;n de la progesterona circulante favorece la secreci&oacute;n t&oacute;nica de LH, de tal forma que la frecuencia de sus pulsos se incrementa progresivamente, hasta alcanzar un pulso cada hora. El aumento en la frecuencia de secreci&oacute;n de LH estimula la s&iacute;ntesis de E<sub>2</sub> en los fol&iacute;culos en proceso de maduraci&oacute;n y se incrementa su concentraci&oacute;n en la circulaci&oacute;n general. El incremento progresivo en los niveles de E<sub>2</sub>, ejercido por un mecanismo de retroalimentaci&oacute;n positiva a nivel hipotal&aacute;mico, estimula la secreci&oacute;n hormonal y esto origina las descargas preovulatorias de la dupla GnRH/LH (Padilla <I>et al</I>., 1988; Barrell <I>et al</I>., 1992; Gallegos-S&aacute;nchez <I>et al</I>., 1999).</font></P>     <P align="center"><a name="f1"><img border="0" src="/img/fbpe/inci/v31n1/art04img01.gif" width="579" height="477"></a></P>     
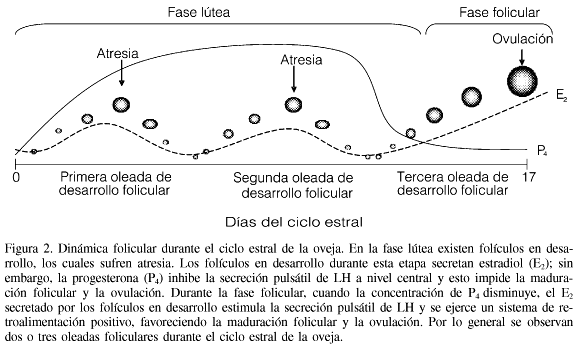
<P align="justify"><font face="Verdana" size="2">Las fluctuaciones en las concentraciones circulantes de E<sub>2</sub> tienen su origen en los fol&iacute;culos ov&aacute;ricos, los cuales pueden desarrollarse o sufrir atresia durante el curso de cada ciclo (<a href="#f2">Figura 2</a>; Legan y Karsch, 1979; McNatty <I>et al</I>., 1984; Noel <I>et al</I>., 1993; Ravindra y Rawlings, 1997; Souza <I>et al</I>., 1997; Bartlewski <I>et al</I>., 2000; Evans <I>et al</I>., 2000).</font></P>     <P align="center"><a name="f2"><img border="0" src="/img/fbpe/inci/v31n1/art04img02.gif" width="577" height="348"></a></P>     
<P align="justify"><font face="Verdana" size="2">El pico preovulatorio de LH precede a la ovulaci&oacute;n en aproximadamente 24h y se asocia con la conducta de estro (<a href="#f3">Figura 3</a>; Legan y Karsch, 1979). Este evento requiere un incremento en la secreci&oacute;n de GnRH hipotal&aacute;mica y el aumento de la sensibilidad hipofisiaria. Ambos eventos son dependientes de E<sub>2</sub> (Karsch <I>et al</I>., 1997). Se requiere el est&iacute;mulo generado por la GnRH para que ocurra el pico preovulatorio de LH. La determinaci&oacute;n directa de la concentraci&oacute;n y perfil de secreci&oacute;n de GnRH en el sistema porta hipofisiario de ovejas mostraron que los picos preovulatorios de GnRH y LH ocurren paralelamente; sin embargo, el pico de GnRH se extiende por 36 a 48h (tiempo aproximado de la duraci&oacute;n del estro; Caraty <I>et al</I>., 2002). La secreci&oacute;n prolongada puede representar un exceso fisiol&oacute;gico que induce cambios en el est&iacute;mulo hipofisiario; sin embargo, es posible que la GnRH controle la conducta sexual y la ovulaci&oacute;n, de manera similar a lo observado en otros mam&iacute;feros (Pfaff <I>et al</I>., 1994).</font></P>     <P align="center"><a name="f3"><img border="0" src="/img/fbpe/inci/v31n1/art04img03.gif" width="287" height="426"></a></P>     
]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">En la oveja, como en otras especies, los cambios conductuales y la secreci&oacute;n preovulatoria de LH se inducen por el incremento en la concentraci&oacute;n de E<sub>2</sub> secretado por los fol&iacute;culos en desarrollo durante la fase folicular. Otro factor implicado en el control de la conducta de estro es la progesterona presente en la fase l&uacute;tea, la cual incrementa el n&uacute;mero de receptores para E<sub>2</sub> en el hipot&aacute;lamo mediobasal (MBH) y por lo tanto aumenta la sensibilidad a E<sub>2</sub> (Blache <I>et al</I>., 1994).</font></P>     <P align="justify"><font face="Verdana" size="2">En un estudio realizado durante la &eacute;poca reproductiva con ovejas <I>Ile de France</I>, Caraty <I>et al</I>. (2002) observaron que la GnRH est&aacute; involucrada en el control de la receptividad sexual en rumiantes y que esta hormona y el E<sub>2</sub> act&uacute;an de manera secuencial para permitir la expresi&oacute;n del estro. La actividad de las neuronas GnRH se prolonga durante la fase folicular del ciclo estral; el prop&oacute;sito de esta funci&oacute;n fisiol&oacute;gica es mantener la receptividad sexual hasta la ovulaci&oacute;n, despu&eacute;s del efecto inicial de E<sub>2</sub>. Es posible diferenciar el efecto directo del E<sub>2</sub> en la conducta de estro del mecanismo que estimula la secreci&oacute;n de GnRH (Caraty <I>et al</I>., 2002).</font></P>     <P align="justify"><font face="Verdana" size="2">A nivel hipotal&aacute;mico, el E<sub>2</sub> estimula la secreci&oacute;n puls&aacute;til de GnRH/LH durante la fase folicular del ciclo estral. Caraty <I>et al</I>. (1998) colocaron implantes de estradiol intracraneales en el POA y en el hipot&aacute;lamo mediobasal (MBH) de ovejas <I>Ile de France</I> ovariectomizadas, despu&eacute;s de simular una fase l&uacute;tea por administraci&oacute;n ex&oacute;gena de progesterona. Los resultados mostraron que el E<sub>2</sub> aplicado en el n&uacute;cleo ventromedial (NVM) del MBH provoc&oacute; un pico de GnRH/LH, semejante al observado antes de la ovulaci&oacute;n. Se concluy&oacute; que el E<sub>2</sub> act&uacute;a en el MBH induciendo el pulso preovulatorio de LH en la oveja. Adicionalmente se observ&oacute; que el E<sub>2</sub> en el POA inhibe la secreci&oacute;n puls&aacute;til de LH (Caraty <I>et al</I>., 1998). La existencia de poblaciones espec&iacute;ficas de neuronas que sintetizan receptores a de estradiol (RE<sub>2</sub>) con proyecciones al &aacute;rea pre&oacute;ptica rostral (rPOA) y a la banda diagonal de Broca (DBB) de la oveja, donde se concentran los cuerpos de las neuronas GnRH (Caldani <I>et al.,</I> 1988; Herbison, 1995), explica el efecto inhibitorio del E<sub>2</sub> a ese nivel. Estas observaciones proporcionaron las bases del conocimiento de la estructura neuroanat&oacute;mica a trav&eacute;s de la cual se llevan a cabo las acciones de est&iacute;mulo e inhibici&oacute;n del E<sub>2</sub> en la secreci&oacute;n de GnRH en ovinos. Sin embargo, a&uacute;n no se conoce si estas poblaciones neuronales hacen sinapsis directa con los cuerpos neuronales de GnRH. Existe la posibilidad de que m&uacute;ltiples neuronas con RE<sub>2</sub> puedan intervenir en la bios&iacute;ntesis y secreci&oacute;n de GnRH a nivel de los cuerpos celulares. Se sugiere que en la hembra ovina, grupos neuronales espec&iacute;ficos con receptores para estr&oacute;geno pueden intervenir a nivel pre y postsin&aacute;ptico en las neuronas productoras de GnRH y, con ello, inhibir la bios&iacute;ntesis de la hormona (Goubillon <I>et al</I>., 1999).</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Sistema de Retroalimentaci&oacute;n Negativo de la Progesterona</font></P> </B>    <P align="justify"><font face="Verdana" size="2">La progesterona es una hormona esteroide que secreta el cuerpo l&uacute;teo del ovario y es fundamental en la regulaci&oacute;n de la funci&oacute;n reproductiva c&iacute;clica (<a href="#f4">Figura 4</a>). La progesterona inhibe la secreci&oacute;n puls&aacute;til de GnRH, y por lo tanto, de LH. Este esteroide presenta un efecto contrario al de retroalimentaci&oacute;n positiva del E<sub>2</sub> en la secreci&oacute;n de GnRH y LH (Skinner <I>et al</I>., 2001) y puede considerarse como el regulador del ciclo estral; su acci&oacute;n es a nivel central (Robinson, 1995). Cuando las concentraciones de progesterona son altas, durante la fase l&uacute;tea del ciclo, la frecuencia de los pulsos de GnRH/LH es baja. La disminuci&oacute;n en la concentraci&oacute;n de progesterona despu&eacute;s de la lute&oacute;lisis permite que la frecuencia de pulsos de GnRH/LH se incremente y se estimule por el aumento en la concentraci&oacute;n de estr&oacute;genos (Robinson, 1995).</font></P>     <P align="center"><a name="f4"><img border="0" src="/img/fbpe/inci/v31n1/art04img04.gif" width="385" height="631"></a></P>     
<P align="justify"><font face="Verdana" size="2">El mecanismo exacto por medio del cual la progesterona inhibe la secreci&oacute;n puls&aacute;til de GnRH se desconoce (Evans <I>et al</I>., 2002). No se han identificado receptores para progesterona en las neuronas GnRH (Skinner <I>et al</I>., 2001); sin embargo, se han localizado receptores para progesterona en una gran cantidad de neuronas hipotal&aacute;micas productoras de neurotransmisores, por lo que es posible que esta hormona regule la actividad del sistema neurosecretor de GnRH durante la fase l&uacute;tea del ciclo estral de la oveja, de manera indirecta a trav&eacute;s de uno o varios sistemas neurotransmisores (Evans <I>et al</I>., 2002).</font></P>     <P align="justify"><font face="Verdana" size="2">La participaci&oacute;n del GABA como intermediario entre la P<sub>4</sub> y las neuronas GnRH en la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de GnRH se observ&oacute; al evaluar los cambios en la concentraci&oacute;n del neurotransmisor en el POA, utilizando microdi&aacute;lisis, en la &eacute;poca reproductiva el efecto de retroalimentaci&oacute;n negativa ejercido por P<sub>4</sub> durante la &eacute;poca reproductiva. Se colocaron implantes subcut&aacute;neos de P<sub>4</sub> a ovejas ovariectomizadas y se midieron concentraciones circulantes de la hormona similares a las observadas en la fase l&uacute;tea del ciclo estral. Las dosis administradas inhibieron la concentraci&oacute;n media de LH, lo cual se correlacion&oacute; con el incremento en la concentraci&oacute;n de GABA en el POA. Estas observaciones proporcionaron evidencia de que la acci&oacute;n central inhibitoria de la progesterona en la secreci&oacute;n puls&aacute;til de LH involucra a las neuronas gaba&eacute;rgicas en las regiones con neuronas GnRH. Este sistema neural participa de manera importante en la organizaci&oacute;n y regulaci&oacute;n de los eventos del ciclo estral ovino (Robinson y Kendrick, 1992). Se ha sugerido tambi&eacute;n la participaci&oacute;n de los p&eacute;ptidos opioides end&oacute;genos (POEs) como mediadores en la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de GnRH durante la fase l&uacute;tea del ciclo estral, pero este mecanismo debe ser estudiado con m&aacute;s detalle (Goodman <I>et al</I>., 2002).</font></P>     <P align="justify"><font face="Verdana" size="2">El efecto inhibitorio de la progesterona en la secreci&oacute;n puls&aacute;til de GnRH a nivel central es agudo, pues esa forma de secreci&oacute;n var&iacute;a (aumenta o disminuye) al inducir cambios de manera experimental en la concentraci&oacute;n circulante de P<sub>4</sub> (Evans <I>et al</I>., 2002). Lo anterior indica que la inhibici&oacute;n en la secreci&oacute;n puls&aacute;til de GnRH inducida por la P<sub>4</sub> no es mediada por un mecanismo gen&oacute;mico, pues de ser as&iacute;, el efecto ocurrir&iacute;a despu&eacute;s de d&iacute;as e incluso horas (Evans <I>et al</I>., 2002). La acci&oacute;n inhibitoria de la P<sub>4</sub> es mediada por el receptor cl&aacute;sico para progesterona (PR) y la administraci&oacute;n del antagonista del receptor competitivo para progesterona RU486 incrementa la secreci&oacute;n puls&aacute;til de LH en ovejas durante la fase l&uacute;tea del ciclo estral (Chabbert-Buffet <I>et al</I>., 2000; Evans <I>et al</I>., 2002; Goodman <I>et al</I>., 2002).</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Neurotransmisores y Estructuras Hipotal&aacute;micas Involucradas en el Anestro Estacional</font></P> </B>    ]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">Los estudios iniciales acerca del control neuroendocrino de la actividad reproductiva estacional de la oveja se desarrollaron en la d&eacute;cada de los 80. Goodman y Meyer (1984) aplicaron un anest&eacute;sico (pentobarbital) a ovejas en anestro y observaron un incremento en la secreci&oacute;n puls&aacute;til de LH. Posteriormente, Meyer y Goodman (1985, 1986) utilizando ovejas en anestro inducido con tratamientos de fotoperiodo artificial, demostraron la participaci&oacute;n de las catecolaminas en la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de LH durante esta etapa fisiol&oacute;gica. La administraci&oacute;n de antagonistas a-adren&eacute;rgicos y dopamin&eacute;rgicos caus&oacute; un incremento en la secreci&oacute;n puls&aacute;til de LH.</font></P>     <P align="justify"><font face="Verdana" size="2">Martin y Thi&eacute;ry (1987) emplearon estimulaci&oacute;n el&eacute;ctrica en el &aacute;rea retroquiasm&aacute;tica de ovejas ovariectomizadas. Esta &aacute;rea contiene la parte anterior del n&uacute;cleo infundibular en la posici&oacute;n sagital media (equivalente al n&uacute;cleo arcuato de la rata) y junto a este, se encuentra el &aacute;rea retroquiasm&aacute;tica lateral (Arch) hipotal&aacute;mica. La estimulaci&oacute;n el&eacute;ctrica del n&uacute;cleo infundibular indujo la secreci&oacute;n puls&aacute;til de LH, probablemente por la activaci&oacute;n directa de las terminales de las neuronas productoras de GnRH.</font></P>     <P align="justify"><font face="Verdana" size="2">La estimulaci&oacute;n del Arch reduce la secreci&oacute;n de LH, sugiriendo la presencia de elementos neurales inhibitorios de las neuronas GnRH. Esta &aacute;rea contiene el n&uacute;cleo A15 dopamin&eacute;rgico correspondiente a la parte ventral del n&uacute;cleo A15 de la rata y recibe una rica inervaci&oacute;n noradren&eacute;rgica. El n&uacute;cleo mencionado se localiza justo detr&aacute;s del quiasma &oacute;ptico y es distinto al &aacute;rea que contiene c&eacute;lulas dopamin&eacute;rgicas del sistema tuberoinfundibular, n&uacute;cleo A12 (<a href="#f4">Figura 4</a>; Thi&eacute;ry <I>et al</I>., 1995).</font></P>     <P align="justify"><font face="Verdana" size="2">Thi&eacute;ry <I>et al</I>. (1989) aplicaron una neurotoxina dopamin&eacute;rgica espec&iacute;fica, la 6-hidroxidopamina, dentro del n&uacute;cleo A15 de ovejas ovariectomizadas tratadas con estradiol y observaron que la destrucci&oacute;n del 20% de los cuerpos de las c&eacute;lulas dopamin&eacute;rgicas aument&oacute; la secreci&oacute;n puls&aacute;til de LH. Los resultados sugirieron que el n&uacute;cleo A15 es una de la &aacute;reas hipotal&aacute;micas clave involucradas en la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de LH mediada por el E<sub>2</sub> durante la &eacute;poca de d&iacute;as largos (anestro estacional). Havern <I>et al</I>. (1991) colocaron implantes intracraneales de pimozide (antagonista dopamin&eacute;rgico) en el &aacute;rea retroquiasm&aacute;tica y la eminencia media de ovejas en anestro, observ&aacute;ndose un aumento en la secreci&oacute;n puls&aacute;til de LH en los animales experimentales.</font></P>     <P align="justify"><font face="Verdana" size="2">Havern <I>et al</I>. (1994) observaron que la frecuencia de secreci&oacute;n de los pulsos de LH aument&oacute; despu&eacute;s de lesiones con radiofrecuencia en el n&uacute;cleo A14 y A15 de ovejas en anestro estacional. Lo anterior demostr&oacute; que no solo el n&uacute;cleo A15 interviene en la frecuencia de secreci&oacute;n de LH; el n&uacute;cleo A14 dopamin&eacute;rgico, localizado en la parte posteroventral del &aacute;rea pre&oacute;ptica, tambi&eacute;n tiene un papel inhibitorio en la liberaci&oacute;n puls&aacute;til de LH durante el anestro estacional de la oveja (Havern <I>et al</I>., 1994).</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Mecanismo de Retroalimentaci&oacute;n Negativa del Estradiol y Actividad Dopamin&eacute;rgica durante el Anestro</font></P> </B>    <P align="justify"><font face="Verdana" size="2">El mecanismo de acci&oacute;n del E<sub>2</sub> en la actividad dopamin&eacute;rgica del n&uacute;cleo A15 se ha estudiado por medio de la t&eacute;cnica de microdi&aacute;lisis. Gayrard <I>et al</I>. (1992) en un experimento donde se realizaron dos sesiones de di&aacute;lisis en ovejas ovariectomizadas, una despu&eacute;s de un tratamiento con E<sub>2</sub> durante 10 d&iacute;as y la otra despu&eacute;s de 10 d&iacute;as sin tratamiento, encontraron que el E<sub>2</sub> disminuy&oacute; la secreci&oacute;n puls&aacute;til de LH, sin afectar la secreci&oacute;n de prolactina. El esteroide tambi&eacute;n caus&oacute; un aumento en la concentraci&oacute;n de metabolitos catecolamin&eacute;rgicos, 4-hidroxi-3-metoxifenilglicol, &aacute;cido 3,4-dihidroxifenilac&eacute;tico y &aacute;cido homovan&iacute;lico, as&iacute; como &aacute;cido 5-hidroxi-indolac&eacute;tico, un metabolito de 5-hidroxitriptamina. Con lo anterior se demostr&oacute; que el E<sub>2</sub> estimula la actividad dopamin&eacute;rgica del n&uacute;cleo A15 durante el anestro estacional.</font></P>     <P align="justify"><font face="Verdana" size="2">Gayrard <I>et al</I>. (1994), con el prop&oacute;sito de establecer si el E<sub>2</sub> modifica la conversi&oacute;n de catecolaminas en el n&uacute;cleo A15, aplicaron un inhibidor (NSD1015) de la tirosina hidroxilasa (TH) por microdi&aacute;lisis en seis ovejas ovariectomizadas en anestro estacional inducido por fotoperiodo artificial, despu&eacute;s de 10 d&iacute;as de tratamiento con implante subcut&aacute;neo de E<sub>2</sub> y despu&eacute;s de 10 d&iacute;as sin tratamiento. Cuando las ovejas se trataron con E<sub>2</sub> se observ&oacute; inhibici&oacute;n en la secreci&oacute;n puls&aacute;til de LH, conjuntamente con la acumulaci&oacute;n de L-3-4-dihidroxifenilalanina (L-DOPA) en el n&uacute;cleo A15. Lo anterior demostr&oacute; que el E<sub>2</sub> estimula la actividad de la TH durante el anestro estacional de la oveja. En el mismo estudio se midieron los metabolitos de aminas extracelulares y la actividad de la TH <I>in vivo</I> en el n&uacute;cleo A15, en el cual el 45% de la actividad de las terminales noradren&eacute;rgicas hab&iacute;an sido desactivadas por lesi&oacute;n con una neurotoxina espec&iacute;fica (nomifensina), manteniendo las c&eacute;lulas dopamin&eacute;rgicas intactas. La lesi&oacute;n result&oacute; en disminuci&oacute;n del 4-hidroxi-3-metoxifeniletilenglicol (MHPG) e incremento compensatorio en el &aacute;cido 5-hidroxi-indolac&eacute;tico, ambos metabolitos catecolamin&eacute;rgicos, mientras la inhibici&oacute;n de la LH se mantuvo. La acumulaci&oacute;n de L-DOPA despu&eacute;s del bloqueo de la TH fue similar en animales lesionados y testigos. Se concluye que el incremento en la actividad de la TH estimulada por el E<sub>2</sub> en el n&uacute;cleo A15 se induce por el aumento espec&iacute;fico en los cuerpos celulares dopamin&eacute;rgicos y no por las terminales noradren&eacute;rgicas presentes en este n&uacute;cleo. Al parecer los terminales noradren&eacute;rgicas no participan en la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de LH.</font></P>     <P align="justify"><font face="Verdana" size="2">Los efectos del E<sub>2</sub> en los metabolitos catecolamin&eacute;rgicos se asocian o son precedidos por la reducci&oacute;n en la secreci&oacute;n puls&aacute;til de LH (Stefanovic <I>et al</I>., 2000). Lehman <I>et al</I>. (1996), empleando el factor de transcripci&oacute;n gen&eacute;tica c-Fos como indicador de activaci&oacute;n neuronal, confirmaron que el E<sub>2</sub> estimula la actividad de las c&eacute;lulas dopamin&eacute;rgicas. El tratamiento de ovejas ovariectomizadas con E2 increment&oacute; el porcentaje de neuronas dopamin&eacute;rgicas en el n&uacute;cleo A15 que expresan la prote&iacute;na c-Fos durante el anestro. Por el contrario, el mismo tratamiento en la &eacute;poca reproductiva no tuvo efecto (Lehman <I>et al</I>., 1996).</font></P>     <P align="justify"><font face="Verdana" size="2">El c-Fos, producto de la protooncog&eacute;nesis se utiliza de manera extensa como un marcador de activaci&oacute;n neuronal. Es uno de varios genes que aparecen cuando ocurren cambios neuronales en respuesta a la activaci&oacute;n por neurotransmisores, hormonas o factores de crecimiento. El heterod&iacute;mero de Fos y Jun, el producto de otro gen similar, puede aumentar la transcripci&oacute;n de genes adicionales, incluyendo aquellos que codifican productos neurosecretores tales como la GnRH (Moenter <I>et al</I>., 1993).</font></P> <B>    ]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">Sitios de Acci&oacute;n del Estradiol durante el Anestro</font></P> </B>    <P align="justify"><font face="Verdana" size="2">La localizaci&oacute;n de receptores </font><font size="2" face="Symbol">a</font><font face="Verdana" size="2"> de estradiol (RE<sub>2</sub>) en el cerebro de la oveja, por m&eacute;todos histoqu&iacute;micos, los ubic&oacute; en algunos cuerpos de las c&eacute;lulas dopamin&eacute;rgicas del n&uacute;cleo A12, pero no en A15 y A14 (<a href="#f5">Figura 5</a>; Lehman y Karsch, 1993; Goubillon <I>et al</I>., 1999). Por lo tanto, es poco probable que en la oveja ocurra un efecto estimulador directo del E<sub>2</sub> y se sugiere la participaci&oacute;n de sistemas neuronales como intermediarios (Thi&eacute;ry <I>et al</I>., 1995). Podr&iacute;an estar involucradas las terminales para noradrenalina y 5-hidroxitriptamina y es posible que las terminales noradren&eacute;rgicas del n&uacute;cleo A15 est&eacute;n involucradas en la inhibici&oacute;n de la secreci&oacute;n de LH dependiente de esteroides (Thi&eacute;ry <I>et al</I>., 1995). La actividad noradren&eacute;rgica precede a la actividad dopamin&eacute;rgica en una cascada de eventos que conducen a la inhibici&oacute;n de la secreci&oacute;n de LH durante el anestro estacional. Sin embargo, es poco probable que esta cascada ocurra en A15, pues la destrucci&oacute;n del 45% de esta inervaci&oacute;n no suprime la estimulaci&oacute;n de la actividad de la tirosina hidroxilasa o la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de LH (Gayrard <I>et al.,</I> 1994; Thi&eacute;ry <I>et al</I>., 1995). Por lo tanto, existe una relaci&oacute;n anat&oacute;mica entre los n&uacute;cleos A14 y A15 (Havern <I>et al</I>., 1994). Como el POA contiene RE<sub>2</sub> es posible que esta sea una v&iacute;a entre los receptores del POA, el n&uacute;cleo A14 y el A15 (Thi&eacute;ry <I>et al</I>., 1995).</font></P>     <P align="center"><a name="f5"><img border="0" src="/img/fbpe/inci/v31n1/art04img05.gif" width="377" height="398"></a></P>     
<P align="justify"><font face="Verdana" size="2">En otros estudios, Gallegos-S&aacute;nchez <I>et al</I>. (1997) colocaron implantes de estradiol en el &aacute;rea pre&oacute;ptica media (POAm), el &aacute;rea pre&oacute;ptica lateral (POAL), el n&uacute;cleo ventromedial (NVM), el &aacute;rea retroquiasm&aacute;tica (Arch) y el hipot&aacute;lamo periventricular posterior (HPVp) de ovejas Romanov y Romanov X <I>Ile de France</I> ovariectomizadas en anestro estacional o d&iacute;as largos constantes, y observaron que el E<sub>2</sub> act&uacute;a de manera directa en el Arch, espec&iacute;ficamente en A15, inhibiendo la secreci&oacute;n puls&aacute;til de LH. Sin embargo, al identificar las neuronas que contienen RE<sub>2</sub>, &eacute;stas se han localizado principalmente en el POA, hipot&aacute;lamo anterior (AH), septum ventrolateral, la base del n&uacute;cleo de la estr&iacute;a terminalis, el NVM y el n&uacute;cleo arcuato, pero no en A15 (Lehman <I>et al</I>., 1993; Kuiper <I>et al</I>., 1997). No hubo expresi&oacute;n del RNAm para RE<sub>2</sub> en A15, por lo que no es posible explicar el efecto inhibidor local de esta hormona esteroide en la secreci&oacute;n puls&aacute;til de LH durante los d&iacute;as largos (Thi&eacute;ry <I>et al</I>., 2002). Por otro lado, se ha sugerido que los cambios en el fotoperiodo pueden modificar la distribuci&oacute;n de RE<sub>2</sub>. Al respecto, Skinner y Herbison (1997) utilizando ovejas bajo reg&iacute;menes de luz artificial simulando d&iacute;as cortos y d&iacute;as largos, encontraron RE<sub>2</sub> en alrededor del 25% de neuronas del n&uacute;cleo A14 y 15% en el A12, independientemente de los cambios en el fotoperiodo, pero no encontraron receptores en A15. En contraste, el n&uacute;mero de c&eacute;lulas expresando RE<sub>2</sub> dentro del POA se elev&oacute; alrededor del 20% en las ovejas en anestro, comparado con los animales en fase l&uacute;tea.</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Sitios de Acci&oacute;n de la Dopamina en las Neuronas Productoras de GnRH durante el Anestro</font></P> </B>    <P align="justify"><font face="Verdana" size="2">En un primer intento para determinar la posible interacci&oacute;n entre el n&uacute;cleo A15 y las neuronas productoras de GnRH, se administr&oacute; una neurotoxina dentro de este n&uacute;cleo y se observaron los cambios en el contenido de aminas de la regi&oacute;n septopre&oacute;ptica, donde se encuentran los cuerpos celulares de las neuronas productoras de GnRH y en la eminencia media (EM), donde se localizan las terminales de estas neuronas. Se observ&oacute; disminuci&oacute;n en el contenido de dopamina, &aacute;cido 3,4-hidroxifenilac&eacute;tico y &aacute;cido homovan&iacute;lico en EM y reducci&oacute;n en el contenido de dopamina, &aacute;cido 3,4-hidroxifenilac&eacute;tico y noradrenalina en el n&uacute;cleo infundibular, lo que sugiere una relaci&oacute;n funcional entre el n&uacute;cleo A15, el hipot&aacute;lamo mediobasal (HMB) y la EM. La administraci&oacute;n perif&eacute;rica de domperidone (antagonista dopamin&eacute;rgico) indujo un aumento en la liberaci&oacute;n de LH (Deaver <I>et al</I>., 1987). El domperidone no atraviesa la barrera hematoencef&aacute;lica, por lo que este tratamiento tiene efecto s&oacute;lo a nivel de EM. La participaci&oacute;n de la EM sugiere una acci&oacute;n inhibitoria de la dopamina por medio de supresi&oacute;n presin&aacute;ptica en los axones terminales de GnRH. Estudios anat&oacute;micos dan sost&eacute;n a esta hip&oacute;tesis y permiten sugerir la presencia de terminales catecolamin&eacute;rgicas cercanas a las terminales GnRH en la EM (Kuljis y Advis, 1989). Posteriormente se determin&oacute; (Vigui&eacute; <I>et al</I>., 1996) que el fotoperiodo controla la actividad de las neuronas catecolamin&eacute;rgicas a nivel de EM; durante los d&iacute;as largos se observ&oacute; un incremento en la s&iacute;ntesis de dopamina y aumento en la actividad de la TH, asociados con la disminuci&oacute;n en la secreci&oacute;n puls&aacute;til de LH y aumento en la secreci&oacute;n de prolactina. Lo anterior sugiere que la inhibici&oacute;n de la secreci&oacute;n puls&aacute;til de LH, mediada por el sistema dopamin&eacute;rgico, ocurre tambi&eacute;n en la eminencia media durante un fotoperiodo largo (Viguie <I>et al</I>., 1996).</font></P>     <P align="justify"><font face="Verdana" size="2">Varios estudios realizados en ovejas adultas durante el anestro estacional sugieren que la dopamina act&uacute;a sobre la secreci&oacute;n de GnRH a nivel de EM (Thi&eacute;ry <I>et al</I>., 2002), pues la concentraci&oacute;n de dopamina en tejido y la bioactividad de la TH en EM son m&aacute;s altas durante los d&iacute;as largos que durante los d&iacute;as cortos. Por otra parte, la inyecci&oacute;n de pimozide, un antagonista de los receptores dopamin&eacute;rgicos D2 (Havern <I>et al</I>., 1991), y la alfametilparatirosina, un inhibidor de la s&iacute;ntesis de catecolaminas, bloquean la s&iacute;ntesis de TH en EM (Bertrand <I>et al</I>., 1998) y estimula la secreci&oacute;n puls&aacute;til de LH en ovejas ovariectomizadas tratadas con E<sub>2</sub> durante los d&iacute;as largos.</font></P>     <P align="justify"><font face="Verdana" size="2">En la EM, la estimulaci&oacute;n de los receptores D2 inhibe la secreci&oacute;n puls&aacute;til de LH (Bertrand <I>et al</I>., 1999). La inhibici&oacute;n dopamin&eacute;rgica de la secreci&oacute;n de las c&eacute;lulas productoras de GnRH puede ser, por lo tanto, presin&aacute;ptica y puede ocurrir en las terminales de las neuronas en EM a trav&eacute;s de los receptores D2. Sin embargo, el papel de A15 no se ha establecido en esta inhibici&oacute;n, puesto que las terminales de este n&uacute;cleo se han encontrado en la neurohip&oacute;fisis (Thi&eacute;ry <I>et al</I>., 2002).</font></P>     <P align="justify"><font face="Verdana" size="2">En la regulaci&oacute;n de la pulsatilidad de LH, el n&uacute;cleo A15 probablemente s&oacute;lo proporciona una se&ntilde;al "de paso" hacia EM para amplificar la inhibici&oacute;n de la actividad de las c&eacute;lulas dopamin&eacute;rgicas del n&uacute;cleo infundibular A12, la cual es dependiente del fotoperiodo (Thi&eacute;ry <I>et al</I>., 2002). De manera alternativa, se sugiere una asociaci&oacute;n entre A15 y los cuerpos de las neuronas productoras de GnRH del HMB, las que est&aacute;n involucradas en la regulaci&oacute;n de la secreci&oacute;n puls&aacute;til de LH (Boukhliq <I>et al</I>., 1999).</font></P>     <P align="justify"><font face="Verdana" size="2">De esta manera se propone que la inhibici&oacute;n de la actividad de las neuronas GnRH durante el anestro estacional de la oveja puede depender de una acci&oacute;n en las terminales de la eminencia media, independiente de E<sub>2</sub> y un efecto dependiente de E<sub>2</sub> a nivel de los cuerpos neuronales de las c&eacute;lulas GnRH (Thi&eacute;ry <I>et al</I>., 2002).</font></P> <B>    ]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">Conclusiones</font></P> </B>    <P align="justify"><font face="Verdana" size="2">Una compleja red neural participa en la regulaci&oacute;n o sincronizaci&oacute;n de los eventos reproductivos anuales de la oveja. Es claro que el efecto hormonal sobre la reproducci&oacute;n a nivel central var&iacute;a dependiendo de la &eacute;poca del a&ntilde;o. Es de inter&eacute;s la acci&oacute;n dual del estradiol al inhibir (anestro) o estimular (&eacute;poca reproductiva) la secreci&oacute;n puls&aacute;til de GnRH/LH. La participaci&oacute;n de neurotransmisores (dopamina, GABA, POEs) como intermediarios en este mecanismo es fundamental. Sin embargo, aun no es posible explicar de manera definitiva los mecanismos que controlan el ciclo reproductivo anual de la oveja, ni las &aacute;reas hipotal&aacute;micas implicadas. Actualmente es posible explicar una gran parte de estos procesos, sin embargo son necesarios m&aacute;s estudios para lograr una visi&oacute;n integral del fen&oacute;meno.</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Implicaciones</font></P> </B>    <P align="justify"><font face="Verdana" size="2">Los avances en esta &aacute;rea de conocimiento permiten explicar, desde el punto de vista de la neuroendocrinolog&iacute;a, el fen&oacute;meno de la estacionalidad reproductiva. El modelo de estudio utilizado es la oveja originaria o que habita en latitudes mayores de 35º, con anestro estacional claro y con duraci&oacute;n de seis &oacute; siete meses. Sin embargo, existen ovejas de origen ecuatorial (razas de pelo) que expresan un anestro estacional corto (2-3 meses) e incluso son capaces de mostrar actividad ovulatoria todo el a&ntilde;o (Arroyo <I>et al</I>., 2005). El patr&oacute;n reproductivo anual de las razas de pelo difiere claramente del observado en las razas de origen septentrional y su potencial productivo, al no expresar anestro estacional, es importante. Por esta raz&oacute;n resulta de inter&eacute;s conocer y explicar a nivel neuroendocrino los fen&oacute;menos fisiol&oacute;gicos que regulan su actividad reproductiva a trav&eacute;s del a&ntilde;o y que les permiten mostrar actividad ovulatoria anual continua y determinar las diferencias con las razas estacionales. Por lo tanto, se sugiere utilizarlas como modelo de estudio en futuras investigaciones.</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Agradecimientos</font></P> </B>    <P align="justify"><font face="Verdana" size="2">Los autores agradecen a DGAPA por el financiamiento otorgado al proyecto IN-205803 a trav&eacute;s del Programa de Apoyo a Proyectos de Investigaci&oacute;n e Innovaci&oacute;n Tecnol&oacute;gica (PAPIIT), UNAM, M&eacute;xico.</font></P> <B>    <P align="justify"><font face="Verdana" size="2">Referencias</font></P> </B>    <!-- ref --><P align="justify"><font face="Verdana" size="2">1. Arendt J (1998) Melatonin and the pineal gland: influence on mammalian seasonal and circadian physiology. <I>Rev. Reprod. 3</I>: 13-22.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009221&pid=S0378-1844200600010000400001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">2. Arroyo LJ, Gallegos SJ, Berruecos JM, Valencia J (2005) Actividad ovulatoria anual en ovejas Pelibuey y Suffolk. <I>XXIX Congreso Nacional de Buiatria</I>. Puebla, M&eacute;xico. 8 pp.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009222&pid=S0378-1844200600010000400002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">3. Bartlewski MP, Vanderpol J, Beard PA, Cook JS, Rawlings CN (2000) Ovarian antral follicular dynamics and their associations with peripheral concentrations of gonadotropins and ovarian steroids in anoestrous Finnish Landrace ewes. <I>Anim. Reprod. Sci. 58</I>: 273-291.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009223&pid=S0378-1844200600010000400003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">4. Barrell GK, Moenter SM, Caraty A, Karsch FJ (1992) Seasonal changes of gonadotropin-releasing hormone secretion in the ewe. <I>Biol. Reprod. 46</I>: 1130-1135.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009224&pid=S0378-1844200600010000400004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">5. Bertrand F, Vigui&eacute; C, Picard S, Malpaux B (1998) Median eminence dopaminergic activation is critical for the early long-day inhibition of luteinizing hormone secretion in the ewe. <I>Endocrinology 139</I>: 5094-5102.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009225&pid=S0378-1844200600010000400005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">6. Bertrand F, Thi&eacute;ry JC, Picard S, Malpaux B (1999) Implication of D2-like dopaminergic receptors in the median eminence during the establishment of long-day inhibition of LH secretion in the ewe. <I>J. Endocrinol. 163</I>: 243-254.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009226&pid=S0378-1844200600010000400006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">7. Blache D, Batailler M, Fabre-Nys C (1994) Oestrogen receptors in the preoptic hyphotalamic continuum: immunohistochemical study of the distribution and cell density during oestrous cycle in ovariectomized ewe. <I>J. Neuroendocrinol. 6</I>: 329-339.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009227&pid=S0378-1844200600010000400007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">8. Boukhliq R, Goodman LR, Berriman JS, Adrian B, Lehman M (1999) A subset of gonadotropin-releasing hormone neurons in the ovine medial basal hypothalamus is activated during increasing pulsatile luteinizing hormone secretion. <I>Endocrinology 140</I>: 5929-5936.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009228&pid=S0378-1844200600010000400008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">9. Caldani M, Batailler M, Thi&eacute;ry JC, Dubois MP (1988) LHRH-immunoreactive structures in the sheep brain. <I>Histochemistry 89</I>: 129-139.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009229&pid=S0378-1844200600010000400009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">10. Caraty A, Fabre-Nys C, Delaleu B, Locatelli A, Bruneau G, Karsch FJ, Herbison A (1998) Evidence that the mediobasal hypothalamus is the primary site of action of estradiol in inducing the preovulatory gonadotropin releasing hormone surge in the ewe. <I>Endocrinology 139</I>: 1752-1760.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009230&pid=S0378-1844200600010000400010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">11. Caraty A, Delaleu B, Chesneau D, Fabre-Nys C (2002) Sequential role of E2 and GnRH for the expression of estrous behavior in ewes. <I>Endocrinology 143</I>: 139-145.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009231&pid=S0378-1844200600010000400011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">12. Chabbert-Buffet N, Skinner DC, Caraty A, Bouchard P (2000) Neuroendocrine effects of progesterone. <I>Steroids 65</I>: 613-620.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009232&pid=S0378-1844200600010000400012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">13. Chemineau P, Daveau A, Bodin L, Zarazaga L, G&oacute;mez-Brunet A, Malpaux B (2002) Sheep as a mammalian model of genetic variability in melatonin. <I>Reprod. Suppl. 59</I>: 181-190.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009233&pid=S0378-1844200600010000400013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">14. Clarke IJ, Cummins JT (1982) The temporal relationship between gonadotropin releasing hormone (GnRH) and luteinizing hormone (LH) secretion in ovariectomized ewes. <I>Endocrinology 111</I>: 1737-1739.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009234&pid=S0378-1844200600010000400014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">15. Deaver DR, Dailey RA (1982) Effects of dopamine, norepinephrine and serotonin on plasma concentrations of luteinizing hormone and prolactin in ovariectomized and anestrous ewes. <I>Biol. Reprod. 27</I>: 624-632.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009235&pid=S0378-1844200600010000400015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">16. Deaver DR, Keisler DH, Dailey RA (1987) Effects of domperidone and thyrotropin-releasing hormone on secretion of luteinizing hormone and prolactin during the luteal phase and following induction of luteal regression in sheep. <I>Domest. Anim. Endocrinol. 4</I>: 95-102.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009236&pid=S0378-1844200600010000400016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">17. Evans ACO, Duffy P, Hynes N, Boland MP (2000) Waves of follicle development during the estrous cycle in sheep. <I>Theriogenology 53</I>: 699-715.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009237&pid=S0378-1844200600010000400017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">18. Evans NP, Richter TA, Skinner DC, Robinson JE (2002) Neuroendocrine mechanisms underlying the effects of progesterone on the oestradiol-induced GnRH/LH surge. <I>Reprod. Suppl. 59</I>: 57-66.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009238&pid=S0378-1844200600010000400018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">19. Gallegos-S&aacute;nchez J, Delaleu B, Caraty A, Malpaux B, Thi&eacute;ry JC (1997) Estradiol acts locally within the retrochiasmatic area to inhibit pulsatile luteinizing-hormone release in the female sheep during anestrus. <I>Biol. Reprod.. 56</I>: 1544-1549.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009239&pid=S0378-1844200600010000400019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">20. Gallegos-S&aacute;nchez J, Malpaux B, Thi&eacute;ry JC (1998) Control of pulsatile LH secretion during seasonal anoestrus in the ewe. <I>Reprod. Nutr. Develop. 38</I>: 3-15.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009240&pid=S0378-1844200600010000400020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">21. Gallegos-S&aacute;nchez J, Hern&aacute;ndez PP, Albarr&aacute;n A (1999) Neuroendocrinolog&iacute;a del ciclo reproductivo de la oveja. En <I>Memorias del curso internacional en fisiolog&iacute;a de la reproducci&oacute;n en rumiantes</I>. Colegio de Postgraduados, Montecillo, Texcoco, M&eacute;xico. pp. 1-26.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009241&pid=S0378-1844200600010000400021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">22. Gayrard V, Malpaux B, Thi&eacute;ry JC (1992) Oestradiol increases the extracellular levels of amine metabolites in the ewe hypothalamus during anoestrus: a microdialisis study. <I>J. Endocrinol. 135</I>: 421-430.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009242&pid=S0378-1844200600010000400022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">23. Gayrard V, Malpaux B, Tillet Y, Thi&eacute;ry JC (1994) Estradiol increases tyrosine hydroxylase activity of the A15 nucleus dopaminergic neurons during long days in the ewe. <I>Biol. Reprod. 50</I>: 1168-1177.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009243&pid=S0378-1844200600010000400023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">24. Goodman RL, Meyer SL (1984) Effects of pentobarbital anesthesia on tonic luteinizing hormone secretion in the ewe: Evidence for active inhibition of luteinizing hormone in anestrus. <I>Biol. Reprod. 30</I>: 374-381.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009244&pid=S0378-1844200600010000400024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">25. Goodman RL, Gibson M, Skinner DC, Lehman MN (2002) Neuroendocrine control of pulsatile GnRH secretion during the ovarian cycle: evidence from ewe. <I>Reprod. Suppl. 59</I>: 41-56.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009245&pid=S0378-1844200600010000400025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">26. Goubillon ML, Delaleu B, Tillet Y, Caraty A, Herbison AE (1999) Localization of estrogen-receptive neurons projecting to the GnRH neuron-containing rostral preoptic area of the ewe. <I>Neuroendocrinology 70</I>: 228-236.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009246&pid=S0378-1844200600010000400026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">27. Hafez ESE (1952) Studies on the breeding season and reproduction of the ewe. <I>J. Agric. Sci. 42</I>: 189-265.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009247&pid=S0378-1844200600010000400027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">28. Havern LR, Whisnant SC, Goodman LR (1991) Hypothalamic sites of catecholamine inhibition of luteinizing hormone in the anestrous ewe. <I>Biol. Reprod..</I> <I>44</I>: 476-482.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009248&pid=S0378-1844200600010000400028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">29. Havern LR, Whisnant SC, Goodman LR (1994) Dopaminergic structures in the ovine hypothalamus mediating estradiol negative feedback in anestrous ewes. <I>Endocrinology 134</I>: 1905-1914.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009249&pid=S0378-1844200600010000400029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">30. Herbison AE (1995) Neurochemical identity of neurons expressing oestrogen and androgen receptors in sheep hypothalamus. <I>J. Reprod. Fert., </I>Suppl. <I>49</I>: 271-283.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009250&pid=S0378-1844200600010000400030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">31. Jackson GL, Kuehl D (2002) Gamma-aminobutyric acid (GABA) regulation of GnRH secretion in sheep. <I>Reprod. Suppl. 59</I>: 15-24.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009251&pid=S0378-1844200600010000400031&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">32. Karsch FJ, Bittman LE, Foster LD, Goodman LR, Legan JS, Robinson EJ (1984) Neuroendocrine basis of seasonal reproduction. <I>Rec. Progr. Hormone Res. 40</I>: 185-231.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009252&pid=S0378-1844200600010000400032&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">33. Karsch FJ, Dahl GE, Evans NP, Manning JM, Mayfield KP, Moenter SM, Foster DL (1993) Seasonal changes in gonadotropin-releasing hormone secretion in the ewe: Alteration in response to the negative feedback action of estradiol. <I>Biol. Reprod. 49</I>: 1377-1383.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009253&pid=S0378-1844200600010000400033&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">34. Karsch FJ, Bowen JM, Caraty A, Evans NP, Moenter SM (1997) Gonadotropin-releasing hormone requirements for ovulation. <I>Biol Reprod</I>.<I> 56</I>: 303-309.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009254&pid=S0378-1844200600010000400034&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">35. Kuiper GGJM, Carlsson B, Grandien K, Enmark E, Haggblad J, Nilsson S, Gustafsson JA (1997) Comparison of the ligand binding specificity and transcript tissue distribution of estrogen receptors a and b. <I>Endocrinology</I> <I>138</I>: 863-870.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009255&pid=S0378-1844200600010000400035&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">36. Kuljis RO, Advis JP (1989) Immunocytochemical and physiological evidence of a synapse between dopamine and luteinizing hormone releasing hormone containing neurons in the ewe median eminence. <I>Endocrinology</I> <I>124</I>: 1579-1581.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009256&pid=S0378-1844200600010000400036&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">37. Le Corre S, Chemineau P (1993a) Serotonergic 5HT2 receptors mediate the inhibitory action of serotonin on luteinizing hormone secretion in ovariectomized, estradiol-treated ewes that are refractory to short days. <I>Biol. Reprod. 49</I>: 140-147.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009257&pid=S0378-1844200600010000400037&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">38. Le Corre S, Chemineau P (1993b) Control of photoperiodic inhibition of luteinizing hormone secretion by dopaminergic and serotonergic systems in ovariectomized Ile-de-France ewes supplemented with oestradiol. <I>J. Reprod. Fert. 97</I>: 367-373.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009258&pid=S0378-1844200600010000400038&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">39. Legan JS, Karsch JF (1979) Neuroendocrine regulation of the estrous cycle and seasonal breeding in the ewe. <I>Biol. Reprod. 20</I>: 74-85.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009259&pid=S0378-1844200600010000400039&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">40. Lehman MN, Karsch FJ (1993) Do gonadotropin-releasing hormone, tyrosine hydroxylase-, and b-endorphin-immunoreactive neurons contain estrogen receptors? A double-label immunocytochemical study in the Suffolk ewe. <I>Endocrinology 133</I>: 887-895.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009260&pid=S0378-1844200600010000400040&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">41. Lehman MN, Ebling PJF, Moenter MS, Karsch FJ (1993) Distribution of estrogen receptor-immunoreactive cells in the sheep brain. <I>Endocrinology 133</I>: 876-886.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009261&pid=S0378-1844200600010000400041&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">42. Lehman MN, Durham DM, Jansen HT, Adrian B, Goodman RL (1996) Dopaminergic A14/A15 neurons are activated during estradiol negative feedback in anestrous, but not breeding season ewes. <I>Endocrinology 137</I>: 4443-4450.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009262&pid=S0378-1844200600010000400042&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">43. Lehman MN, Coolen LM, Goodman RL, Vigui&eacute; C, Billings HJ, Karsch FJ (2002) Seasonal plasticity in the brain: the use of large animal models for neuroanatomical research. <I>Reprod. Suppl. 59</I>: 149-165.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009263&pid=S0378-1844200600010000400043&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">44. Lincoln GA, Short RV (1980) Seasonal breeding: Nature’s contraceptive. <I>Rec. Prog. Hormone Res. 36</I>: 1-52.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009264&pid=S0378-1844200600010000400044&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">45. Malpaux B, Vigui&eacute; C, Skinner DC, Thi&eacute;ry JC, Pelletier J, Chemineau P (1996) Seasonal breeding in sheep: Mechanism of action of melatonin. <I>Anim. Reprod. Sci</I>.<I> 42</I>: 109-117.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009265&pid=S0378-1844200600010000400045&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">46. Malpaux B, Thi&eacute;ry JC, Chemineau P (1999) Melatonin and the seasonal control of reproduction. <I>Reprod. Nutr. Develop.. 39</I>: 355-366.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009266&pid=S0378-1844200600010000400046&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">47. Malpaux B, Tricoire H, Mailliet F, Daveau A, Migaud M, Skinner DC, Pelletier J, Chemineau P (2002) Melatonin and seasonal reproduction: understanding the neuroendocrine mechanisms using the sheep as a model. <I>Reprod. Suppl. 59</I>: 167-179.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009267&pid=S0378-1844200600010000400047&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">48. Martin GB, Thi&eacute;ry JC (1987) Hypothalamic multiunit activity and LH secretion in conscious sheep. <I>Exp. Brain Res. 67</I>: 469-478.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009268&pid=S0378-1844200600010000400048&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">49. McMillen JC, Houghton DC, Young IR (1995) Melatonin and the development of circadian and seasonal rhythmicity. <I>J. Reprod. Fert.</I>. Suppl. <I>49</I>: 137-146.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009269&pid=S0378-1844200600010000400049&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">50. McNatty KP, Hudson NL, Henderson KM, Lun S, Heath DA, Gibb M, Ball K, McDiarmid JM,Thurley DC (1984) Changes in gonadotropin secretion and ovarian antral follicular activity in seasonally breeding sheep throughout the year. <I>J. Reprod. Fert. 70</I>: 309-321.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009270&pid=S0378-1844200600010000400050&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">51. Meyer SL, Goodman RL (1985) Neurotransmitters involved in mediating the steroid-dependent suppression of pulsatile luteinizing hormone secretion in anoestrus ewes: effects of receptors antagonists. <I>Endocrinology 116</I>: 2054-2061.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009271&pid=S0378-1844200600010000400051&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">52. Meyer SL, Goodman RL (1986) Separate neural systems mediate the steroid-dependent and steroid-independent suppression of tonic luteinizing hormone secretion in the anoestrus ewe. <I>Biol. Reprod. 35</I>: 562-571.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009272&pid=S0378-1844200600010000400052&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">53. Moenter SM, Karsch FJ, Lehman MN (1993) Fos expression during the estradiol-induced gonadotropin-releasing hormone (GnRH) surge of the ewe: Induction in GnRH and other neurons. <I>Endocrinology 133</I>: 896-903.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009273&pid=S0378-1844200600010000400053&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">54. Noel B, Bister JL, Paquay R (1993) Ovarian follicular dynamics in Suffolk ewes at different periods of the year. <I>J, Reprod. Fert</I>.<I> 99</I>: 695-700.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009274&pid=S0378-1844200600010000400054&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">55. Padilla RFJ, Mapes SGE, Jim&eacute;nez KF (1988) Perfiles hormonales durante el ciclo estral de la oveja. <I>T&eacute;cnica Pecuaria en M&eacute;xico 28</I>: 96-108.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009275&pid=S0378-1844200600010000400055&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">56. Pfaff D, Schwanzel-Fukuda M, Parhar I, Lauber A, McCarty I, Kow I (1994) GnRH neurons and other cellular and molecular mechanisms for simple mammalian reproductive behaviors. <I>Rec. Progr. Hormone Res. 49</I>: 1-25.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009276&pid=S0378-1844200600010000400056&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">57. Ravindra JP, Rawlings NC (1997) Ovarian follicular dynamics in ewes during the transition from anoestrus to the breeding season. <I>J. Reprod. Fert. 110</I>: 279-289.</font> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009277&pid=S0378-1844200600010000400057&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">58. Robinson JE (1995) Gamma amino-butyric acid and the control of GnRH secretion in sheep. <I>J. Reprod. Fert.</I> Suppl.<I> 49</I>: 221-230.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009278&pid=S0378-1844200600010000400058&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">59. Robinson JE, Kendrick KM (1992) Inhibition of luteinizing hormone secretion in the ewe by progesterone: associated changes in the release of gamma-aminobutyric acid and noradrenaline in the preoptic area as measured by intracranial microdialysis. <I>J. Neuroendocrinol</I>.<I> 4</I>: 231-236.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009279&pid=S0378-1844200600010000400059&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">60. Skinner DC, Herbison EA (1997) Effects of photoperiod on estrogen receptor, tyrosine hydroxilase, neuropeptide Y, and b-endorphin immunoreactivity in the ewe hyphotahlamus. <I>Endocrinology 138</I>: 2585-2595.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009280&pid=S0378-1844200600010000400060&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">61. Skinner DC, Malpaux B, Delaleu B, Caraty A (1995) Luteinizing hormone (LH)-releasing hormone in third ventricular cerebrospinal fluid of the ewe: Correlation with LH pulses and the LH surge. <I>Endocrinology 136</I>: 3230-3237.</font> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009281&pid=S0378-1844200600010000400061&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">62. Skinner DC, Caraty A, Allingham R (2001) Unmasking the progesterone receptor in the preoptic area and hypothalamus of the ewe: no colocalization with gonadotropin-releasing neurons. <I>Endocrinology 142</I>: 573-579.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009282&pid=S0378-1844200600010000400062&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">63. Souza JHC, Campbell KB, Baird TD (1997) Follicular dynamics and ovarian steroid secretion in sheep during the follicular and early luteal phases of the estrous cycle. <I>Biol. Reprod. 56</I>: 483-488.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009283&pid=S0378-1844200600010000400063&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">64. Stefanovic I, Adrian B, Jansen HT, Lehman MN, Goodman RL (2000) The ability of estradiol to induce fos expression in a subset of estrogen receptor-a-containing neurons in the preoptic area of the ewe depends on reproductive status. <I>Endocrinology 141</I>: 190-196.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009284&pid=S0378-1844200600010000400064&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">65. Thi&eacute;ry JC, Martin GB, Tillet Y, Caldani M, Quentin M, Jamain C, Ravault JP (1989) Role of Hypothalamic catecholamines in the regulation of luteinizing hormone and prolactin secretion in the ewe during seasonal anestrus. <I>Neuroendocrinology 49</I>: 80-87.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009285&pid=S0378-1844200600010000400065&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">66. Thi&eacute;ry JC, Gayrard V, Le Corre S, Vigui&eacute; C, Martin GB, Chemineau P, Malpaux B (1995) Dopaminergic control of LH secretion by the A15 nucleus in anoestrus ewes. <I>J. Reprod. Fert.</I> Suppl. <I>49</I>: 285-296.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009286&pid=S0378-1844200600010000400066&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">67. Thi&eacute;ry JC, Chemineau P, Hern&aacute;ndez X, Migaud M, Malpaux B (2002) Neuroendocrine interactions and seasonality. <I>Domest. Anim. Endocrinol. 2</I>3: 87-100.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009287&pid=S0378-1844200600010000400067&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">68. Tillet Y (1995) Distribution of neurotransmitters in the sheep brain. <I>J. Reprod. Fert..</I> Supplement <I>49</I>: 199-220.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009288&pid=S0378-1844200600010000400068&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">69. Vigui&eacute; C, Thibault J, Thi&eacute;ry JC, Tillet Y, Malpaux B (1996) Photoperiodic modulation of monoamines and amino-acids involved in the control of prolactin and LH secretion in the ewe: evidence for a regulation of tyrosine hydroxylase activity. <I>J. Neuroendocrinol. 8</I>: 465-474.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009289&pid=S0378-1844200600010000400069&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">70. Vigui&eacute; C, Thibault J, Thi&eacute;ry JC, Tillet Y, Malpaux B (1997) Characterization of the short day-induced decrease in median eminence tyrosine hydroxylase activity in the ewe: temporal relationship to the changes in luteinizing hormone and prolactin secretion and short day-like effect of melatonin. <I>Endocrinology 138</I>: 499-506.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009290&pid=S0378-1844200600010000400070&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">71. Williams LM, Helliwell RJA (1993) Melatonin and seasonality in the sheep. <I>Anim. Reprod. Sci</I>.<I> 33</I>: 159-182.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009291&pid=S0378-1844200600010000400071&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">72. Yeates NTM (1949) The breeding season of the sheep with particular reference to its modification by artificial means using light. <I>J. Agric. Sci. 39</I>: 1-43.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1009292&pid=S0378-1844200600010000400072&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Arendt]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Melatonin and the pineal gland: influence on mammalian seasonal and circadian physiology]]></article-title>
<source><![CDATA[Rev. Reprod]]></source>
<year>1998</year>
<volume>3</volume>
<page-range>13-22</page-range></nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="confpro">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Arroyo]]></surname>
<given-names><![CDATA[LJ]]></given-names>
</name>
<name>
<surname><![CDATA[Gallegos]]></surname>
<given-names><![CDATA[SJ]]></given-names>
</name>
<name>
<surname><![CDATA[Berruecos]]></surname>
<given-names><![CDATA[JM]]></given-names>
</name>
<name>
<surname><![CDATA[Valencia]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<source><![CDATA[Actividad ovulatoria anual en ovejas Pelibuey y Suffolk]]></source>
<year>2005</year>
<conf-name><![CDATA[XXIX Congreso Nacional de Buiatria]]></conf-name>
<conf-loc>Puebla </conf-loc>
<page-range>8</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bartlewski]]></surname>
<given-names><![CDATA[MP]]></given-names>
</name>
<name>
<surname><![CDATA[Vanderpol]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Beard]]></surname>
<given-names><![CDATA[PA]]></given-names>
</name>
<name>
<surname><![CDATA[Cook]]></surname>
<given-names><![CDATA[JS]]></given-names>
</name>
<name>
<surname><![CDATA[Rawlings]]></surname>
<given-names><![CDATA[CN]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ovarian antral follicular dynamics and their associations with peripheral concentrations of gonadotropins and ovarian steroids in anoestrous Finnish Landrace ewes]]></article-title>
<source><![CDATA[Anim. Reprod. Sci]]></source>
<year>2000</year>
<volume>58</volume>
<page-range>273-291</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barrell]]></surname>
<given-names><![CDATA[GK]]></given-names>
</name>
<name>
<surname><![CDATA[Moenter]]></surname>
<given-names><![CDATA[SM]]></given-names>
</name>
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Seasonal changes of gonadotropin-releasing hormone secretion in the ewe]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1992</year>
<volume>46</volume>
<page-range>1130-1135</page-range></nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bertrand]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[Viguié]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Picard]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Median eminence dopaminergic activation is critical for the early long-day inhibition of luteinizing hormone secretion in the ewe]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1998</year>
<volume>139</volume>
<page-range>5094-5102</page-range></nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bertrand]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Picard]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Implication of D2-like dopaminergic receptors in the median eminence during the establishment of long-day inhibition of LH secretion in the ewe]]></article-title>
<source><![CDATA[J. Endocrinol]]></source>
<year>1999</year>
<volume>163</volume>
<page-range>243-254</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Blache]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Batailler]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Fabre-Nys]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Oestrogen receptors in the preoptic hyphotalamic continuum: immunohistochemical study of the distribution and cell density during oestrous cycle in ovariectomized ewe]]></article-title>
<source><![CDATA[J. Neuroendocrinol]]></source>
<year>1994</year>
<volume>6</volume>
<page-range>329-339</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Boukhliq]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[LR]]></given-names>
</name>
<name>
<surname><![CDATA[Berriman]]></surname>
<given-names><![CDATA[JS]]></given-names>
</name>
<name>
<surname><![CDATA[Adrian]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A subset of gonadotropin-releasing hormone neurons in the ovine medial basal hypothalamus is activated during increasing pulsatile luteinizing hormone secretion]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1999</year>
<volume>140</volume>
<page-range>5929-5936</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Caldani]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Batailler]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Dubois]]></surname>
<given-names><![CDATA[MP]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[LHRH-immunoreactive structures in the sheep brain]]></article-title>
<source><![CDATA[Histochemistry]]></source>
<year>1988</year>
<volume>89</volume>
<page-range>129-139</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Fabre-Nys]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Delaleu]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Locatelli]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Bruneau]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
<name>
<surname><![CDATA[Herbison]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Evidence that the mediobasal hypothalamus is the primary site of action of estradiol in inducing the preovulatory gonadotropin releasing hormone surge in the ewe]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1998</year>
<volume>139</volume>
<page-range>1752-1760</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Delaleu]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Chesneau]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Fabre-Nys]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sequential role of E2 and GnRH for the expression of estrous behavior in ewes]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>2002</year>
<volume>143</volume>
<page-range>139-145</page-range></nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Chabbert-Buffet]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Bouchard]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neuroendocrine effects of progesterone]]></article-title>
<source><![CDATA[Steroids]]></source>
<year>2000</year>
<volume>65</volume>
<page-range>613-620</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Daveau]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Bodin]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Zarazaga]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Gómez-Brunet]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sheep as a mammalian model of genetic variability in melatonin]]></article-title>
<source><![CDATA[Reprod. Suppl]]></source>
<year>2002</year>
<volume>59</volume>
<page-range>181-190</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Clarke]]></surname>
<given-names><![CDATA[IJ]]></given-names>
</name>
<name>
<surname><![CDATA[Cummins]]></surname>
<given-names><![CDATA[JT]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The temporal relationship between gonadotropin releasing hormone (GnRH) and luteinizing hormone (LH) secretion in ovariectomized ewes]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1982</year>
<volume>111</volume>
<page-range>1737-1739</page-range></nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Deaver]]></surname>
<given-names><![CDATA[DR]]></given-names>
</name>
<name>
<surname><![CDATA[Dailey]]></surname>
<given-names><![CDATA[RA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effects of dopamine, norepinephrine and serotonin on plasma concentrations of luteinizing hormone and prolactin in ovariectomized and anestrous ewes]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1982</year>
<volume>27</volume>
<page-range>624-632</page-range></nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Deaver]]></surname>
<given-names><![CDATA[DR]]></given-names>
</name>
<name>
<surname><![CDATA[Keisler]]></surname>
<given-names><![CDATA[DH]]></given-names>
</name>
<name>
<surname><![CDATA[Dailey]]></surname>
<given-names><![CDATA[RA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effects of domperidone and thyrotropin-releasing hormone on secretion of luteinizing hormone and prolactin during the luteal phase and following induction of luteal regression in sheep]]></article-title>
<source><![CDATA[Domest. Anim. Endocrinol]]></source>
<year>1987</year>
<volume>4</volume>
<page-range>95-102</page-range></nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Evans]]></surname>
<given-names><![CDATA[ACO]]></given-names>
</name>
<name>
<surname><![CDATA[Duffy]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Hynes]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Boland]]></surname>
<given-names><![CDATA[MP]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Waves of follicle development during the estrous cycle in sheep]]></article-title>
<source><![CDATA[Theriogenology]]></source>
<year>2000</year>
<volume>53</volume>
<page-range>699-715</page-range></nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Evans]]></surname>
<given-names><![CDATA[NP]]></given-names>
</name>
<name>
<surname><![CDATA[Richter]]></surname>
<given-names><![CDATA[TA]]></given-names>
</name>
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Robinson]]></surname>
<given-names><![CDATA[JE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neuroendocrine mechanisms underlying the effects of progesterone on the oestradiol-induced GnRH/LH surge]]></article-title>
<source><![CDATA[Reprod. Suppl]]></source>
<year>2002</year>
<volume>59</volume>
<page-range>57-66</page-range></nlm-citation>
</ref>
<ref id="B19">
<label>19</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gallegos-Sánchez]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Delaleu]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Estradiol acts locally within the retrochiasmatic area to inhibit pulsatile luteinizing-hormone release in the female sheep during anestrus]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1997</year>
<volume>56</volume>
<page-range>1544-1549</page-range></nlm-citation>
</ref>
<ref id="B20">
<label>20</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gallegos-Sánchez]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Control of pulsatile LH secretion during seasonal anoestrus in the ewe]]></article-title>
<source><![CDATA[Reprod. Nutr. Develop]]></source>
<year>1998</year>
<volume>38</volume>
<page-range>3-15</page-range></nlm-citation>
</ref>
<ref id="B21">
<label>21</label><nlm-citation citation-type="confpro">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gallegos-Sánchez]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Hernández]]></surname>
<given-names><![CDATA[PP]]></given-names>
</name>
<name>
<surname><![CDATA[Albarrán]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Neuroendocrinología del ciclo reproductivo de la oveja]]></article-title>
<source><![CDATA[]]></source>
<year>1999</year>
<conf-name><![CDATA[ curso internacional en fisiología de la reproducción en rumiantes]]></conf-name>
<conf-loc>Montecillo Texcoco</conf-loc>
<page-range>1-26</page-range></nlm-citation>
</ref>
<ref id="B22">
<label>22</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gayrard]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Oestradiol increases the extracellular levels of amine metabolites in the ewe hypothalamus during anoestrus: a microdialisis study]]></article-title>
<source><![CDATA[J. Endocrinol]]></source>
<year>1992</year>
<volume>135</volume>
<page-range>421-430</page-range></nlm-citation>
</ref>
<ref id="B23">
<label>23</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gayrard]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Tillet]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Estradiol increases tyrosine hydroxylase activity of the A15 nucleus dopaminergic neurons during long days in the ewe]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1994</year>
<volume>50</volume>
<page-range>1168-1177</page-range></nlm-citation>
</ref>
<ref id="B24">
<label>24</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
<name>
<surname><![CDATA[Meyer]]></surname>
<given-names><![CDATA[SL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effects of pentobarbital anesthesia on tonic luteinizing hormone secretion in the ewe: Evidence for active inhibition of luteinizing hormone in anestrus]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1984</year>
<volume>30</volume>
<page-range>374-381</page-range></nlm-citation>
</ref>
<ref id="B25">
<label>25</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
<name>
<surname><![CDATA[Gibson]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[MN]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neuroendocrine control of pulsatile GnRH secretion during the ovarian cycle: evidence from ewe]]></article-title>
<source><![CDATA[Reprod. Suppl]]></source>
<year>2002</year>
<volume>59</volume>
<page-range>41-56</page-range></nlm-citation>
</ref>
<ref id="B26">
<label>26</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Goubillon]]></surname>
<given-names><![CDATA[ML]]></given-names>
</name>
<name>
<surname><![CDATA[Delaleu]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Tillet]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Herbison]]></surname>
<given-names><![CDATA[AE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Localization of estrogen-receptive neurons projecting to the GnRH neuron-containing rostral preoptic area of the ewe]]></article-title>
<source><![CDATA[Neuroendocrinology]]></source>
<year>1999</year>
<volume>70</volume>
<page-range>228-236</page-range></nlm-citation>
</ref>
<ref id="B27">
<label>27</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hafez]]></surname>
<given-names><![CDATA[ESE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Studies on the breeding season and reproduction of the ewe]]></article-title>
<source><![CDATA[J. Agric. Sci]]></source>
<year>1952</year>
<volume>42</volume>
<page-range>189-265</page-range></nlm-citation>
</ref>
<ref id="B28">
<label>28</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Havern]]></surname>
<given-names><![CDATA[LR]]></given-names>
</name>
<name>
<surname><![CDATA[Whisnant]]></surname>
<given-names><![CDATA[SC]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[LR]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Hypothalamic sites of catecholamine inhibition of luteinizing hormone in the anestrous ewe]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1991</year>
<volume>44</volume>
<page-range>476-482</page-range></nlm-citation>
</ref>
<ref id="B29">
<label>29</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Havern]]></surname>
<given-names><![CDATA[LR]]></given-names>
</name>
<name>
<surname><![CDATA[Whisnant]]></surname>
<given-names><![CDATA[SC]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[LR]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Dopaminergic structures in the ovine hypothalamus mediating estradiol negative feedback in anestrous ewes]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1994</year>
<volume>134</volume>
<page-range>1905-1914</page-range></nlm-citation>
</ref>
<ref id="B30">
<label>30</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Herbison]]></surname>
<given-names><![CDATA[AE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neurochemical identity of neurons expressing oestrogen and androgen receptors in sheep hypothalamus]]></article-title>
<source><![CDATA[J. Reprod. Fert]]></source>
<year>1995</year>
<numero>^s49</numero>
<issue>^s49</issue>
<supplement>49</supplement>
<page-range>271-283</page-range></nlm-citation>
</ref>
<ref id="B31">
<label>31</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Jackson]]></surname>
<given-names><![CDATA[GL]]></given-names>
</name>
<name>
<surname><![CDATA[Kuehl]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Gamma-aminobutyric acid (GABA) regulation of GnRH secretion in sheep]]></article-title>
<source><![CDATA[Reprod. Suppl]]></source>
<year>2002</year>
<volume>59</volume>
<page-range>15-24</page-range></nlm-citation>
</ref>
<ref id="B32">
<label>32</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
<name>
<surname><![CDATA[Bittman]]></surname>
<given-names><![CDATA[LE]]></given-names>
</name>
<name>
<surname><![CDATA[Foster]]></surname>
<given-names><![CDATA[LD]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[LR]]></given-names>
</name>
<name>
<surname><![CDATA[Legan]]></surname>
<given-names><![CDATA[JS]]></given-names>
</name>
<name>
<surname><![CDATA[Robinson]]></surname>
<given-names><![CDATA[EJ]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neuroendocrine basis of seasonal reproduction]]></article-title>
<source><![CDATA[Rec. Progr. Hormone Res]]></source>
<year>1984</year>
<volume>40</volume>
<page-range>185-231</page-range></nlm-citation>
</ref>
<ref id="B33">
<label>33</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
<name>
<surname><![CDATA[Dahl]]></surname>
<given-names><![CDATA[GE]]></given-names>
</name>
<name>
<surname><![CDATA[Evans]]></surname>
<given-names><![CDATA[NP]]></given-names>
</name>
<name>
<surname><![CDATA[Manning]]></surname>
<given-names><![CDATA[JM]]></given-names>
</name>
<name>
<surname><![CDATA[Mayfield]]></surname>
<given-names><![CDATA[KP]]></given-names>
</name>
<name>
<surname><![CDATA[Moenter]]></surname>
<given-names><![CDATA[SM]]></given-names>
</name>
<name>
<surname><![CDATA[Foster]]></surname>
<given-names><![CDATA[DL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Seasonal changes in gonadotropin-releasing hormone secretion in the ewe: Alteration in response to the negative feedback action of estradiol]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1993</year>
<volume>49</volume>
<page-range>1377-1383</page-range></nlm-citation>
</ref>
<ref id="B34">
<label>34</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
<name>
<surname><![CDATA[Bowen]]></surname>
<given-names><![CDATA[JM]]></given-names>
</name>
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Evans]]></surname>
<given-names><![CDATA[NP]]></given-names>
</name>
<name>
<surname><![CDATA[Moenter]]></surname>
<given-names><![CDATA[SM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Gonadotropin-releasing hormone requirements for ovulation]]></article-title>
<source><![CDATA[Biol Reprod]]></source>
<year>1997</year>
<volume>56</volume>
<page-range>303-309</page-range></nlm-citation>
</ref>
<ref id="B35">
<label>35</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Kuiper]]></surname>
<given-names><![CDATA[GGJM]]></given-names>
</name>
<name>
<surname><![CDATA[Carlsson]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Grandien]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[Enmark]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Haggblad]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Nilsson]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Gustafsson]]></surname>
<given-names><![CDATA[JA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Comparison of the ligand binding specificity and transcript tissue distribution of estrogen receptors a and b]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1997</year>
<volume>138</volume>
<page-range>863-870</page-range></nlm-citation>
</ref>
<ref id="B36">
<label>36</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Kuljis]]></surname>
<given-names><![CDATA[RO]]></given-names>
</name>
<name>
<surname><![CDATA[Advis]]></surname>
<given-names><![CDATA[JP]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Immunocytochemical and physiological evidence of a synapse between dopamine and luteinizing hormone releasing hormone containing neurons in the ewe median eminence]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1989</year>
<volume>124</volume>
<page-range>1579-1581</page-range></nlm-citation>
</ref>
<ref id="B37">
<label>37</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Le Corre]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Serotonergic 5HT2 receptors mediate the inhibitory action of serotonin on luteinizing hormone secretion in ovariectomized, estradiol-treated ewes that are refractory to short days]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1993</year>
<volume>49</volume>
<page-range>140-147</page-range></nlm-citation>
</ref>
<ref id="B38">
<label>38</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Le Corre]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Control of photoperiodic inhibition of luteinizing hormone secretion by dopaminergic and serotonergic systems in ovariectomized Ile-de-France ewes supplemented with oestradiol]]></article-title>
<source><![CDATA[J. Reprod. Fert]]></source>
<year>1993</year>
<volume>97</volume>
<page-range>367-373</page-range></nlm-citation>
</ref>
<ref id="B39">
<label>39</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Legan]]></surname>
<given-names><![CDATA[JS]]></given-names>
</name>
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[JF]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neuroendocrine regulation of the estrous cycle and seasonal breeding in the ewe]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1979</year>
<volume>20</volume>
<page-range>74-85</page-range></nlm-citation>
</ref>
<ref id="B40">
<label>40</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[MN]]></given-names>
</name>
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Do gonadotropin-releasing hormone, tyrosine hydroxylase-, and b-endorphin-immunoreactive neurons contain estrogen receptors?: A double-label immunocytochemical study in the Suffolk ewe]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1993</year>
<volume>133</volume>
<page-range>887-895</page-range></nlm-citation>
</ref>
<ref id="B41">
<label>41</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[MN]]></given-names>
</name>
<name>
<surname><![CDATA[Ebling]]></surname>
<given-names><![CDATA[PJF]]></given-names>
</name>
<name>
<surname><![CDATA[Moenter]]></surname>
<given-names><![CDATA[MS]]></given-names>
</name>
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Distribution of estrogen receptor-immunoreactive cells in the sheep brain]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1993</year>
<volume>133</volume>
<page-range>876-886</page-range></nlm-citation>
</ref>
<ref id="B42">
<label>42</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[MN]]></given-names>
</name>
<name>
<surname><![CDATA[Durham]]></surname>
<given-names><![CDATA[DM]]></given-names>
</name>
<name>
<surname><![CDATA[Jansen]]></surname>
<given-names><![CDATA[HT]]></given-names>
</name>
<name>
<surname><![CDATA[Adrian]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Dopaminergic A14/A15 neurons are activated during estradiol negative feedback in anestrous, but not breeding season ewes]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1996</year>
<volume>137</volume>
<page-range>4443-4450</page-range></nlm-citation>
</ref>
<ref id="B43">
<label>43</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[MN]]></given-names>
</name>
<name>
<surname><![CDATA[Coolen]]></surname>
<given-names><![CDATA[LM]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
<name>
<surname><![CDATA[Viguié]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Billings]]></surname>
<given-names><![CDATA[HJ]]></given-names>
</name>
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Seasonal plasticity in the brain: the use of large animal models for neuroanatomical research]]></article-title>
<source><![CDATA[Reprod. Suppl]]></source>
<year>2002</year>
<volume>59</volume>
<page-range>149-165</page-range></nlm-citation>
</ref>
<ref id="B44">
<label>44</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lincoln]]></surname>
<given-names><![CDATA[GA]]></given-names>
</name>
<name>
<surname><![CDATA[Short]]></surname>
<given-names><![CDATA[RV]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Seasonal breeding: Nature’s contraceptive]]></article-title>
<source><![CDATA[Rec. Prog. Hormone Res]]></source>
<year>1980</year>
<volume>36</volume>
<page-range>1-52</page-range></nlm-citation>
</ref>
<ref id="B45">
<label>45</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Viguié]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Pelletier]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Seasonal breeding in sheep: Mechanism of action of melatonin]]></article-title>
<source><![CDATA[Anim. Reprod. Sci]]></source>
<year>1996</year>
<volume>42</volume>
<page-range>109-117</page-range></nlm-citation>
</ref>
<ref id="B46">
<label>46</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Melatonin and the seasonal control of reproduction]]></article-title>
<source><![CDATA[Reprod. Nutr. Develop]]></source>
<year>1999</year>
<volume>39</volume>
<page-range>355-366</page-range></nlm-citation>
</ref>
<ref id="B47">
<label>47</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Tricoire]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Mailliet]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[Daveau]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Migaud]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Pelletier]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Melatonin and seasonal reproduction: understanding the neuroendocrine mechanisms using the sheep as a model]]></article-title>
<source><![CDATA[Reprod. Suppl]]></source>
<year>2002</year>
<volume>59</volume>
<page-range>167-179</page-range></nlm-citation>
</ref>
<ref id="B48">
<label>48</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Martin]]></surname>
<given-names><![CDATA[GB]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Hypothalamic multiunit activity and LH secretion in conscious sheep]]></article-title>
<source><![CDATA[Exp. Brain Res]]></source>
<year>1987</year>
<volume>67</volume>
<page-range>469-478</page-range></nlm-citation>
</ref>
<ref id="B49">
<label>49</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[McMillen]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Houghton]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Young]]></surname>
<given-names><![CDATA[IR]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Melatonin and the development of circadian and seasonal rhythmicity]]></article-title>
<source><![CDATA[J. Reprod. Fert]]></source>
<year>1995</year>
<numero>^s49</numero>
<issue>^s49</issue>
<supplement>49</supplement>
<page-range>137-146</page-range></nlm-citation>
</ref>
<ref id="B50">
<label>50</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[McNatty]]></surname>
<given-names><![CDATA[KP]]></given-names>
</name>
<name>
<surname><![CDATA[Hudson]]></surname>
<given-names><![CDATA[NL]]></given-names>
</name>
<name>
<surname><![CDATA[Henderson]]></surname>
<given-names><![CDATA[KM]]></given-names>
</name>
<name>
<surname><![CDATA[Lun]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Heath]]></surname>
<given-names><![CDATA[DA]]></given-names>
</name>
<name>
<surname><![CDATA[Gibb]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Ball]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[McDiarmid]]></surname>
<given-names><![CDATA[JM]]></given-names>
</name>
<name>
<surname><![CDATA[Thurley]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Changes in gonadotropin secretion and ovarian antral follicular activity in seasonally breeding sheep throughout the year]]></article-title>
<source><![CDATA[J. Reprod. Fert]]></source>
<year>1984</year>
<volume>70</volume>
<page-range>309-321</page-range></nlm-citation>
</ref>
<ref id="B51">
<label>51</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Meyer]]></surname>
<given-names><![CDATA[SL]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neurotransmitters involved in mediating the steroid-dependent suppression of pulsatile luteinizing hormone secretion in anoestrus ewes: effects of receptors antagonists]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1985</year>
<volume>116</volume>
<page-range>2054-2061</page-range></nlm-citation>
</ref>
<ref id="B52">
<label>52</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Meyer]]></surname>
<given-names><![CDATA[SL]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Separate neural systems mediate the steroid-dependent and steroid-independent suppression of tonic luteinizing hormone secretion in the anoestrus ewe]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1986</year>
<volume>35</volume>
<page-range>562-571</page-range></nlm-citation>
</ref>
<ref id="B53">
<label>53</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Moenter]]></surname>
<given-names><![CDATA[SM]]></given-names>
</name>
<name>
<surname><![CDATA[Karsch]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[MN]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Fos expression during the estradiol-induced gonadotropin-releasing hormone (GnRH) surge of the ewe: Induction in GnRH and other neurons]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1993</year>
<volume>133</volume>
<page-range>896-903</page-range></nlm-citation>
</ref>
<ref id="B54">
<label>54</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Noel]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Bister]]></surname>
<given-names><![CDATA[JL]]></given-names>
</name>
<name>
<surname><![CDATA[Paquay]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ovarian follicular dynamics in Suffolk ewes at different periods of the year]]></article-title>
<source><![CDATA[J, Reprod. Fert]]></source>
<year>1993</year>
<volume>99</volume>
<page-range>695-700</page-range></nlm-citation>
</ref>
<ref id="B55">
<label>55</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Padilla]]></surname>
<given-names><![CDATA[RFJ]]></given-names>
</name>
<name>
<surname><![CDATA[Mapes]]></surname>
<given-names><![CDATA[SGE]]></given-names>
</name>
<name>
<surname><![CDATA[Jiménez]]></surname>
<given-names><![CDATA[KF]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Perfiles hormonales durante el ciclo estral de la oveja]]></article-title>
<source><![CDATA[Técnica Pecuaria en México]]></source>
<year>1988</year>
<volume>28</volume>
<page-range>96-108</page-range></nlm-citation>
</ref>
<ref id="B56">
<label>56</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Pfaff]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Schwanzel-Fukuda]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Parhar]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Lauber]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[McCarty]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Kow]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[GnRH neurons and other cellular and molecular mechanisms for simple mammalian reproductive behaviors]]></article-title>
<source><![CDATA[Rec. Progr. Hormone Res]]></source>
<year>1994</year>
<volume>49</volume>
<page-range>1-25</page-range></nlm-citation>
</ref>
<ref id="B57">
<label>57</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ravindra]]></surname>
<given-names><![CDATA[JP]]></given-names>
</name>
<name>
<surname><![CDATA[Rawlings]]></surname>
<given-names><![CDATA[NC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ovarian follicular dynamics in ewes during the transition from anoestrus to the breeding season]]></article-title>
<source><![CDATA[J. Reprod. Fert]]></source>
<year>1997</year>
<volume>110</volume>
<page-range>279-289</page-range></nlm-citation>
</ref>
<ref id="B58">
<label>58</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Robinson]]></surname>
<given-names><![CDATA[JE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Gamma amino-butyric acid and the control of GnRH secretion in sheep]]></article-title>
<source><![CDATA[J. Reprod. Fert]]></source>
<year>1995</year>
<numero>^s49</numero>
<issue>^s49</issue>
<supplement>49</supplement>
<page-range>221-230</page-range></nlm-citation>
</ref>
<ref id="B59">
<label>59</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Robinson]]></surname>
<given-names><![CDATA[JE]]></given-names>
</name>
<name>
<surname><![CDATA[Kendrick]]></surname>
<given-names><![CDATA[KM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Inhibition of luteinizing hormone secretion in the ewe by progesterone: associated changes in the release of gamma-aminobutyric acid and noradrenaline in the preoptic area as measured by intracranial microdialysis]]></article-title>
<source><![CDATA[J. Neuroendocrinol]]></source>
<year>1992</year>
<volume>4</volume>
<page-range>231-236</page-range></nlm-citation>
</ref>
<ref id="B60">
<label>60</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Herbison]]></surname>
<given-names><![CDATA[EA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effects of photoperiod on estrogen receptor, tyrosine hydroxilase, neuropeptide Y, and b-endorphin immunoreactivity in the ewe hyphotahlamus]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1997</year>
<volume>138</volume>
<page-range>2585-2595</page-range></nlm-citation>
</ref>
<ref id="B61">
<label>61</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Delaleu]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Luteinizing hormone (LH)-releasing hormone in third ventricular cerebrospinal fluid of the ewe: Correlation with LH pulses and the LH surge]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1995</year>
<volume>136</volume>
<page-range>3230-3237</page-range></nlm-citation>
</ref>
<ref id="B62">
<label>62</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Skinner]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
<name>
<surname><![CDATA[Caraty]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Allingham]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Unmasking the progesterone receptor in the preoptic area and hypothalamus of the ewe: no colocalization with gonadotropin-releasing neurons]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>2001</year>
<volume>142</volume>
<page-range>573-579</page-range></nlm-citation>
</ref>
<ref id="B63">
<label>63</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Souza]]></surname>
<given-names><![CDATA[JHC]]></given-names>
</name>
<name>
<surname><![CDATA[Campbell]]></surname>
<given-names><![CDATA[KB]]></given-names>
</name>
<name>
<surname><![CDATA[Baird]]></surname>
<given-names><![CDATA[TD]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Follicular dynamics and ovarian steroid secretion in sheep during the follicular and early luteal phases of the estrous cycle]]></article-title>
<source><![CDATA[Biol. Reprod]]></source>
<year>1997</year>
<volume>56</volume>
<page-range>483-488</page-range></nlm-citation>
</ref>
<ref id="B64">
<label>64</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stefanovic]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Adrian]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Jansen]]></surname>
<given-names><![CDATA[HT]]></given-names>
</name>
<name>
<surname><![CDATA[Lehman]]></surname>
<given-names><![CDATA[MN]]></given-names>
</name>
<name>
<surname><![CDATA[Goodman]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The ability of estradiol to induce fos expression in a subset of estrogen receptor-a-containing neurons in the preoptic area of the ewe depends on reproductive status]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>2000</year>
<volume>141</volume>
<page-range>190-196</page-range></nlm-citation>
</ref>
<ref id="B65">
<label>65</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Martin]]></surname>
<given-names><![CDATA[GB]]></given-names>
</name>
<name>
<surname><![CDATA[Tillet]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Caldani]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Quentin]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Jamain]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Ravault]]></surname>
<given-names><![CDATA[JP]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Role of Hypothalamic catecholamines in the regulation of luteinizing hormone and prolactin secretion in the ewe during seasonal anestrus]]></article-title>
<source><![CDATA[Neuroendocrinology]]></source>
<year>1989</year>
<volume>49</volume>
<page-range>80-87</page-range></nlm-citation>
</ref>
<ref id="B66">
<label>66</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Gayrard]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Le Corre]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Viguié]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Martin]]></surname>
<given-names><![CDATA[GB]]></given-names>
</name>
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Dopaminergic control of LH secretion by the A15 nucleus in anoestrus ewes]]></article-title>
<source><![CDATA[J. Reprod. Fert]]></source>
<year>1995</year>
<numero>^s49</numero>
<issue>^s49</issue>
<supplement>49</supplement>
<page-range>285-296</page-range></nlm-citation>
</ref>
<ref id="B67">
<label>67</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Chemineau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Hernández]]></surname>
<given-names><![CDATA[X]]></given-names>
</name>
<name>
<surname><![CDATA[Migaud]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Neuroendocrine interactions and seasonality]]></article-title>
<source><![CDATA[Domest. Anim. Endocrinol]]></source>
<year>2002</year>
<volume>23</volume>
<page-range>87-100</page-range></nlm-citation>
</ref>
<ref id="B68">
<label>68</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tillet]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Distribution of neurotransmitters in the sheep brain]]></article-title>
<source><![CDATA[]]></source>
<year>1995</year>
<volume>49</volume>
<page-range>199-220</page-range></nlm-citation>
</ref>
<ref id="B69">
<label>69</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Viguié]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Thibault]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Tillet]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Photoperiodic modulation of monoamines and amino-acids involved in the control of prolactin and LH secretion in the ewe: evidence for a regulation of tyrosine hydroxylase activity]]></article-title>
<source><![CDATA[J. Neuroendocrinol]]></source>
<year>1996</year>
<volume>8</volume>
<page-range>465-474</page-range></nlm-citation>
</ref>
<ref id="B70">
<label>70</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Malpaux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Tillet]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Thiéry]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Thibault]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Viguié]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Characterization of the short day-induced decrease in median eminence tyrosine hydroxylase activity in the ewe: temporal relationship to the changes in luteinizing hormone and prolactin secretion and short day-like effect of melatonin]]></article-title>
<source><![CDATA[Endocrinology]]></source>
<year>1997</year>
<volume>138</volume>
<page-range>499-506</page-range></nlm-citation>
</ref>
<ref id="B71">
<label>71</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Williams]]></surname>
<given-names><![CDATA[LM]]></given-names>
</name>
<name>
<surname><![CDATA[Helliwell]]></surname>
<given-names><![CDATA[RJA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Melatonin and seasonality in the sheep]]></article-title>
<source><![CDATA[Anim. Reprod. Sci]]></source>
<year>1993</year>
<volume>33</volume>
<page-range>159-182</page-range></nlm-citation>
</ref>
<ref id="B72">
<label>72</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Yeates]]></surname>
<given-names><![CDATA[NTM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The breeding season of the sheep with particular reference to its modification by artificial means using light]]></article-title>
<source><![CDATA[J. Agric. Sci]]></source>
<year>1949</year>
<volume>39</volume>
<page-range>1-43</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>