<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0798-0264</journal-id>
<journal-title><![CDATA[Archivos Venezolanos de Farmacología y Terapéutica]]></journal-title>
<abbrev-journal-title><![CDATA[AVFT]]></abbrev-journal-title>
<issn>0798-0264</issn>
<publisher>
<publisher-name><![CDATA[Sociedad Venezolana de Farmacológia  y Farmacológia Clínica y Terapéutica. Escuela de MedicinaJosé Maria Vargas. Cátedra de Farmacológia, piso 3, esquina san jacinto, San José Caracas]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0798-02642007000200002</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Biología molecular de los transportadores de glucosa: clasificación, estructura y distribución]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Bermúdez]]></surname>
<given-names><![CDATA[Valmore]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Bermúdez]]></surname>
<given-names><![CDATA[Fernando]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Arraiz]]></surname>
<given-names><![CDATA[Nailet]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Leal]]></surname>
<given-names><![CDATA[Elliuz]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Linares]]></surname>
<given-names><![CDATA[Sergia]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Mengual]]></surname>
<given-names><![CDATA[Edgardo]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Valdelamar]]></surname>
<given-names><![CDATA[Lisney]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Rodríguez]]></surname>
<given-names><![CDATA[Moisés]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Seyfi]]></surname>
<given-names><![CDATA[Hamid]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Amell]]></surname>
<given-names><![CDATA[Anilsa]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Carrillo]]></surname>
<given-names><![CDATA[Marisol]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Silva]]></surname>
<given-names><![CDATA[Carlos]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Acosta]]></surname>
<given-names><![CDATA[Alejandro]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Añez]]></surname>
<given-names><![CDATA[Johnny]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Andara]]></surname>
<given-names><![CDATA[Carla]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Angulo]]></surname>
<given-names><![CDATA[Verónica]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Martins]]></surname>
<given-names><![CDATA[Gabriela]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad del Zulia Facultad de Medicina Centro de Investigaciones Endocrino-Metabólicas Dr. Félix Gómez]]></institution>
<addr-line><![CDATA[Maracaibo ]]></addr-line>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>00</month>
<year>2007</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>00</month>
<year>2007</year>
</pub-date>
<volume>26</volume>
<numero>2</numero>
<fpage>76</fpage>
<lpage>86</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0798-02642007000200002&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0798-02642007000200002&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0798-02642007000200002&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[Hexosas como la glucosa, galactosa y fructosa cumplen funciones importantes en las células eucarióticas. Estas moléculas son incapaces de difundir directamente a través de las membranas celulares por lo que requieren proteínas transportadoras especializadas para entrar al interior celular. Dichas biomoléculas pertenecen a un grupo de transportadores constituida por 2 familias de proteínas: la familia de los Glut´s (del inglés Glucose Transporters) y la familia de los co-transportadores de sodio y glucosa. Según la información obtenida de la secuencia de aminoácidos por medio de librerías de cADN todos poseen una estructura básica similar: 12 (Gluts) o 14 (SGLT) dominios trasmembrana. Igualmente todos parecen estar glicosilados en alguna de sus asas extracelulares. En los últimos siete años ha habido un explosivo incremento en la información sobre estos transportadores, de hecho, hasta hace diez años solo se conocían 6 transportadores pero esta familia ha crecido rápidamente hasta llegar a 14 miembros para los Gluts y 6 miembros para los SGLT´s. El impacto de estos descubrimientos se hace notar cuando se analizan los procesos en los que se involucran estas proteínas: Control de la glicemia basal y post-prandial; mecanismos de absorción de la glucosa y fructosa en el intestino delgado; absorción de fructosa en los espermatozoides; reabsorción de glucosa a nivel tubular renal y yeyuno; maduración de la expresión de Glut´s en la mama en lactación; incorporación de glucosa al músculo durante el ejercicio; mecanismo sensor en la secreción de insulina y respuestas adaptativa del metabolismo energético durante estados de estrés, etc.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[Hexoses like glucose, galactose and fructose serve as basic fuel molecules for eucaryotic cells. These molecules are unable to diffuse across cellular membranes, and require transporter proteins for entry into and exit from cells. Three distinct groups of hexose transporters have been identified and classified based on their dependence on cellular energy and its chemistry structure. Each of the transporters has different affinities for glucose and the other hexoses, which largely dictates their function. The hexose transporters are large integral membrane proteins. Based on the deduced amino acid sequences of their cloned cDNAs, they have similar structures, consisting of 12 or 14 membrane-spanning regions with cytoplasmic C-terminal and N-terminal tails. Also, they all appear to be glycosylated on one of the extracellular loops. Transport of sugars across membranes appears to result from a series of conformational changes which "flips" the transporter between alternate states with the substrate binding site either facing the extracellular or cytoplasmic side of the membrane. Transport in either direction is thus possible, depending on relative substrate concentrations on either side of the membrane. The original protein, GLUT1, was identified in molecular term’s 12 years ago. In the subsequent 15 years, a family of related transporters was identified (GLUTs 1-14). The impact of these discoveries is better realized when we list a sample of the processes that utilize different members of the GLUT family: control of glycemia; insulin dependent glucose utilization; transport pathways in brain neurons and glia; mechanisms of glucose and fructose uptake in the intestinal track; reabsorption of glucose in kidney tubules and jejunum; maturation of transporters during lactation and weaning; sensing of glucose levels by the pancreas and the liver; control of glucose uptake in high fat feeding; glucose uptake in response to exercise, adaptive response of energy metabolism to cellular stress.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Glut]]></kwd>
<kwd lng="es"><![CDATA[Glucosa]]></kwd>
<kwd lng="es"><![CDATA[transportador]]></kwd>
<kwd lng="es"><![CDATA[difusión facilitada]]></kwd>
<kwd lng="es"><![CDATA[SGLT-1]]></kwd>
<kwd lng="es"><![CDATA[SGLT-2]]></kwd>
<kwd lng="es"><![CDATA[Co-transportador]]></kwd>
<kwd lng="en"><![CDATA[Glut]]></kwd>
<kwd lng="en"><![CDATA[Glucose]]></kwd>
<kwd lng="en"><![CDATA[transporter]]></kwd>
<kwd lng="en"><![CDATA[facilitative diffusion]]></kwd>
<kwd lng="en"><![CDATA[SGLT-1]]></kwd>
<kwd lng="en"><![CDATA[SGLT-2]]></kwd>
<kwd lng="en"><![CDATA[Co-transporter]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[ <P ALIGN="center"><b><font face="Verdana" size="3">Biolog&iacute;a molecular de los transportadores de glucosa: clasificaci&oacute;n, estructura y distribuci&oacute;n</font></b></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Valmore Berm&uacute;dez, Fernando Berm&uacute;dez, Nailet Arraiz, Elliuz Leal, Sergia Linares, Edgardo Mengual, Lisney Valdelamar, Mois&eacute;s Rodr&iacute;guez, Hamid Seyfi, Anilsa Amell, Marisol Carrillo, Carlos Silva, Alejandro Acosta, Johnny A&ntilde;ez, Carla Andara, Ver&oacute;nica Angulo, Gabriela Martins.</font></P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Universidad del Zulia. Facultad de Medicina.  Centro de Investigaciones</font> <font face="Verdana" size="2">Endocrino–Metab&oacute;licas &quot;Dr. F&eacute;lix G&oacute;mez&quot;. Maracaibo, Estado Zulia.</font> <font face="Verdana" size="2">e-mail: fago@medscape.com</font> </P>     <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Recibido: 28/06/2007 Aceptado: 03/08/2007</font></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2><b>Resumen</b> </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Hexosas como la glucosa, galactosa y fructosa cumplen funciones importantes en las c&eacute;lulas eucari&oacute;ticas. Estas mol&eacute;culas son incapaces de difundir directamente a trav&eacute;s de las membranas celulares por lo que requieren prote&iacute;nas transportadoras especializadas para entrar al interior celular. Dichas biomol&eacute;culas pertenecen a un grupo de transportadores constituida por 2 familias de prote&iacute;nas: la familia de los Glut´s (del ingl&eacute;s Glucose Transporters) y la familia de los co-transportadores de sodio y glucosa. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Seg&uacute;n la informaci&oacute;n obtenida de la secuencia de amino&aacute;cidos por medio de librer&iacute;as de cADN todos poseen una estructura b&aacute;sica similar: 12 (Gluts) o 14 (SGLT) dominios trasmembrana. Igualmente todos parecen estar glicosilados en alguna de sus asas extracelulares. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>En los &uacute;ltimos siete a&ntilde;os ha habido un explosivo incremento en la informaci&oacute;n sobre estos transportadores, de hecho, hasta hace diez a&ntilde;os solo se conoc&iacute;an 6 transportadores pero esta familia ha crecido r&aacute;pidamente hasta llegar a 14 miembros para los Gluts y 6 miembros para los SGLT´s. El impacto de estos descubrimientos se hace notar cuando se analizan los procesos en los que se involucran estas prote&iacute;nas: Control de la glicemia basal y post-prandial; mecanismos de absorci&oacute;n de la glucosa y fructosa en el intestino delgado; absorci&oacute;n de fructosa en los espermatozoides; reabsorci&oacute;n de glucosa a nivel tubular renal y yeyuno; maduraci&oacute;n de la expresi&oacute;n de Glut´s en la mama en lactaci&oacute;n; incorporaci&oacute;n de glucosa al m&uacute;sculo durante el ejercicio; mecanismo sensor en la secreci&oacute;n de insulina y respuestas adaptativa del metabolismo energ&eacute;tico durante estados de estr&eacute;s, etc. </FONT> </P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Palabras clave:</font></B> <font face="Verdana" size="2"> Glut, Glucosa, transportador, difusi&oacute;n facilitada, SGLT-1, SGLT-2, Co-transportador.</font></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2><b>Abstract</b> </FONT></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Hexoses like glucose, galactose and fructose serve as basic fuel molecules for eucaryotic cells. These molecules are unable to diffuse across cellular membranes, and require transporter proteins for entry into and exit from cells. Three distinct groups of hexose transporters have been identified and classified based on their dependence on cellular energy and its chemistry structure. Each of the transporters has different affinities for glucose and the other hexoses, which largely dictates their function. The hexose transporters are large integral membrane proteins. Based on the deduced amino acid sequences of their cloned cDNAs, they have similar structures, consisting of 12 or 14 membrane-spanning regions with cytoplasmic C-terminal and N-terminal tails. Also, they all appear to be glycosylated on one of the extracellular loops. Transport of sugars across membranes appears to result from a series of conformational changes which &quot;flips&quot; the transporter between alternate states with the substrate binding site either facing the extracellular or cytoplasmic side of the membrane. Transport in either direction is thus possible, depending on relative substrate concentrations on either side of the membrane. The original protein, GLUT1, was identified in molecular term’s 12 years ago. In the subsequent 15 years, a family of related transporters was identified (GLUTs 1-14). The impact of these discoveries is better realized when we list a sample of the processes that utilize different members of the GLUT family: control of glycemia; insulin dependent glucose utilization; transport pathways in brain neurons and glia; mechanisms of glucose and fructose uptake in the intestinal track; reabsorption of glucose in kidney tubules and jejunum; maturation of transporters during lactation and weaning; sensing of glucose levels by the pancreas and the liver; control of glucose uptake in high fat feeding; glucose uptake in response to exercise, adaptive response of energy metabolism to cellular stress. </FONT> </P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Key words:</font></B> <font face="Verdana" size="2"> Glut, Glucose, transporter, facilitative diffusion, SGLT-1, SGLT-2, Co-transporter.</font></P>     <P ALIGN="justify"><font face="Verdana" size="2"><b>Introducci&oacute;n</b></font></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Los carbohidratos son sustancias qu&iacute;micas org&aacute;nicas de amplia distribuci&oacute;n en la naturaleza. En las plantas son producidos por el proceso de la fotos&iacute;ntesis e incluyen a la celulosa como ejemplo de un carbohidrato estructural y al almid&oacute;n como carbohidrato de almac&eacute;n. En las c&eacute;lulas animales los carbohidratos - en forma de glucosa o en su pol&iacute;mero de almac&eacute;n, el gluc&oacute;geno – sirven como fuente importante de energ&iacute;a para las actividades vitales de la mayor&iacute;a de las especies vivientes que habitan el planeta. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Para poder llevar a cabo importantes funciones como la oxidaci&oacute;n y el almacenaje, la glucosa debe entrar al interior de la c&eacute;lula para incorporarse a la v&iacute;a metab&oacute;lica que predomine seg&uacute;n las condiciones hormonales y energ&eacute;ticas del momento<SUP>1</SUP>. Una c&eacute;lula puede sobrevivir si evita que su medio interno se mezcle y establezca el equilibrio con el medio ambiente. Este semi-aislamiento es proporcionado por la membrana celular, de naturaleza lip&iacute;dica y relativamente impermeable a mol&eacute;culas polares como la glucosa. Es por esta caracter&iacute;stica que mol&eacute;culas como los carbohidratos requieren alg&uacute;n elemento transportador que les permita cruzar el escollo que significa la membrana; as&iacute;, la naturaleza, a trav&eacute;s de millones de a&ntilde;os de evoluci&oacute;n biol&oacute;gica desarroll&oacute; mol&eacute;culas proteicas que cruzan completamente la membrana y que son capaces de formar &quot;poros&quot; que comunican el exterior con el interior celular, permitiendo el flujo de mol&eacute;culas como los amino&aacute;cidos, vitaminas y carbohidratos en un sentido u otro. En este orden de ideas, los transportadores para glucosa trabajan de manera coordinada con factores hormonales, receptores, y segundos mensajeros para mantener el flujo de este metabolito en condiciones normales. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Los transportadores de glucosa presentes en las c&eacute;lulas de los organismos superiores se clasifican en dos grandes familias, la Familia de los Gluts y la familia de los Co-transportadores de Sodio y Glucosa<SUP>2</SUP>. La familia de los Gluts (aunque quiz&aacute;s sea mejor referirlos como superfamilia) es muy extensa ya que hasta la fecha se conocen m&aacute;s de 140 miembros distribuidos entre diferentes especies de animales, plantas, bacterias y hongos, por lo que ser&iacute;a un enfoque simplista circunscribir estas prote&iacute;nas solo a organismos superiores como nosotros. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Todos los transportadores de membrana que median la transferencia de solutos desde el espacio extracelular hacia el citosol (o viceversa) comparten varias caracter&iacute;sticas: </FONT></P> <I>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Especificidad: </font> </I><font face="Verdana" size="2">en general cada transportador es espec&iacute;fico para una sola sustancia o un grupo muy emparentado de &eacute;stas.</font></P> <I>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Saturaci&oacute;n: </font> </I><font face="Verdana" size="2">La capacidad de transporte puede alcanzar un m&aacute;ximo cuando todos los sitios de uni&oacute;n para el soluto a transportar est&aacute;n ocupados.</font> </P> <I>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Competici&oacute;n:</font></I> <font face="Verdana" size="2"> ocurre cuando m&aacute;s de una sustancia es capaz de ser transportada por el sistema transportador. En este caso, tal como ocurre en la inhibici&oacute;n competitiva de enzimas, el soluto que se encuentre a mayor concentraci&oacute;n ser&aacute; preferentemente transportado<SUP>2,3,4</SUP>.</font></P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">Familia de los co-transportadores de Na+/Glucosa (SGLT)</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>En el epitelio intestinal y epitelio de los t&uacute;bulos contorneados proximal y distal existen sistemas de co-transporte de glucosa acoplados a Na<SUP>+</SUP> que permiten la absorci&oacute;n r&aacute;pida de esta mol&eacute;cula  desde el &iacute;leo hacia el sistema portal y adem&aacute;s de la reabsorci&oacute;n de la glucosa filtrada en el glom&eacute;rulo nuevamente al torrente circulatorio. Este sistema se denomina SGLT (<B>S</B>odium/<B>Gl</B>ucose <B>T</B>ransporters), del cual se conocen 6 isoformas (SGTL1-6) que aprovechan el transporte del Na<SUP>+</SUP> a favor de su gradiente de concentraci&oacute;n para generar una corriente electroqu&iacute;mica que produce los cambios conformacionales necesarios para la traslocaci&oacute;n de la glucosa a trav&eacute;s de la membrana plasm&aacute;tica<SUP>5,6,7,8</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Al comparar las estructuras primarias de estos transportadores se encuentra que el SGLT-2, SGLT-3 y SGLT-4 tienen un 70, 59 y 54 % de homolog&iacute;a con el SGLT-1 respectivamente. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">SGLT-1 (SLC5A1)</font></P> </B>    <P ALIGN="justify"><FONT face="Verdana" SIZE=2>El gen del SGLT-1 (<a href="#fig1">Fig. 1</a>) se denomina SLC5-A1 y fue aislado a partir de librer&iacute;as de cDNA de intestino delgado de conejo. Con una extensi&oacute;n de 80 Kb y 15 exones se ubica en el cromosoma 22 en la regi&oacute;n q13.1. Su  trascripto es una prote&iacute;na de 664 amino&aacute;cidos y 73KDa con una estructura secundaria formada por 14 &#945;-h&eacute;lices cuyos extremos amino y carboxilo terminales se encuentran en el espacio extracelular.</FONT></P>     <P ALIGN="center"><a name="fig1"><img border="0" src="/img/fbpe/Avft/v26n2/a02f1.gif" width="482" height="293"></a></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2"><b>Figura 1.</b>  El principal transportador de monosac&aacute;ridos (glucosa, galactosa y manosa) en el intestino delgado es el SGLT-1 o  Sodium-Glucose Transporter – 1. Esta es un prote&iacute;na que co-transporta 2 iones Na+ y una mol&eacute;cula de  glucosa a raz&oacute;n de unas 1.000 mol&eacute;culas/segundo. El SGLT-1 se organiza en forma de 14  alfa-h&eacute;lices que cruzan la membrana plasm&aacute;tica la misma cantidad de veces.</font></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>En el ser humano este transportador se expresa primariamente a nivel del &iacute;leon, el sitio fundamental de absorci&oacute;n de monosac&aacute;ridos como la glucosa, galactosa, manosa y fructosa. Este transportador es espec&iacute;fico para la absorci&oacute;n de glucosa y galactosa en las c&eacute;lulas epiteliales del ribete en cepillo<SUP>6</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Las c&eacute;lulas absortivas tienen una naturaleza polar, esto es, que la expresi&oacute;n de las prote&iacute;nas transportadoras de membrana es diferente en el polo apical (luminal) que en el polo basolateral. Este hecho permite la transferencia eficiente de los az&uacute;cares simples (monosac&aacute;ridos) desde la luz intestinal hacia los capilares. Igualmente, existen diferencias importantes entre las c&eacute;lulas que se ubican hacia las criptas, ya que en la parte baja de la microvellosidad (c&eacute;lulas muy j&oacute;venes) y aquellas que se ubican hacia el 1/3 superior de la misma (c&eacute;lulas maduras). Las c&eacute;lulas epiteliales intestinales tienen una vida corta, origin&aacute;ndose de c&eacute;lulas madre en las criptas y madurando en la medida que migran hacia el tope de la microvellosidad, desde donde se exfolian de 2 – 5 d&iacute;as despu&eacute;s de su nacimiento. As&iacute;, los niveles mas altos de prote&iacute;nas transportadoras de membrana se encuentran en las c&eacute;lulas epiteliales maduras del 1/3 superior de la microvellosidad<SUP>5</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>En este momento se conoce bastante bien el proceso de absorci&oacute;n de la glucosa, galactosa y fructosa en el borde en cepillo intestinal. De hecho, gracias a la aplicaci&oacute;n de t&eacute;cnicas de biolog&iacute;a molecular y biof&iacute;sica, as&iacute; como por modelaje por computadoras se ha obtenido informaci&oacute;n valiosa que apoya la tesis de que la absorci&oacute;n de monosac&aacute;ridos ocurre en 4 fases: </FONT></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>1. Uni&oacute;n de dos iones Na<SUP>+</SUP> a la cara externa del transportador, lo que produce un cambio conformacional que permite el acoplamiento de 1 mol&eacute;cula de glucosa o galactosa. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>2. Transferencia del Na<SUP>+</SUP> y del monosac&aacute;rido hacia la cara citoplasm&aacute;tica del transportador gracias a un segundo cambio conformacional ocasionado por la glucosa y que involucra la rotaci&oacute;n y el re-arreglo de la estructura &#945;-helicoidal del SGLT-1. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>3. Una vez en la cara interna del transportador, la glucosa se disocia del mismo y pasa al citosol para luego expulsar los 2 iones Na<SUP>+</SUP>, restituyendo al transportador a su forma libre de ligando. La baja afinidad del sitio de uni&oacute;n intracelular por la glucosa y el sodio, junto con la baja concentraci&oacute;n de intracelular de Na<SUP>+</SUP> en comparaci&oacute;n con la extracelular y luminal (5-10 meq vs. 140-145 meq) promueve esta disociaci&oacute;n, permitiendo que el proceso de transporte ocurra 1.000 veces por segundo a 37 ºC. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>4. Finalmente, ocurre un cambio de conformaci&oacute;n que permite la fijaci&oacute;n de otra mol&eacute;cula de glucosa y 2 Na<SUP>+</SUP> en el lado extracelular<SUP>8</SUP>  (<a href="#fig2">Fig. 2</a>). </FONT></P>     <P ALIGN="center"><a name="fig2"><img border="0" src="/img/fbpe/Avft/v26n2/a02f2.gif" width="371" height="308"></a></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2"><b>Figura 2.</b>  Mecanismo postulado para el transporte de Na+ y Glucosa por el SGLT-1. Este proceso aparentemente ocurre en 4 fases muy bien definidas: a) uni&oacute;n de dos iones Na+ al co-transportador (1 y 2) b) Esto produce  cambios en la conformaci&oacute;n del SGLT-1 que permite la uni&oacute;n de una mol&eacute;cula de glucosa (3). c) Luego ocurre  una re-organizaci&oacute;n estructural que lleva el Na+ y la Glucosa hacia la cara citos&oacute;lica del transportador (4) para  finalmente d) liberar la mol&eacute;cula de glucosa y luego los iones Na+ hacia el citosol.</font> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El gradiente electroqu&iacute;mico de Na<SUP>+</SUP> entre la luz intestinal y la c&eacute;lula epitelial se mantienen gracias a la bomba de Na<SUP>+</SUP>/K<SUP>+</SUP> situada en la membrana basolateral, con lo que, 3 iones Na<SUP>+</SUP> se intercambian con 2 K<SUP>+</SUP>, lo que mantiene un circuito de circulaci&oacute;n de sodio que impulsa la absorci&oacute;n eficiente de la glucosa. </FONT> </P>     <P ALIGN="justify"><FONT face="Verdana" SIZE=2>Otro aspecto importante de la absorci&oacute;n de Na<SUP>+</SUP> y glucosa es el co-transporte de agua desde la luz intestinal al interior de la c&eacute;lula epitelial y de all&iacute; hacia el compartimiento intravascular (<a href="#fig3">Fig. 3</a>). De hecho, el incremento en la concentraci&oacute;n de estos dos solutos genera suficiente fuerza osm&oacute;tica para impulsar el movimiento de agua hacia la c&eacute;lula epitelial en una magnitud de unos 9-10  litros de H<SUB>2</SUB>O en 24 horas, e incluso, la reabsorci&oacute;n de unos 180 litros de agua/d&iacute;a en los t&uacute;bulos renales<SUP>9</SUP>.</FONT></P>     <P ALIGN="center"><a name="fig3"><img border="0" src="/img/fbpe/Avft/v26n2/a02f3.gif" width="444" height="379"></a></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2"><b>Figura 3.</b>  La absorci&oacute;n de la glucosa en el epitelio intestinal implica el co-transporte de Na+ por el SGLT-1 y el mantenimiento del gradiente de Na+ gracias a la bomba de Na+/K+. De forma secundaria y salida de Na+ al espacio basolateral genera la suficiente fuerza osm&oacute;tica para arrastrar y absorber agua hacia los capilares. la fructosa se absorbe mediante otro tipo de transportador, el Glut-5, una prote&iacute;na que atraviesa la membrana 12 veces. Finalmente, el paso de la glucosa y la fructosa hacia la sangre se lleva a cabo a trav&eacute;s del Glut-2, un transportador de baja afinidad y alta capacidad de transporte.</font></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Existe a&uacute;n controversia de cual es la v&iacute;a m&aacute;s importante que toma el agua para ingresar al epitelio intestinal, sin embargo, hay 3 v&iacute;as posibles conocidas: </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">1. Difusi&oacute;n pasiva del agua a trav&eacute;s de la membrana de los enterocitos:</font></B> <font face="Verdana" size="2"> Se sabe desde hace tiempo que la membrana plasm&aacute;tica es levemente permeable al agua, en especial, si se crea una diferencia en la concentraci&oacute;n de solutos tal como ocurre en el co-transporte de Na<SUP>+</SUP> y glucosa. Sin embargo, la magnitud de la diferencia de gradiente no es suficiente para crear una corriente osm&oacute;tica suficiente que explique la absorci&oacute;n de 10 litros de agua por d&iacute;a.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">2. Difusi&oacute;n de agua a trav&eacute;s del SGLT-1 junto con el Na<SUP>+</SUP> y glucosa (Transporte activo secundario):</font></B> <font face="Verdana" size="2"> Investigaciones recientes han determinado que el SGLT-1 se comporta como un transportador de agua, movilizando unas 260 mol&eacute;culas de agua por cada ciclo de transporte de 2 iones Na<SUP>+</SUP> y cada mol&eacute;cula de glucosa, lo cual representa unos 5 litros de agua/d&iacute;a, por lo que, igual que en el caso anterior, no explica la movilidad de 10 litros de agua/d&iacute;a (<a href="#fig3">Fig. 3</a>).</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">3. Difusi&oacute;n de agua a trav&eacute;s de otros co-transportadores de nutrientes (Transporte activo secundario): </font> </B><font face="Verdana" size="2">Otros co-transportadores como los transportadores para amino&aacute;cidos y p&eacute;ptidos, as&iacute; como el co-transportador de Na<SUP>+</SUP>/yoduro y el K<SUP>+</SUP>/Cl<SUP>-</SUP> pueden, al igual que el SGLT-1 pueden transportar de 30 – 50 mol&eacute;culas de agua por ciclo<SUP>8</SUP>.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">4. Transporte de agua a trav&eacute;s de las Acuaporinas (AQP):</font></B> <font face="Verdana" size="2"> Se han descrito prote&iacute;nas peque&ntilde;as de unos 45 kDa que contienen 6 &#945;-h&eacute;lices trasmembrana que se encargan de servir de poros para el transporte espec&iacute;fico de agua y que recibieron el nombre de  Acuaporinas. Estas prote&iacute;nas son capaces de transportar las mol&eacute;culas de agua a una velocidad 100 veces mayor que cualquier co-transportador de solutos. De esta forma, es atractiva la idea que a trav&eacute;s de estos poros se absorba la mayor cantidad de agua a nivel intestinal. Hasta la fecha se conocen 13 isoformas, encontr&aacute;ndose las AQP 3, 7 y 8 en el intestino delgado humano. Su papel en la absorci&oacute;n de agua a&uacute;n se encuentra bajo investigaci&oacute;n activa, aunque es bien conocido su papel en la reabsorci&oacute;n de agua en el t&uacute;bulo contorneado proximal en el ri&ntilde;&oacute;n<SUP>9</SUP>.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">SGLT-2 (SLC5A2)</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El gen de este co-transportador se aisl&oacute; de librer&iacute;as de tejido renal humano en el cromosoma 16 p11.2 que se expresa fundamentalmente en la corteza renal y en mucho menor grado en el &iacute;leo. Este transportador es una prote&iacute;na integral de membrana de 672 amino&aacute;cidos con una estructura secundaria similar al resto de los miembros de esta familia y que se encuentra en las c&eacute;lulas epiteliales del t&uacute;bulo contorneado proximal, de all&iacute;, que la funci&oacute;n principal de este co-transportador es la reabsorci&oacute;n de Na<SUP>+</SUP>, glucosa y agua a nivel renal bajo los mismos principios del SGLT-1<SUP>10</SUP>. Sin embargo, el descubrimiento y la caracterizaci&oacute;n de la acuaporina 2 en el t&uacute;bulo contorneado proximal y las acuaporinas 2 y 6 en los t&uacute;bulos colectores obligar&aacute;n en un futuro pr&oacute;ximo a la revisi&oacute;n de los procesos de transporte de solutos y agua a trav&eacute;s del epitelio tubular renal<SUP>9</SUP>. </FONT> </P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">SGLT-3 (SLC5A4 &oacute; SAAT1)</font> </P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El gen de este Co-transportador se ubica en el cromosoma 22q12.2-q12.3 y se aisl&oacute; por primera vez de librer&iacute;as de ri&ntilde;ones de cerdo y posteriormente en ri&ntilde;ones humanos, ubic&aacute;ndose solo a 0,10 mb corriente abajo del gen del Glut-1 con una distribuci&oacute;n de exones e intrones similar, por lo que se cree que se origin&oacute; de una duplicaci&oacute;n de &eacute;ste &uacute;ltimo. Este gen codifica una prote&iacute;na de 659 amino&aacute;cidos que se ha detectado en m&uacute;sculo esquel&eacute;tico, sistema nervioso central y en neuronas de los plexos nerviosos sub-mucosos y mioent&eacute;ricos a nivel de la placa motora. Este transportador tiene baja afinidad por la glucosa (50mM) as&iacute; como una muy baja capacidad de transporte para la misma. Evidencia reciente indica que se comporta como glucosensor en la membrana plasm&aacute;tica de las neuronas colin&eacute;rgicas y del tejido muscular liso y estriado, regulando de una forma a&uacute;n desconocida la actividad muscular<SUP>11</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">SGLT-4 (SLC5A9), SGLT-5 (SLC5A10) y SGLT-6 (SLC5A11)</font></P> </B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El SGLT-4  y el SGLT-5 fueron aislados recientemente de librer&iacute;as de ADNc de intestino delgado humano en los cromosomas 1p32 y 17p11.2 respectivamente, gracias a los esfuerzos de <I>Robert<SUP> </SUP>L. Strausberg</I> del Mammalian Gene Collection (MGC) Program Team del Nacional Cancer Institute en los EUA. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El ARNm del SGLT-4 se encuentra fundamentalmente en el intestino y ri&ntilde;&oacute;n y su transcipto posee actividad transportadora de glucosa con un Km de 2,6 mM. La manosa tiene una potente actividad inhibidora del transporte de glucosa, por lo que se cree que es capaz de transportar casi todos los monosac&aacute;ridos presentes en la dieta a trav&eacute;s del epitelio intestinal o del epitelio tubular renal. El ARNm del SGLT-5 se encuentra fundamentalmente en el intestino delgado y ri&ntilde;&oacute;n, a&uacute;n no se cuenta con datos sobre el Km y sustratos a transportar. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El gen del transportador SGLT-6 se encuentra en el cromosoma humano 16p12-p11, el cual est&aacute; dividido en 16 exones generando una proteina de 675 amino&aacute;cidos con 14 dominios transmembrana, compartiendo gran homolog&iacute;a con el SGLT-1. De forma interesante, la regi&oacute;n del genoma donde se  encuentra este transportador se relaciona con el gen responsable del s&iacute;ndrome de discinesia y convulsiones infantiles as&iacute; como el s&iacute;ndrome de convulsi&oacute;n infantil familiar benigna<SUP>10,12,13</SUP>. </FONT> </P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Transportadores de difusi&oacute;n facilitada para Hexosas (GLUTS)</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Si se considera cualquier Glut dentro del contexto de una gran familia de prote&iacute;nas puede notarse de forma inmediata que todos poseen caracter&iacute;sticas comunes que en t&eacute;rminos bioqu&iacute;micos se denominan <B>&quot;firma molecular de los transportadores de glucosa</B>&quot; y que no es m&aacute;s que un conjunto de secuencias primarias aminoac&iacute;dicas extremadamente conservadas que determinan estructuras secundarias y terciarias (dominios o motifs) que son responsables de las caracter&iacute;sticas funcionales de la prote&iacute;na: especificidad por uno o m&aacute;s carbohidratos, afinidad por el sustrato, distribuci&oacute;n tisular, ubicaci&oacute;n celular, regulaci&oacute;n de su actividad por hormonas, etc<SUP>4</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Las primeras firmas en los Gluts pueden estudiarse hist&oacute;ricamente con el descubrimiento del primer transportador de glucosa en 1977 a partir de membranas de eritrocitos humanos por Michihiro Kasahara y Meter Hinkle de la Universidad de Cornell y el trabajo cl&aacute;sico llevado a cabo ocho a&ntilde;os despu&eacute;s en un proyecto conjunto dirigido por Mike Mueckler y Harvey F. Lodish del instituto Whitehead de investigaciones biom&eacute;dicas, en el cual se dilucid&oacute; la secuencia de amino&aacute;cidos de este transportador. Los investigadores trabajaron en sentido inverso mediante una sencilla estrategia que consisti&oacute; en el aislamiento del ADN que codificaba la proteina, secuenciaci&oacute;n del n&uacute;mero y orden de las bases que integraban ese ADN y finalmente, aplicaci&oacute;n del c&oacute;digo gen&eacute;tico, con lo que se dedujo que codificaba una prote&iacute;na de 492 amino&aacute;cidos que pod&iacute;a organizarse en 25 segmentos, 12 de los cuales eran segmentos hidrof&oacute;bicos que cruzan el espesor de la membrana plasm&aacute;tica denominados segmentos T (T = trasmembrana) con una estructura &#945; helicoidal, y 13 segmentos  muy hidrof&iacute;licos, llamados asas (intra o extracelulares) que conectan a los segmentos trasmembrana. Este transportador caracter&iacute;stico de los eritrocitos recibi&oacute; el nombre de Glut 1<SUP>2</SUP>  (<a href="#fig4">Fig. 4</a>).</FONT></P>     <P ALIGN="center"><a name="fig4"><img border="0" src="/img/fbpe/Avft/v26n2/a02f4.gif" width="440" height="404"></a></P>     
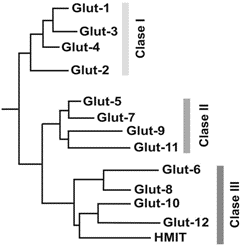
<P ALIGN="JUSTIFY"><font face="Verdana" size="2"><b>Figura 4.</b> La gran familia de los transportadores de glucosa GLUT´s se divide en 3 clases, sin embargo todas comparten ciertas caracter&iacute;sticas en com&uacute;n como 12 alfa-h&eacute;lices trasmembrana, varios dominios de glicosilaci&oacute;n y algunos dominios muy conservados relacionados con la traslocaci&oacute;n de la glucosa al interior de la c&eacute;lula.</font></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Se ha planteado la posibilidad que los Gluts emergieron evolutivamente por la duplicaci&oacute;n de una prote&iacute;na con seis dominios trasmembrana como lo sugiere la presencia de estructuras repetidas en ambas mitades del transportador. Estas secuencias son el motif GRR/K presente entre las asas transmembrana 2 y 3 (TM2 y TM3) y entre las asas transmembrana 8 y 9 (TM8 y TM9) y el motif EX<SUB>6</SUB>R/K presente entre TM4 y TM5 y entre TM10 y TM11. Recientemente se han identificado otros motifs esenciales para la actividad del transportador como el QLS del asa TM7 que determina la afinidad del transportador por su ligando. Inmediatamente despu&eacute;s de &eacute;ste se pueden apreciar dos residuos de glutamina altamente conservados. El primero (Glu<SUP>282</SUP>) presente en el Glut 1 se requiere para la uni&oacute;n del inhibidor ATB-BMPA. De igual importancia son dos residuos de tript&oacute;fano (Try<SUP>338,412</SUP>) en el Glut 1 que tambi&eacute;n est&aacute;n conservados en el Glut 2, 3 y 4, que participan en los cambios conformacionales requeridos para el transporte de la glucosa. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Durante los &uacute;ltimos 4 a&ntilde;os se han identificado nuevos genes que codifican prote&iacute;nas transportadoras tipo TDFH para la glucosa pertenecen a la familia SLC2A (del ingl&eacute;s <B>S</B>o<B>L</B>ute <B>C</B>arrier <B>2A</B>). Sobre la base de la homolog&iacute;a de la secuencia primaria, la familia de los Glut´s se puede dividir en tres subfamilias<SUP>14</SUP>  (<a href="#fig5">Fig. 5</a>): </FONT></P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">a. Familia de la Clase I:</font></B> <font face="Verdana" size="2"> Que se encuentra formada por los Glut´s 1, 2, 3 y 4.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">b. Familia de la Clase II:</font></B> <font face="Verdana" size="2"> Constituida por los Glut´s 5,7,9 y 11</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">c. Familia de la Clase III:</font></B> <font face="Verdana" size="2"> Formada por los Glut´s 6, 8, 10, 12, el Glut-13 &oacute; transportador para mioinositol (HMIT -1) y el Glut14 (3)</font></P>     <P ALIGN="center"><a name="fig5"><img border="0" src="/img/fbpe/Avft/v26n2/a02f5.gif" width="241" height="245"></a></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2"><b>Figura 5.</b> Dendrograma de alineamiento m&uacute;ltiple de todos los miembros de la familia de los Gluts. El alineamiento fue realizado mediante el programa HUSAR mostrando la relaci&oacute;n  entre cada Glut.</font></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 1 (SLC2A1): Un Glut de alta afinidad presente en tejidos que utilizan a la glucosa como combustible principal</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Este Glut tambi&eacute;n se conoce transportador de glucosa de eritrocito/cerebro cuya cin&eacute;tica de transporte se ha investigado desde hace m&aacute;s de 40 a&ntilde;os principalmente en eritrocitos humanos cuando Widdas y colaboradores en 1952 propusieron la existencia de un mecanismo de transporte de glucosa saturable en la placenta humana. Sin embargo, era moderna del estudio de este transportador comenz&oacute; en 1977 cuando Kasahara y Hinkle lograron purificarlo en 1977 a partir de las membranas de eritrocitos, hecho que fue posible gracias a que representa el 5% del total en peso de la membrana plasm&aacute;tica eritrocitaria<SUP>3</SUP>  (<a href="#fig6">Fig. 6</a>). </FONT></P>     <P ALIGN="center"><FONT face="Verdana" SIZE=2><a name="fig6"><img border="0" src="/img/fbpe/Avft/v26n2/a02f6.gif" width="338" height="261"> </a> </FONT></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2"><b>Figura 6.</b> Los Glut-1 y 3 son los transportadores con mayor afinidad por la glucosa, por este motivo se  encuentran en aquellos tejidos o c&eacute;lulas que dependen exclusivamente de glucosa para sus requerimientos Energ&eacute;ticos tales como los eritrocitos, tejido nervioso, c&eacute;lulas embrionarias y placenta.</font></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El Glut-1 es una prote&iacute;na altamente hidrof&oacute;bica ya que el 60% de sus residuos de amino&aacute;cidos son hidrof&oacute;bicos, lo cual es consistente con el hecho de ser una prote&iacute;na trasmembrana que cuenta con la organizaci&oacute;n secundaria de todos los Gluts: Doce alfa-h&eacute;lices trasmembrana con asas extra e intracelulares que unen dichas alfa-h&eacute;lices cuyos grupos amino y carboxiloterminal se encuentran orientados hacia el citosol. Es importante se&ntilde;alar que los amino&aacute;cidos m&aacute;s conservados entre los diferentes Glut´s del humano se encuentran en las 12 alfa-h&eacute;lices y las mayores divergencias se han encontrado en el asa intracelular que conecta las alfa h&eacute;lices 6 y 7 as&iacute; como en los dominios amino y carboxilo terminal. </FONT></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El gen del Glut-1 se ubica en el cromosoma 1p35.31.3 y cuyo cDNA codifica una prote&iacute;na de 492 amino&aacute;cidos con un peso molecular de 54,2 kDa. En adici&oacute;n a esto se han determinado las secuencias polinucleot&iacute;dicas de este transportador en ratones, ratas, conejos y cerdos, lo que ha revelado una muy remarcable similitud entre especies de alrededor del 97%<SUP>15,16</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El Glut-1 parece ser el transportador de glucosa m&aacute;s ampliamente distribuido en el ser humano. Este se expresa en numerosos tejidos fetales y adultos como los eritrocitos, c&eacute;lulas endoteliales, c&eacute;lulas nerviosas, placenta, gl&oacute;bulos blancos, c&eacute;lulas de la retina, ri&ntilde;&oacute;n (mesangio), tejido adiposo, etc<SUP>16</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Este Glut posee una alta afinidad por la glucosa (Km = 1-2 mM) por lo que es capaz de transportarla al interior de las c&eacute;lulas pr&aacute;cticamente a cualquier concentraci&oacute;n, por lo que se considera como un transportador basal de glucosa que mantiene su concentraci&oacute;n intracelular estable, hecho de gran importancia en aquellas c&eacute;lulas que requieren un suministro constante de la misma para la producci&oacute;n de energ&iacute;a, tal como sucede en tejido nervioso y eritrocito. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Al analizar la posible estructura secundaria de este Glut mediante programas de simulaci&oacute;n se ha predicho que este posee un 82% de su estructura como alfa-h&eacute;lices, un 10 % como giros beta, y un 8% de enrollamientos al azar. La orientaci&oacute;n de las 12 alfa-h&eacute;lices dentro de la membrana plasm&aacute;tica y la posici&oacute;n relativa de cada una de ellas ha sido propuesta por Mueckler y cols, la cual presenta un canal acuoso central formado por la yuxtaposici&oacute;n de 5 de las 12 alfa h&eacute;lices: 3,5,7,10 y 11, cada una de las cuales posee car&aacute;cter antip&aacute;tico. Sin embargo, en un modelo alternativo derivado de estudios de mutag&eacute;nesis de ciste&iacute;na en las alfa-h&eacute;lices 2, 5, 10 y 11 se ha demostrado que todas tienen residuos accesibles a mol&eacute;culas de agua capaces de formar un canal capaz de transportar glucosa y agua. Estudios posteriores han demostrado que la h&eacute;lice 7 es la m&aacute;s sensible a los estudios de mutag&eacute;nesis de ciste&iacute;na lo que sugiere que se encuentra mas centralmente posicionada a la hora de formar el poro de entrada de la glucosa. La confirmaci&oacute;n de este modelo requiere determinaciones m&aacute;s directas en lo que concierne a las distancias inter-h&eacute;lices. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Las propiedades cin&eacute;ticas de este Glut han sido extensamente estudiadas pero todav&iacute;a resulta un foco de pol&eacute;mica la manera de c&oacute;mo maneja las mol&eacute;culas de glucosa de un lado a otro de la membrana. Seg&uacute;n la propuesta m&aacute;s aceptada, el transporte facilitado de glucosa ocurre mediante cambios conformacionales en la estructura terciaria de transportador inducidos por la uni&oacute;n de la mol&eacute;cula de glucosa a un sitio de uni&oacute;n para &eacute;sta en la cara extracelular del transportador y su movimiento progresivo hacia la cara intracelular del mismo donde existe otro sitio de uni&oacute;n para la glucosa. Seg&uacute;n este modelo, ambos sitios no pueden estar ocupados al mismo tiempo, por lo que debe transportarse una sola mol&eacute;cula de glucosa a la vez. Inconsistente con este modelo es el hecho de que aparentemente ambos sitios de uni&oacute;n pueden estar ocupados al mismo tiempo, por lo que una propuesta alternativa ha sido postulada por Carruthers y cols en el cual el Glut 1 existe como un homotetr&aacute;mero que presentan interacciones cooperativas positivas entre s&iacute; formando dos d&iacute;meros funcionales: dentro de cada d&iacute;mero, un mon&oacute;mero posee su sitio de extracelular uni&oacute;n a la glucosa  libre mientras que el otro mon&oacute;mero tiene su sitio de uni&oacute;n a la glucosa intracelular libre. Al mismo tiempo, el otro d&iacute;mero tiene una conformaci&oacute;n opuesta, lo que permite cambios rec&iacute;procos que permiten la entrada de la glucosa al interior celular. Este modelo explica la mayor&iacute;a de los datos cin&eacute;ticos que se encuentran en conflicto con el modelo de transporte original<SUP>3</SUP>. </FONT>    </P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT2 (SLC2A2): Un Glut con funci&oacute;n glucosensora</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El Glut-2 es un transportador de glucosa de baja afinidad (Km = 15–20 mM) que se expresa en el h&iacute;gado humano adulto, ri&ntilde;&oacute;n, c&eacute;lulas beta de los islotes de Langerhans y en la membrana basolateral de las c&eacute;lulas epiteliales del intestino delgado. Su gen se ubica en el cromosoma 3q26.1-26.3 y posee una extensi&oacute;n de 186,9 MB<SUP>17</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Gracias a su elevado Km este Glut transporta glucosa proporcionalmente a su concentraci&oacute;n por lo que se le atribuye la propiedad de glucosensor en las c&eacute;lulas que lo poseen, en especial en h&iacute;gado y c&eacute;lula beta pancre&aacute;tica; as&iacute;, por ejemplo, con una baja concentraci&oacute;n de glucosa en plasma este Glut no es capaz de transportar glucosa al interior de la c&eacute;lula beta y por ende, la secreci&oacute;n de insulina es muy baja. Sin embargo, despu&eacute;s de las comidas, cuando se incrementa la concentraci&oacute;n plasm&aacute;tica de glucosa en suficiente magnitud para poder ser transportada al interior de la c&eacute;lula beta, la generaci&oacute;n de ATP producto del metabolismo de la glucosa es capaz de estimular la liberaci&oacute;n de insulina. En este caso, el Glut-2 act&uacute;a como un regulador que solo permite la entrada de glucosa cuando est&aacute; lo suficiente elevada en plasma como para requerir la liberaci&oacute;n de una cantidad significativamente importante de insulina<SUP>18</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Otro caso interesante es la intervenci&oacute;n del Glut-2 en el metabolismo hep&aacute;tico de la glucosa. Despu&eacute;s de las comidas, el h&iacute;gado es capaz de incorporar la glucosa proveniente de los alimentos gracias al Glut-2 para ser convertida r&aacute;pidamente en gluc&oacute;geno. De forma inversa, durante el per&iacute;odo post-pandrial tard&iacute;o (per&iacute;odo comprendido de 6 a 8 horas despu&eacute;s de las comidas) el gluc&oacute;geno sufre degradaci&oacute;n generando mol&eacute;culas de glucosa que salen de la c&eacute;lula hep&aacute;tica a la sangre, manteniendo as&iacute; los niveles de glucosa plasm&aacute;tica dentro de l&iacute;mites normales. De esta forma, es f&aacute;cil notar que el Glut-2 es un transportador de tipo bidireccional que puede transportar glucosa desde la sangre al tejido o desde el tejido hacia la sangre, hecho particularmente cierto a nivel hep&aacute;tico y renal funcionando como sensor de la concentraci&oacute;n plasm&aacute;tica de glucosa y permitiendo su intercambio entre la sangre y el hepatocito dependiendo de la condici&oacute;n alimentaria predominante en el momento<SUP>19</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Recientemente se ha descubierto que el Glut-2 tiene tambi&eacute;n la habilidad de transportar fructosa gracias a un motif denominado HVA en el alfa-h&eacute;lice Nº 7 que tambi&eacute;n est&aacute; presente en el Glut-5 (transportador de fructosa cl&aacute;sico) y sustituye al motif QLS que se observa normalmente en los Gluts de alta afinidad por la glucosa como el Glut-1. </FONT></P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 3 (SLC2A3): El Glut de m&aacute;s alta afinidad por la glucosa</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El Glut-3 es un transportador de glucosa de alta afinidad (Km = 1-2 mM) que fue caracterizado primariamente en cerebro. Bajos niveles de Glut-3 se han detectado en miocardio fetal y adulto, placenta, h&iacute;gado y m&uacute;sculo. La presencia de este transportador co-agregado con el Glut-1 en tejido nervioso habla a favor de que este transportador tenga funciones de mantenimiento del nivel basal de glucosa en neuronas y placenta<SUP>20 </SUP>(<a href="#fig6">Fig. 6</a>). Recientemente se ha comprobado su expresi&oacute;n en las c&eacute;lulas de trofoectodermo de embriones de rat&oacute;n. El bloqueo de la expresi&oacute;n de este Glut conlleva a la muerte por apoptosis del embri&oacute;n comprobando la importancia de este transportador en el desarrollo embrionario. </FONT> </P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 4(SLC2A4): Un Glut con gran movilidad</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El Glut-4 es un transportador de alta afinidad para la glucosa (Km = 5 mM) que se expresa fundamentalmente en tejido muscular estriado, tejido muscular card&iacute;aco y adipocito (<a href="#fig7">Fig. 7</a>). Su gen se ubica en el cromosoma 17p13 y tiene una extensi&oacute;n de 8,4 MB<SUP>21,22,23,24</SUP>. Este transportador no se expresa en tejidos embrionarios (ni pre ni post-implantaci&oacute;n) y es &uacute;nico en el sentido de la regulaci&oacute;n de su localizaci&oacute;n en el citosol o en la membrana por la insulina<SUP>25</SUP>. En condiciones basales, la vasta mayor&iacute;a de las mol&eacute;culas de Glut-4 se encuentran localizadas dentro de ves&iacute;culas en el citosol que forman dos tipos de compartimientos bien definidos, ya que un grupo de estas ves&iacute;culas responden a la se&ntilde;al de la insulina y otro grupo responde fundamentalmente al est&iacute;mulo que representa la actividad f&iacute;sica. Este comportamiento representa un mecanismo muy fino de regulaci&oacute;n del metabolismo de la glucosa que solo permite la entrada de glucosa al tejido muscular cuando es lo suficientemente elevada como para estimular la secreci&oacute;n de insulina y que en &uacute;ltima instancia favorecer&aacute; la entrada del excedente de glucosa al interior muscular. Cuando el nivel de glucosa en plasma es bajo la liberaci&oacute;n de insulina tambi&eacute;n lo es, por lo que durante el ayuno la mayor&iacute;a de las mol&eacute;culas de glucosa son derivadas a los tejidos que tienen Glut´s de alta afinidad (Glut-1 y Glut-3) que no son sensibles a la presencia de la insulina. De esta forma, durante el ayuno el m&uacute;sculo es incapaz de incorporar glucosa en cantidades significativas (a menos que se haga actividad f&iacute;sica en&eacute;rgica) preserv&aacute;ndola para el tejido nervioso y eritrocito<SUP>26,27,28,29,30</SUP>. </FONT></P>     <P ALIGN="center"><a name="fig7"><img border="0" src="/img/fbpe/Avft/v26n2/a02f7.gif" width="403" height="221"></a></P>     
<P ALIGN="JUSTIFY"><font face="Verdana" size="2"><b>Figura 7.</b>  Micrograf&iacute;as por fluorescencia con anticuerpos contra Glut-4 de un adipocito antes (A) y despu&eacute;s (B)  de la estimulaci&oacute;n con Insulina. En este tipo de tinci&oacute;n los anticuerpos fluorescentes se unen al Glut-4 pudi&eacute;ndose notar el cambio en la distribuci&oacute;n de los transportadores sin insulina y con la estimulaci&oacute;n de la hormona. Puede observarse claramente como en ausencia de insulina los Glut-4 se encuentran dispersos en el citosol (A). La estimulaci&oacute;n con insulina produce una dram&aacute;tica migraci&oacute;n de los Glut-4 hacia la membrana plasm&aacute;tica y por lo tanto un incremento en el transporte de glucosa al interior celular.</font></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Uno de los hitos m&aacute;s importantes en la bioqu&iacute;mica moderna ha sido la dilucidaci&oacute;n de los mecanismos involucrados en la respuesta de las ves&iacute;culas que contienen Glut-4 a la se&ntilde;al insul&iacute;nica y que finalmente conducen a la fusi&oacute;n de &eacute;stas con la membrana plasm&aacute;tica. Este intrincado sistema requiere el concurso de una serie de prote&iacute;nas de las ves&iacute;culas y de la membrana que se denominan en conjunto &quot;prote&iacute;nas Snare&quot;. La traslocaci&oacute;n del Glut-4 a la membrana tambi&eacute;n requiere de la activaci&oacute;n de la enzima fosfatidilinisitol-3-cinasa (PI-3K) por intermedio del IRS-1 fosforilado, que forma un complejo con dicha enzima que produce un incremento de su actividad unas 20 veces. Igualmente, una segunda v&iacute;a de activaci&oacute;n de la traslocaci&oacute;n (por ejercicio) se lleva a cabo gracias a la activaci&oacute;n de la enzima AMPK por el incremento de la relaci&oacute;n AMP/ATP y por alosterismo positivo por el AMP<SUP>31,32,33</SUP>. Existe evidencia reciente de que una tercera v&iacute;a de traslocaci&oacute;n de Glut-4 a la membrana que involucra la s&iacute;ntesis de &oacute;xido n&iacute;trico (NO) durante la contracci&oacute;n muscular y activaci&oacute;n ulterior de la enzima guanilato ciclasa, ya que en experimentos utilizando Nitroprusiato de Na<SUP>+</SUP>(donador de NO) se observ&oacute; un incremento en el transporte de glucosa en c&eacute;lulas de m&uacute;sculo esquel&eacute;tico aislado. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 5 (SLC2A5): Un Glut espec&iacute;fico para la Fructosa</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El Glut-5 es un transportador espec&iacute;fico para fructosa (Km = 10-13 mM) que se expresa fundamentalmente en la c&eacute;lulas del ribete en cepillo del intestino delgado donde media el paso de la fructosa desde el lumen a la c&eacute;lula epitelial intestinal. Bajos niveles de este transportador tambi&eacute;n se encuentran en eritrocitos, ri&ntilde;&oacute;n, espermatozoides, m&uacute;sculo esquel&eacute;tico y tejido adiposo de humanos y ratas (34). Su expresi&oacute;n en el m&uacute;sculo esquel&eacute;tico humano se relaciona a su capacidad de utilizar la fructosa para la gluc&oacute;lisis y la s&iacute;ntesis de gluc&oacute;geno de forma independiente de la incorporaci&oacute;n por medio del Glut-1 y el Glut-4.  Este transportador no posee uno de los dominios de reconocimiento de la glucosa, el dominio QLS, en la alfa h&eacute;lice Nº 7. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>M&aacute;s all&aacute; del mecanismo de absorci&oacute;n de fructosa en intestino, mucha pol&eacute;mica ha generado el mecanismo de obtenci&oacute;n de energ&iacute;a de los espermatozoides humanos. A pesar que los datos disponibles en la actualidad son consistentes con el concepto de que estas c&eacute;lulas usan fundamentalmente a la glucosa como fuente de energ&iacute;a, es un hecho cierto que la concentraci&oacute;n de glucosa en los t&uacute;bulos semin&iacute;feros es muy baja y que la concentraci&oacute;n de &eacute;sta en el l&iacute;quido seminal es muy variable, desde un nivel muy cercano a cero hasta 90 mg/dl. La expresi&oacute;n de varios transportadores de hexosas con diferentes afinidades puede representar una adaptaci&oacute;n funcional para transportar diferentes sustratos energ&eacute;ticos cuya concentraci&oacute;n var&iacute;a durante el ciclo de vida de los espermatozoides, de hecho, estudios previos han concluido que en el espermatozoide humano se expresan tambi&eacute;n los Glut´s 1,2 y 3<SUP>4</SUP>. </FONT> </P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 6 (SLC2A6): Redefiniendo la clasificaci&oacute;n</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Toshiaki Kayano y cols. del Instituto Howard Hughes de la Universidad de Chicago aislaron y caracterizaron en 1990 lo que pareci&oacute; ser el sexto transportador de glucosa de la familia de los Glut´s con un 79,6 % de homolog&iacute;a con el Glut 3 y con una ubicaci&oacute;n en el brazo largo del cromosoma 5.  Sin embargo, estos autores y otros confirmaron que este gen de 3,4 kb de extensi&oacute;n pose&iacute;a un gran n&uacute;mero de codones de interrupci&oacute;n de la transcripci&oacute;n por lo que en condiciones normales no era capaz de producir una prote&iacute;na (Pseudogen). De esta manera, el lugar del Glut 6 permaneci&oacute; vac&iacute;o hasta el descubrimiento de una &quot;primera versi&oacute;n del Glut 9&quot; que r&aacute;pidamente fue reclasificado como Glut 6 por el Comit&eacute; de Nomenclatura de Genes HUGO (<B><I>Hu</B>man <B>G</B>enome <B>O</B>rganization</I></B><I>man <B>G</B>enome <B>O</B>rganization</I>)<SUP>35</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El an&aacute;lisis de la estructura primaria revela la presencia de 12 &#945; h&eacute;lices transmembrana adem&aacute;s de contener todos los dominios que son caracter&iacute;sticos de los transportadores de glucosa, en particular los dominios PESPR/PETKGR (despu&eacute;s de las h&eacute;lices 6 y 12), el dominio GRR es las asas 2 y 8, residuos de Glutamato y Arginina en las asas intracelulares 4 y 10, 2 residuos de Tript&oacute;fano (Trp 388 y 412), residuos de tirosina en las h&eacute;lices 4 y 7 y Glutaminas en las h&eacute;lices 5 y 7 que tambi&eacute;n se encuentran en el Glut 1<SUP>4</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El gen de este transportador se encuentra en el cromosoma 9 (9q34) y tienen una longitud aproximada de 8kb y consiste en 10 exones separados por intrones cortos. Mediante an&aacute;lisis por Northern blot el ARNm del Glut 9 se ha encontrado exclusivamente en cerebro y tejido linfoideo (bazo y leucocitos perif&eacute;ricos). </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>La prote&iacute;na con mayor similaridad con el Glut 6 es el transportador Glut 8 (44,8% de homolog&iacute;a). El Glut 6 y el Glut 8 se encuentran en una rama separada de la Clase III de la familia de los Glut´s (<a href="#fig2">Fig. 2</a>) y exhiben marcadas diferencias con los Glut´s 1 al 5. De hecho, 2 residuos de Arginina est&aacute;n presentes en posici&oacute;n 7 y 8 en el Glut 9, una regi&oacute;n que se asocia con la especificidad del transportador por su sustrato. De manera interesante, los transportadores renales de aniones poseen estas Argininas en la misma posici&oacute;n del Glut 6, por lo que se ha especulado que esta prote&iacute;na es un co-transportador  ani&oacute;n/glucosa. Los parientes mas cercanos son el Glut 1 (28,5% de homolog&iacute;a), el transportador de inositol de levaduras (26,4% de homolog&iacute;a) y el transportador de Arabinosa y Xilosa de  E. colli (28,4 y 25,7 % de homolog&iacute;a respectivamente)<SUP>3</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Respecto a la afinidad de este transportador por la glucosa se han realizado experimentos que han medido la actividad de transporte del Glut 9 mediante transfecci&oacute;n a c&eacute;lulas COS-7 con la actividad de transporte constitutiva a una concentraci&oacute;n de glucosa de 5 mM pero no con glucosa a una concentraci&oacute;n de 1 mM, lo que es consistente con el hecho de que es capaz de ligar a la Citochalacina B con baja afinidad y por ende que este es un Glut de baja afinidad como en el caso del Glut 2<SUP>3,4</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 7 (SLC2A7): Una historia plagada de errores</font> </P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Desde hace tiempo se sabe que la fracci&oacute;n microsomal de h&iacute;gados de rata y humanos debe existir alg&uacute;n tipo de transportador para Hexosas con un alto Km que deber&iacute;a permitir que la glucosa generada de la actividad enzim&aacute;tica de la Glucosa-6-fosfatasa en el ret&iacute;culo endopl&aacute;smico liso pueda alcanzar el citosol. De esta manera, un grupo de investigadores de la Universidad de Dundee, Escocia, se dieron a la tarea de analizar posibles secuencias g&eacute;nicas capaces de codificar dicho transportador, logr&aacute;ndose finalmente el aislamiento de un nuevo cDNA en h&iacute;gado de rata que mostraba gran similaridad con las secuencias de los Glut´s1-6, pero haci&eacute;ndose notar que dicha homolog&iacute;a era mayor para el Glut 2. Para este momento se decidi&oacute; que este cDNA correspond&iacute;a al elusivo transportador Glut 7. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Posteriormente, este mismo grupo quiso ampliar los conocimientos iniciales que hab&iacute;an reportado en 1992 orientando la investigaci&oacute;n hacia la regulaci&oacute;n de la expresi&oacute;n del mismo en seres humanos. Primeramente, ensayaron clonar el equivalente de este Glut mediante el uso de librer&iacute;as de cDNA usando las sondas apropiadas y preparadas seg&uacute;n la supuesta homolog&iacute;a con el Glut 7 de rata. Mediante este m&eacute;todo se aislaron m&uacute;ltiples clones, pero de los Gluts conocidos hasta ahora, pero se fall&oacute; en aislar el Glut 7 humano. Posteriormente usaron el m&eacute;todo de la transcriptasa reversa-PCR para aislar porciones del gen del Glut 7 usando las sondas apropiadas preparadas sobre las secuencias del Glut 7 de ratas. Este m&eacute;todo tambi&eacute;n fall&oacute;. Los investigadores concluyeron que a la luz de sus &uacute;ltimas investigaciones que ni los hepatocitos de rata ni el del humano contienen ARNm equivalente al que se clon&oacute; de los experimentos iniciales, por lo que se infiere que el hallazgo inicial del Glut 7 fue un artefacto de las t&eacute;cnicas de clonaje usadas en la &eacute;poca<SUP>4</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Sin embargo, investigaciones muy recientes del Instituto de Nutrici&oacute;n Humana de Alemania (DIfE) han detectado un gen con caracter&iacute;sticas similares a la de los Gluts adyacente al gen del Glut 5 en el cromosoma 1p36.2 con el cual tiene gran similitud (58% de homolog&iacute;a). Este gen se ha denominado provisionalmente SLC2A7, aunque a&uacute;n no se conoce el patr&oacute;n de expresi&oacute;n de este gen ni la especificidad de su transcripto por sustratos. </FONT></P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 8 (SLC2A8): La carrera por descubrir nuevos Gluts se ha iniciado</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Dos l&iacute;neas de evidencia sugieren la posibilidad de la existencia de nuevos transportadores de glucosa. En primer lugar, en algunos tejidos se han encontrado muy bajos niveles de ARNm de las isoformas conocidas de estos transportadores. En segundo lugar, experimentos llevados a cabo en ratones que no expresan el Glut 4 (Glut-4 Knockout mice) han demostrado que la capacidad de transporte de glucosa en el m&uacute;sculo se conserva casi normal sin observarse un  incremento compensatorio en la expresi&oacute;n del Glut 1 &oacute; Glut 3. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Recientemente se ha desarrollado un nuevo abordaje para la identificaci&oacute;n de nuevos Gluts mediante la utilizaci&oacute;n de regiones extremadamente conservadas de los genes que sirven como plantillas que pueden ser comparadas con regiones de todo el genoma humano e intentar localizar regiones que tengan secuencias parecidas a estas regiones conservadas. Este abordaje llev&oacute; a la identificaci&oacute;n y caracterizaci&oacute;n del Glut 8 y el Glut 9 (actualmente reclasificado como Glut 6)<SUP>3,4</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>La b&uacute;squeda en las bases de datos gen&oacute;micas llev&oacute; a la identificaci&oacute;n en el a&ntilde;o 1999 de una secuencia caracter&iacute;stica a la de los Gluts cuyo cDNA fue clonado y expresado por dos grupos de investigadores en el a&ntilde;o 2000: Doege y cols., en humanos e Iberson y cols., en ratones,  y que en la actualidad se conoce como Glut 8. El hecho de que dos grupos de trabajo aislaran esta prote&iacute;na de forma simult&aacute;nea caus&oacute; cierta confusi&oacute;n, ya que inicialmente este transportador fue denominado como GLUT X1 por uno  de estos grupos y Glut 8 por el otro. En la actualidad de acuerdo al comit&eacute; de nomenclatura de genes HUGO se reserva el nombre de Glut-8 para esta prote&iacute;na<SUP>36</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El cADN del gen (ubicado en el cromosoma 9) del Glut 8 humano y de rat&oacute;n contiene franjas de lectura abierta que codifican una proteina de 477 amino&aacute;cidos. Esta secuencia tiene una homolog&iacute;a del 29,4% con el Glut 1 y 73 de los 132 (55%) residuos de amino&aacute;cidos id&eacute;nticos en todas las isoformas de Gluts de mam&iacute;feros est&aacute;n presentes en el Glut 8. La secuencia primaria de este transportador contiene todos los dominios caracter&iacute;sticos los Gluts, con la muy interesante carencia de los sitios de glicosilaci&oacute;n en el asa 1, el asa E9 es mucho mas larga que en los otros Gluts (y que adem&aacute;s contiene sitios de glicosilaci&oacute;n) y finalmente que el dominio STS (dominio muy conservado en todos los Gluts) es reemplazado por AET<SUP>37</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El transportador mas parecido al Glut 8 es el Glut 6 con el cual comparte una homolog&iacute;a del 43,6 %, de hecho, como se dijo anteriormente estos dos transportadores pertenecen a la familia III de los transportadores de glucosa y solo se encuentran separados por 5 MB en el mismo cromosoma.  Otros parientes cercanos son el Glut 1 (29,4%), el transportador de inositol del Saccharomyces pombe (30,2%) y los transportadores de xilosa (32,8%) y Arabinosa (29,1%) de la E. colli.  El alineamiento de las secuencias aminoac&iacute;dicas y su an&aacute;lisis con el programa PALING ha indicado que la homolog&iacute;a del Glut 8 con el transportador de Arabinosa de E. colli (150 amino&aacute;cidos id&eacute;nticos) es mayor que cuando se compara las secuencias del Glut 1 con el mismo transportador de Arabinosa (140 amino&aacute;cidos id&eacute;nticos), por lo que se cree que el Glut 8 es el transportador mas primitivo en mam&iacute;feros hasta ahora descubierto<SUP>3</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Mediante an&aacute;lisis de Northern Blot el transcripto del gen del Glut 8 de 2,4 Kb se ha encontrado de manera predominante en test&iacute;culos, blastocisto y cerebro (cerebelo e hipocampo) y en mucha menor cantidad en el bazo, pr&oacute;stata, intestino delgado, coraz&oacute;n, cerebro y m&uacute;sculo esquel&eacute;tico. Estudios de afinidad de este transportador llevados a cabo para la 2-desoxiglucosa arrojaron un Km de 2,4 mM,  la cual es bastante similar a la del Glut 3, la m&aacute;s alta afinidad conocida para un Glut. En experimentos realizados en ovocitos de Xenopus laevis se encontr&oacute; que el transporte de glucosa fue inhibido competitivamente por fructosa<SUP>3,38</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 9 (SLC2A9): El verdadero Glut 9</font> </P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Cuando qued&oacute; vac&iacute;o el espacio del Glut 6 en la clasificaci&oacute;n (por ser un pseudogen) el lugar fue cubierto por el primer Glut-9 en ser descrito, por lo que qued&oacute; un puesto vacante para ser llenado por el que en definitiva ser&iacute;a el verdadero Glut 9. Para que este evento ocurriese no iba a pasar mucho tiempo, ya que en el a&ntilde;o 1999 Phay y cols., descubrieron una secuencia gen&oacute;mica con gran homolog&iacute;a con el Glut 5. M&aacute;s importante fue el hecho de que estos investigadores patentaron esta secuencia en los E.U.A<SUP>39</SUP>. </FONT> </P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Seg&uacute;n el alineamiento m&uacute;ltiple de la secuencia de amino&aacute;cidos deducida del ADNc el Glut 9 es un transportador perteneciente a la Clase II con una homolog&iacute;a de un 55 %  con el Glut 5, con el que comparte la p&eacute;rdida del amino&aacute;cido Tript&oacute;fano en la h&eacute;lice 10 (el cual se conserva en los transportadores de la Clase I). Otra caracter&iacute;stica particular de este transportador es la presencia de un asa amino-terminal larga de unos 55 amino&aacute;cidos con un motif formado por dos Leucinas<SUP>3</SUP>. </FONT></P>     ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El gen que codifica el Glut 9 se encuentra ubicado en el cromosoma 4p15.3 y se expresa fuertemente en el ri&ntilde;&oacute;n y el h&iacute;gado, con bajos niveles en intestino delgado, placenta, pulm&oacute;n y leucocitos<SUP>40</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 10 (SLC2A10): ¿Una pareja para el Glut-2?</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Este nuevo miembro de la familia SLC2A fue identificado en el a&ntilde;o 2000 por Dawson y cols. Es una prote&iacute;na de 541 amino&aacute;cidos que comparte un 35% de homolog&iacute;a con los Glut´s humanos 1 y 8. La secuencia de amino&aacute;cidos del Glut 10 es casi id&eacute;ntica en longitud al Glut 9, pero hasta la fecha es el miembro de mayor longitud de la familia. El Glut 10 de rat&oacute;n comparte un 77,3% de homolog&iacute;a con su contraparte humana<SUP>41</SUP>. Cuando este transportador se expresa en ovocitos de <I>Xenopus laevis</I> exhibe la capacidad de transportar la 2-desoxi-glucosa que puede ser inhibida por la droga Phloricin. El Km de este Glut es de 0,3mM. El gen del transportador se localiza en el cromosoma 20 (20q12-13.1 y 12 MB de extensi&oacute;n) una regi&oacute;n asociada fuertemente con posibles diabetogenes. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>La localizaci&oacute;n del gen y sus propiedades funcionales sugieren que el Glut 10 puede llevar a cabo funciones metab&oacute;licas de gran importancia y ser un elemento clave en el desarrollo de diabetes mellitus tipo 2<SUP>42</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Mediante la t&eacute;cnica de Northern blotting se ha determinado la distribuci&oacute;n tisular del Glut-10. Este transportador se encuentra en mayor concentraci&oacute;n en el h&iacute;gado (adulto y fetal) y el p&aacute;ncreas, m&uacute;sculo card&iacute;aco, pulm&oacute;n, cerebro (adulto y fetal), m&uacute;sculo esquel&eacute;tico, placenta y ri&ntilde;&oacute;n<SUP>41,42</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 11 (SLC2A11): ¿Otro transportador de fructosa?</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Este es otro nuevo miembro de la Familia SLC2A aislado en el a&ntilde;o 2001 por Sasaki y cols. Se ha determinado que el Glut 5 es el pariente m&aacute;s cercano de este transportador con el que comparte un 41,7% de homolog&iacute;a. El gen del Glut 11 humano consta de 12 exones de 29 Kb de extensi&oacute;n que se localiza en el cromosoma 22 (22q11.2, y 20 MB de extensi&oacute;n)<SUP>43</SUP>. En seres humanos el transcripto de este gen es de 7,2 Kb de longitud y se ha conseguido solo en m&uacute;sculo esquel&eacute;tico y card&iacute;aco y del cual se han descrito 3 tipos de variantes: La primera es causada por la existencia de tres exones de inicio diferentes (SLC2A a, b y c). La segunda variaci&oacute;n se debe a un salto en la transcripci&oacute;n del primer ex&oacute;n 6 y la tercera debido a una secuencia prematura de terminaci&oacute;n entre los exones 8 y 9. Las dos &uacute;ltimas variaciones representan formas truncadas de los transcriptos sin significado biol&oacute;gico hasta el momento<SUP>44</SUP>. La transfecci&oacute;n de c&eacute;lulas COS-7 con cADN del Glut 11 ha demostrado aumentar la capacidad de transporte de glucosa de estas c&eacute;lulas, sin embargo, un dato de inter&eacute;s, es que a diferencia del Glut 4 la actividad del transporte de glucosa del Glut 11 es inhibida en gran medida por la fructosa, lo que lleva a pensar que este es un transportador para fructosa con baja afinidad para la glucosa<SUP>43,44</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 12 (SLC-2A12): ¿El elusivo hermano menor del Glut-4?</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>Para el momento de finalizar esta publicaci&oacute;n, un equipo de investigadores de la Universidad de Melbourne, Australia, report&oacute; la identificaci&oacute;n de un nuevo transportador para glucosa, el Glut 12. Este transportador fue hallado en c&eacute;lulas de c&aacute;ncer de mama MCF-7 mediante cotejo por homolog&iacute;a con el Glut 4. El cADN de este Glut codifica una prote&iacute;na de 617 amino&aacute;cidos que posee las caracter&iacute;sticas esenciales de los Glut. Si se logra confirmar este hallazgo estar&iacute;amos en presencia del Glut de mayor tama&ntilde;o<SUP>45</SUP>. </FONT></P>     <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El grado de homolog&iacute;a de este transportador con el Glut 4 es del 29 % y con el Glut 10 comparte alrededor del 40% de homolog&iacute;a. Al igual que este &uacute;ltimo, el Glut 12 presenta un asa extracelular de gran tama&ntilde;o entre las &#945; h&eacute;lices transmembrana 9 y 10. Estudios recientes de inmunofluorescencia han sugerido que en ausencia de insulina el Glut 12 se localiza en la regi&oacute;n perinuclear de las c&eacute;lulas MCF-7. El inmunobloting ha puesto en evidencia la expresi&oacute;n del Glut 12 en m&uacute;sculo esquel&eacute;tico, tejido adiposo e intestino delgado. Este hecho ha planteado la hip&oacute;tesis que este transportador representa el elusivo segundo sistema de transporte sensible a la insulina que se encuentra en c&eacute;lulas musculares, ya que su ARNm se ha encontrado en m&uacute;sculo as&iacute; como en pr&oacute;stata<SUP>3,45</SUP>. </FONT>   </P> <B>    ]]></body>
<body><![CDATA[<P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 13 (SLC-2A13): ¿Un transportador de mioinositol dentro de la clasificaci&oacute;n de los Glut´s?</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>El Glut-13 &oacute; transportador de H+/Inositol codifica una prote&iacute;na transportadora de membrana de 629 amino&aacute;cidos con una analog&iacute;a del 35 % con el Glut 6 y que se expresa fuertemente en c&eacute;lulas de la gl&iacute;a y en algunas neuronas con la capacidad de transportar mioinositol y glucosa cuando se encuentra a una alta concentraci&oacute;n. El inositol y sus derivados fosforilados (Fosfoinosit&oacute;sidos) juegan funci&oacute;n importante como osmolitos y como segundos mensajeros en la regulaci&oacute;n de la exo y endocitosis de ves&iacute;culas. La expresi&oacute;n de este transportador en ovocitos de <I>Xenopus  laevis</I> ha demostrado que la actividad de transporte es casi exclusiva para el mioinositol y algunos de sus is&oacute;meros con una Km de 100 mM y su expresi&oacute;n preferencial en el S.N.C hace pensar que su principal papel est&eacute; en la regulaci&oacute;n de estos metabolitos a nivel cerebral<SUP>46</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">GLUT 14 (SLC-2A14): La frontera se hace cada d&iacute;a m&aacute;s lejana</font></P> </B>    <P ALIGN="JUSTIFY"><FONT face="Verdana" SIZE=2>En el a&ntilde;o 2002 Wu y cols. del instituto Burnham en La Jolla, California, U.S.A  identificaron lo que representa el &uacute;ltimo miembro de transportadores de esta familia ubicado en el cromosoma 12p13.3 (con 17.1 MB de extensi&oacute;n), y unas 10 MB corriente arriba del gen del Glut 3 con el cual comparte un importante parecido. Hasta ahora se hab&iacute;a cre&iacute;do que el Glut 14 era un Pseudogen (igual que el Glut 6 en sus principios) resultado de la duplicaci&oacute;n del gen del Glut 3. El gen del Glut 14 posee dos formas: una corta que consiste en 10 exones y produce un transcripto de 497 amino&aacute;cidos que es similar al Glut 3 en un 94,5%. La segunda forma, llamada forma larga codifica una proteina de 520 amino&aacute;cidos que difiere de la anterior en el extremo amino-terminal. Ambas forman poseen como todos los Glut´s 12 &#945;-h&eacute;lices transmembrana y los dominios relacionados con el transporte de glucosa. Sin embargo, en contraste con el Glut 3 este transportador se expresa fundamentalmente en los test&iacute;culos donde su ARNm se encuentra en una concentraci&oacute;n 4 veces mayor que el Glut 3<SUP>47</SUP>. </FONT></P> <B>    <P ALIGN="JUSTIFY"><font face="Verdana" size="2">Referencias</font></P> </B>     <!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">1.</FONT><font face="Verdana" size="2"> Zierler, K. 1999 Whole body glucose metabolism. Am J Physiol  276: E409-26.</font> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592950&pid=S0798-0264200700020000200001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">2.</FONT><font face="Verdana" size="2"> Barrett, M.P., Walmsley, A.R., and Gould, G.W. 1999 Structure and function of facilitative sugar transporters. Curr Opin Cell Biol  11: 496-502.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592951&pid=S0798-0264200700020000200002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">3. Joost HG; Thorens B. The extended GLUT-family of sugar/polyol transport facilitators: nomenclature, sequence characteristics, and potential function of its novel members. Mol Membr Biol 2001 Oct-Dec; 18(4):247-56.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592952&pid=S0798-0264200700020000200003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">4. Silverman M: Structure and function of hexose transporters. Annu Rev Biochem 60:757-794, 1991.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592953&pid=S0798-0264200700020000200004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">5. Thorens B: Facilitated glucose transporters in epithelial cells. Annu Rev Physiol 55:591-608, 1993.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592954&pid=S0798-0264200700020000200005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">6. Wright EM: The intestinal Na+/glucose cotransporter. Annu Rev Physio 55:575-589, 1993.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592955&pid=S0798-0264200700020000200006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">7. Wright, E.M., Loo, D.D., Panayotova-Heiermann, M., Hirayama, B.A., Turk, E., Eskandari, S., and Lam, J.T. 1998 Structure and function of the Na<SUP>+</SUP>/glucose cotransporter. Acta Physiol Scan Suppl  643: 257-64.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592956&pid=S0798-0264200700020000200007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">8. Kellett, G.L. 2001 The facilitated component of intestinal glucose absorption. J Physiol  531: 585-95.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592957&pid=S0798-0264200700020000200008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">9. Wright, E.M. 2001 Renal Na<SUP>(+)</SUP>-glucose cotransporter. Am J Physiol Renal Physiol  280: F10-8.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592958&pid=S0798-0264200700020000200009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">10. Wells RG, Mohandas TK, Hediger MA. Localization of the Na+/glucose cotransporter gene SGLT2 to human chromosome 16 close to the centromere. Genomics. 1993 Sep;17(3):787-9.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592959&pid=S0798-0264200700020000200010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">11. Roll P, Massacrier A, Pereira S, Robaglia-Schlupp A, Cau P, Szepetowski P. New human sodium/glucose cotransporter gene (KST1): identification, characterization, and mutation analysis in ICCA (infantile convulsions and choreoathetosis) and BFIC (benign familial infantile convulsions) families. Gene, 2002; 285(1-2):141-8.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592960&pid=S0798-0264200700020000200011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">12. Shigeki Tazawaa, Tokuhisa Yamatoa, Hideki Fujikuraa, Masahiro Hiratochia, Fumiaki Itoha, Masaki Tomaea, Yukiko Takemuraa, Hidetoshi Maruyamab, Tomoyasu Sugiyamac, Ai Wakamatsuc, Takao Isogaic, Masayuki Isajia. SLC5A9/SGLT4, a new Na+-dependent glucose transporter, is an essential transporter for mannose, 1,5-anhydro-D-glucitol, and fructose. Life Sciences 76 (2005) 1039–1050.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592961&pid=S0798-0264200700020000200012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">13. Wright E, Turk E. The sodium/glucose co-transport family SLC5. European Journal of physiology. Vol 447, 5 feb 2004.  Pag 813 – 815.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592962&pid=S0798-0264200700020000200013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">14. Phay, J.E., Hussain, H.B., and Moley, J.F. 2000 Strategy for identification of novel glucose transporter family members by using internet-based genomic databases. Surgery  128: 946-51.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592963&pid=S0798-0264200700020000200014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">15. Mueckler M, Caruso C, Baldwin SA, P&aacute;nico M, Blench I, Morris HR.  Sequence and structure of a human glucose transporter.  Science. 1985; 229: 941-5.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592964&pid=S0798-0264200700020000200015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">16. Fukumoto H, Seino S, Imura H, Seino Y, Eddy RL, Fukushima Y, Byers MG, Shows TB, Bell GI. 1998. Sequence, tissue distribution, and chromosomal localization of mRNA enconding a human glucose transporter – like protein.  Proc Natl Acad Sci USA 85: 5434 - 5438. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592965&pid=S0798-0264200700020000200016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">17. Thorens B, Sarkar HK, Kaback HR, Lodish HF 1988 Cloning and functional expression in bacteria of a novel glucose transporter present in liver, intestine, kidney and beta pancreatic islet cells. Cell 55:281-290.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592966&pid=S0798-0264200700020000200017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">18. Johnson JH, Newgard CB, Milburn JL, Lodish HF, Thorens B 1990 The high Km glucose transporter of islets of Langerhans is functionally similar to the low affinity transporter of liver and has an identical primary sequence. J Biol Chem 265:6548-6551.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592967&pid=S0798-0264200700020000200018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">19. Matschinsky FM 1990 Glucokinase as glucose sensor and metabolic signal generator in pancreatic beta-cells and hepatocytes. Diabetes 39647-652.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592968&pid=S0798-0264200700020000200019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">20. GJ Mantych, DE James, HD Chung, and SU Devaskar Cellular localization and characterization of Glut 3 glucose transporter isoform in human brain Endocrinology, Sep 1992; 131: 1270 – 1278.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592969&pid=S0798-0264200700020000200020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">21. Katz, E.B., A.E. Stenbit, K. Hatton, R. DePinho and M.J. Charron.  Cardiac and adipose tissue abnormalities but not diabetes in GLUT4 deficient mice.  Nature 377:151-155 (1995). </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592970&pid=S0798-0264200700020000200021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">22. Tsao, T.-S., R. Burcelin, E.B. Katz, L. Huang and M.J. Charron.  Enhanced insulin action due to targeted GLUT4 overexpression exclusively in muscle.  Diabetes 45:28-36 (1996). </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592971&pid=S0798-0264200700020000200022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">23. Stenbit, A.E., R. Burcelin, E.B. Katz, T.-S. Tsao, N. Gautier, M.J. Charron and Y. Le Marchand-Brustel.  Diverse effects of Glut4 ablation on glucose uptake and glycogen synthesis in red and white skeletal muscle.  J. Clin. Invest. 98:629-634 (1996).</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592972&pid=S0798-0264200700020000200023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">24. Xing, A.Y., J.C. Challier, M. Cauzac, M.J. Charron, J. Girard and S. Hauguel De Mouzon.  Unexpected expression of GLUT4 glucose transporter in villous stromal cells of human placenta.  J. Clin. Emb. &amp; Med. 83:4097-4101 (1998). </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592973&pid=S0798-0264200700020000200024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">25. Shepherd PR, Kahn BB: Glucose transporters and insulin action. New Eng J Med 341:248-257, 1999.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592974&pid=S0798-0264200700020000200025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">26. Tsao, T.-S., A.E. Stenbit, J. Li, K.L. Houseknecht, J.R. Zierath, E.B. Katz and M.J. Charron.  Muscle-specific transgenic complementation of GLUT4-deficient mice: effects on glucose but not lipid metabolism.  J. Clin. Invest.100:671-677 (1997).</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592975&pid=S0798-0264200700020000200026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">27. Stenbit, A.E., T.-S. Tsao, J. Li, R. Burcelin, D. Geenen, S.M. Factor, K.L. Houseknecht, E.B. Katz and M.J. Charron.  GLUT4 heterozygous knockout mice develop muscle insulin resistance and diabetes.  Nature Medicine 3:1096-1101 (1997).</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592976&pid=S0798-0264200700020000200027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">28. Charron, M.J., E.B. Katz and J.R. Zierath.  Metabolic and molecular consequences of modifying GLUT4 expression in skeletal muscle.  Bioc. Soc. Trans. 25:963-968 (1997).</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592977&pid=S0798-0264200700020000200028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">29. Rossetti, L., A.E. Stenbit, L. Cheng, N. Barzali, E.B. Katz and M.J. Charron.  Peripheral but not hepatic insulin resistance in mice with one disrupted allele of the glucose transporter type 4 (GLUT4 gene).  J. Clin. Invest. 100:1831-1839 (1997). </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592978&pid=S0798-0264200700020000200029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">30. Zierath, J.R., T.-S. Tsao, A.E. Stenbit, J.W. Ryder, D. Galuska and M.J. Charron.  Restoration of hypoxia-stimulated glucose uptake in GLUT4-deficient muscles by muscle-specific GLUT4 transgenic complementation.  J. Biol. Chem. 273:20910-20915 (1998). </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592979&pid=S0798-0264200700020000200030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">31. Ryder, J.W., Y. Kawano, D. Galuska, R. Fahlman, H. Wallberg-Henriksson, M.J. Charron and J.R. Zierath.  Post-exercise glucose uptake and glycogen synthesis in skeletal muscle from GLUT4-deficient mice.  Faseb J. 13:2246-2256 (1999). </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592980&pid=S0798-0264200700020000200031&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">32. Elmendorf, J.S., and Pessin, J.E. 1999 Insulin signaling regulating the trafficking and plasma membrane fusion of GLUT4-containing intracellular vesicles. Exp Cell Res  253: 55-62. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592981&pid=S0798-0264200700020000200032&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">33. Chiang, S.H., Baumann, C.A., Kanzaki, M., Thurmond, D.C., Watson, R.T., Neudauer, C.L., Macara, I.G., Pessin, J.E., and Saltiel, A.R.  2001 Insulin-stimulated GLUT4 translocation requires the CAP-dependent activation of TC10. Nature 410: 944-8. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592982&pid=S0798-0264200700020000200033&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">34. Davidson NO, Hausman ML, Ifkovits CA, Buse JB, Gould GW, Burant CF. Human intestinal glucose transporter. Bell GI 1992. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592983&pid=S0798-0264200700020000200034&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">35. Lisinski I; Schurmann A; Joost HG; Cushman SW; Al-Hasani H. Targeting of GLUT6 (formerly GLUT9) and GLUT8 in rat adipose cells. Biochem J 2001 Sep 1;358(Pt 2):517-22.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592984&pid=S0798-0264200700020000200035&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">36. Doege H, Schurmann A, Bahrenberg G, Brauers A, Joost HG. GLUT8, a novel member of the sugar transport facilitator family with glucose transport activity. J Biol Chem 2000.  275:16275–16280.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592985&pid=S0798-0264200700020000200036&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">37. Scheepers A, Doege H, Joost HG, Schurmann A. Mouse GLUT8: genomic organization and regulation of expression in 3T3-L1 adipocytes by glucose. Biochem Biophys Res Commun 2001. 288:969–974.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592986&pid=S0798-0264200700020000200037&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">38. Carayannopoulos, M.O., Chi, M.M., Cui, Y., Pingsterhaus, J.M., McKnight, R.A., Mueckler, M., Devaskar, S.U., and Moley, K.H. 2000 GLUT8 is a glucose transporter responsible for insulin-stimulated glucose uptake in the blastocyst. Proc Natl Acad Sci USA  97: 7313-8. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592987&pid=S0798-0264200700020000200038&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">39. Phay JE; Hussain HB; Moley JF. Cloning and expression analysis of a novel member of the facilitative glucose transporter family, SLC2A9 (GLUT9). Genomics 2000 Jun 1;66(2):217-20. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592988&pid=S0798-0264200700020000200039&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">40. Doege H; Bocianski A; Joost HG; Schurmann A. Activity and genomic organization of human glucose transporter 9 (GLUT9), a novel member of the family of sugar-transport facilitators predominantly expressed in brain and leucocytes. Biochem J 2000 Sep 15;350 Pt 3:771-6.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592989&pid=S0798-0264200700020000200040&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">41. Dawson PA; Mychaleckyj JC; Fossey SC; Mihic SJ; Craddock AL; Bowden DW. Sequence and functional analysis of GLUT10: a glucose transporter in the Type 2 diabetes-linked region of chromosome 20q12-13.1. Mol Genet Metab 2001 Sep-Oct;74(1-2):186-99.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592990&pid=S0798-0264200700020000200041&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">42. McVie-Wylie, A.J., Lamson, D.R., and Chen, Y.T.  2001 Molecular cloning of a novel member of the GLUT family of transporters, SLC2a10 (GLUT10), localized on chromosome 20q13.1: a candidate gene for NIDDM susceptibility.Genomics 72: 1137.</FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592991&pid=S0798-0264200700020000200042&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">43. Sasaki T; Minoshima S; Shiohama A; Shintani A; Shimizu A; Asakawa S; Kawasaki K; Shimizu N.  Molecular cloning of a member of the facilitative glucose transporter gene family GLUT11 (SLC2A11) and identification of transcription variants. Biochem Biophys Res Commun 2001 Dec 21;289(5):1218-24.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592992&pid=S0798-0264200700020000200043&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">44. Doege H; Bocianski A; Scheepers A; Axer H; Eckel J; Joost HG; Schurmann A . Characterization of human glucose transporter (GLUT) 11 (encoded by SLC2A11), a novel sugar-transport facilitator specifically expressed in heart and skeletal muscle. Biochem J 2001 Oct 15;359(Pt 2):443-9.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592993&pid=S0798-0264200700020000200044&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">45. Suzanne Rogers, Maria L. Macheda, Susan E. Docherty, Maynard D. Carty, Michael A. Henderson, Walter C. Soeller, E. Michael Gibbs, David E. James, and James D. Best. Identification of a novel glucose transporter-like protein GLUT-12. 2002:282,3. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592994&pid=S0798-0264200700020000200045&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">46. Uldry M, Ibberson M, Horisberger JD, Chatton JY, Riederer BM, Thorens B. Identification of a mammalian H(+)-myo-inositol symporter expressed predominantly in the brain.EMBO J. 2001 Aug 15;20(16):4467-77. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592995&pid=S0798-0264200700020000200046&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">47. Wu X, Freeze HH. GLUT14, a duplicon of GLUT3, is specifically expressed in testis as alternative splice forms. Genomics. 2002 Dec; 80(6):553-7. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592996&pid=S0798-0264200700020000200047&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">48. Baumann, C.A., Brady, M.J., and Saltiel, A.R.  2001 Activation of glycogen synthase by insulin in 3T3-L1 adipocytes involves c-Cbl-associating protein (CA))-dependent and CAP-independent signaling pathways. J Biol Chem  276: 6065-8.</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592997&pid=S0798-0264200700020000200048&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">49. Tsao, T.-S., E.B. Katz, D. Pommer and M.J. Charron.  Amelioration of insulin resistance but not hyperinsulinemia in obese mice overexpressing GLUT4 selectively in skeletal muscle.  Metabolism 49:340-346 (2000)</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592998&pid=S0798-0264200700020000200049&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">50. Li, J., K.L. Houseknecht, A.E. Stenbit, E.B. Katz and M.J. Charron.  Reduced glucose uptake precedes insulin signaling defects in adipocytes from heterozygous GLUT4 (+/-) knockout mice.  Faseb J. 14:1117-1125 (2000).</FONT>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=592999&pid=S0798-0264200700020000200050&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">51. Stenbit, A.E., E.B. Katz, J.C. Chatham, D.L. Geenen, S.M. Factor, R.G. Weiss, T.-S. Tsao, A. Malhotra, V.P. Chacko, C. Ocampo, L.A. Jelicks and M.J. Charron.  Preservation of glucose metabolism in hypertrophic GLUT4 null hearts.  Am. J. Phys.279:H313-H318 (2000). </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=593000&pid=S0798-0264200700020000200051&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P ALIGN="JUSTIFY"><FONT face="Verdana" size=2 color="#000000">52. Qiang Li, Andrei Manolescu, Mabel Ritzel, Sylvia Yao, Melissa Slugoski, James D. Young, Xing-Zhen Chen, and Chris I. Cheeseman.  Cloning and functional characterization of the human GLUT7 isoform SLC2A7 from the small intestine, 2004. Am J Physiol Gastrointest Liver Physiol 287: G236–G242. </FONT> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=593001&pid=S0798-0264200700020000200052&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Zierler]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Whole body glucose metabolism]]></article-title>
<source><![CDATA[Am J Physiol]]></source>
<year>1999</year>
<volume>276</volume>
<page-range>E409-26</page-range></nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barrett]]></surname>
<given-names><![CDATA[M.P.]]></given-names>
</name>
<name>
<surname><![CDATA[Walmsley]]></surname>
<given-names><![CDATA[A.R.]]></given-names>
</name>
<name>
<surname><![CDATA[Gould]]></surname>
<given-names><![CDATA[G.W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Structure and function of facilitative sugar transporters]]></article-title>
<source><![CDATA[Curr Opin Cell Biol]]></source>
<year>1999</year>
<volume>11</volume>
<page-range>496-502</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Joost]]></surname>
<given-names><![CDATA[HG]]></given-names>
</name>
<name>
<surname><![CDATA[Thorens]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The extended GLUT-family of sugar/polyol transport facilitators: nomenclature, sequence characteristics, and potential function of its novel members]]></article-title>
<source><![CDATA[Mol Membr Biol]]></source>
<year></year>
<volume>18</volume>
<numero>4</numero>
<issue>4</issue>
<page-range>247-56</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Silverman]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Structure and function of hexose transporters]]></article-title>
<source><![CDATA[Annu Rev Biochem]]></source>
<year>1991</year>
<volume>60</volume>
<page-range>757-794</page-range></nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Thorens]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Facilitated glucose transporters in epithelial cells]]></article-title>
<source><![CDATA[Annu Rev Physiol]]></source>
<year>1993</year>
<volume>55</volume>
<page-range>591-608</page-range></nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wright]]></surname>
<given-names><![CDATA[EM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The intestinal Na+/glucose cotransporter]]></article-title>
<source><![CDATA[Annu Rev Physio]]></source>
<year>1993</year>
<volume>55</volume>
<page-range>575-589</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wright]]></surname>
<given-names><![CDATA[E.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Loo]]></surname>
<given-names><![CDATA[D.D.]]></given-names>
</name>
<name>
<surname><![CDATA[Panayotova-Heiermann]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Hirayama]]></surname>
<given-names><![CDATA[B.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Turk]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Eskandari]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Lam]]></surname>
<given-names><![CDATA[J.T.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Structure and function of the Na+/glucose cotransporter]]></article-title>
<source><![CDATA[Acta Physiol Scan Suppl]]></source>
<year>1998</year>
<volume>643</volume>
<page-range>257-64</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Kellett]]></surname>
<given-names><![CDATA[G.L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The facilitated component of intestinal glucose absorption]]></article-title>
<source><![CDATA[J Physiol]]></source>
<year>2001</year>
<volume>531</volume>
<page-range>585-95</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wright]]></surname>
<given-names><![CDATA[E.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Renal Na(+)-glucose cotransporter]]></article-title>
<source><![CDATA[Am J Physiol Renal Physiol]]></source>
<year>2001</year>
<volume>280</volume>
<page-range>F10-8</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wells]]></surname>
<given-names><![CDATA[RG]]></given-names>
</name>
<name>
<surname><![CDATA[Mohandas]]></surname>
<given-names><![CDATA[TK]]></given-names>
</name>
<name>
<surname><![CDATA[Hediger]]></surname>
<given-names><![CDATA[MA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Localization of the Na+/glucose cotransporter gene SGLT2 to human chromosome 16 close to the centromere]]></article-title>
<source><![CDATA[Genomics.]]></source>
<year>1993</year>
<volume>17</volume>
<numero>3</numero>
<issue>3</issue>
<page-range>787-9</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Roll]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Massacrier]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Pereira]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Robaglia-Schlupp]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Cau]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Szepetowski]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[New human sodium/glucose cotransporter gene (KST1): identification, characterization, and mutation analysis in ICCA (infantile convulsions and choreoathetosis) and BFIC (benign familial infantile convulsions) families]]></article-title>
<source><![CDATA[Gene,]]></source>
<year>2002</year>
<volume>285</volume>
<numero>1-2</numero>
<issue>1-2</issue>
<page-range>141-8</page-range></nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Shigeki]]></surname>
<given-names><![CDATA[Tazawaa]]></given-names>
</name>
<name>
<surname><![CDATA[Tokuhisa]]></surname>
<given-names><![CDATA[Yamatoa]]></given-names>
</name>
<name>
<surname><![CDATA[Hideki]]></surname>
<given-names><![CDATA[Fujikuraa]]></given-names>
</name>
<name>
<surname><![CDATA[Masahiro]]></surname>
<given-names><![CDATA[Hiratochia]]></given-names>
</name>
<name>
<surname><![CDATA[Fumiaki]]></surname>
<given-names><![CDATA[Itoha]]></given-names>
</name>
<name>
<surname><![CDATA[Masaki]]></surname>
<given-names><![CDATA[Tomaea]]></given-names>
</name>
<name>
<surname><![CDATA[Yukiko]]></surname>
<given-names><![CDATA[Takemuraa]]></given-names>
</name>
<name>
<surname><![CDATA[Hidetoshi]]></surname>
<given-names><![CDATA[Maruyamab]]></given-names>
</name>
<name>
<surname><![CDATA[Tomoyasu]]></surname>
<given-names><![CDATA[Sugiyamac]]></given-names>
</name>
<name>
<surname><![CDATA[Ai]]></surname>
<given-names><![CDATA[Wakamatsuc]]></given-names>
</name>
<name>
<surname><![CDATA[Takao]]></surname>
<given-names><![CDATA[Isogaic]]></given-names>
</name>
<name>
<surname><![CDATA[Masayuki]]></surname>
<given-names><![CDATA[Isajia]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[SLC5A9/SGLT4, a new Na+-dependent glucose transporter, is an essential transporter for mannose, 1,5-anhydro-D-glucitol, and fructose]]></article-title>
<source><![CDATA[Life Sciences,]]></source>
<year></year>
<volume>76</volume>
<numero>2005</numero>
<issue>2005</issue>
<page-range>1039-1050</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wright]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Turk]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The sodium/glucose co-transport family SLC5]]></article-title>
<source><![CDATA[European Journal of physiology]]></source>
<year></year>
<volume>447</volume>
<page-range>813 - 815</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Phay]]></surname>
<given-names><![CDATA[J.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Hussain]]></surname>
<given-names><![CDATA[H.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Moley]]></surname>
<given-names><![CDATA[J.F]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Strategy for identification of novel glucose transporter family members by using internet-based genomic databases]]></article-title>
<source><![CDATA[Surgery]]></source>
<year>2000</year>
<volume>128</volume>
<page-range>946-51</page-range></nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Mueckler]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Caruso]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Baldwin]]></surname>
<given-names><![CDATA[SA]]></given-names>
</name>
<name>
<surname><![CDATA[Pánico]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Blench]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Morris]]></surname>
<given-names><![CDATA[HR]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sequence and structure of a human glucose transporter]]></article-title>
<source><![CDATA[Science.]]></source>
<year>1985</year>
<volume>229</volume>
<page-range>941-5</page-range></nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Fukumoto]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Seino]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Imura]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Seino]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Eddy]]></surname>
<given-names><![CDATA[RL]]></given-names>
</name>
<name>
<surname><![CDATA[Fukushima]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Byers]]></surname>
<given-names><![CDATA[MG]]></given-names>
</name>
<name>
<surname><![CDATA[Shows]]></surname>
<given-names><![CDATA[TB]]></given-names>
</name>
<name>
<surname><![CDATA[Bell]]></surname>
<given-names><![CDATA[GI]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sequence, tissue distribution, and chromosomal localization of mRNA enconding a human glucose transporter - like protein]]></article-title>
<source><![CDATA[Proc Natl Acad Sci USA]]></source>
<year>1998</year>
<volume>85</volume>
<page-range>5434 - 5438</page-range></nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Thorens]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Sarkar]]></surname>
<given-names><![CDATA[HK]]></given-names>
</name>
<name>
<surname><![CDATA[Kaback]]></surname>
<given-names><![CDATA[HR]]></given-names>
</name>
<name>
<surname><![CDATA[Lodish]]></surname>
<given-names><![CDATA[HF]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cloning and functional expression in bacteria of a novel glucose transporter present in liver, intestine, kidney and beta pancreatic islet cells]]></article-title>
<source><![CDATA[Cell]]></source>
<year>1988</year>
<volume>55</volume>
<page-range>281-290</page-range></nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Johnson]]></surname>
<given-names><![CDATA[JH]]></given-names>
</name>
<name>
<surname><![CDATA[Newgard]]></surname>
<given-names><![CDATA[CB]]></given-names>
</name>
<name>
<surname><![CDATA[Milburn]]></surname>
<given-names><![CDATA[JL]]></given-names>
</name>
<name>
<surname><![CDATA[Lodish]]></surname>
<given-names><![CDATA[HF]]></given-names>
</name>
<name>
<surname><![CDATA[Thorens]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The high Km glucose transporter of islets of Langerhans is functionally similar to the low affinity transporter of liver and has an identical primary sequence]]></article-title>
<source><![CDATA[J Biol Chem.]]></source>
<year>1990</year>
<volume>265</volume>
<page-range>6548-6551</page-range></nlm-citation>
</ref>
<ref id="B19">
<label>19</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Matschinsky]]></surname>
<given-names><![CDATA[FM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Glucokinase as glucose sensor and metabolic signal generator in pancreatic beta-cells and hepatocytes]]></article-title>
<source><![CDATA[Diabetes]]></source>
<year>1990</year>
<page-range>39647-652</page-range></nlm-citation>
</ref>
<ref id="B20">
<label>20</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[GJ]]></surname>
<given-names><![CDATA[Mantych]]></given-names>
</name>
<name>
<surname><![CDATA[DE]]></surname>
<given-names><![CDATA[James]]></given-names>
</name>
<name>
<surname><![CDATA[HD]]></surname>
<given-names><![CDATA[Chung]]></given-names>
</name>
<name>
<surname><![CDATA[and]]></surname>
<given-names><![CDATA[SU Devaskar]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cellular localization and characterization of Glut 3 glucose transporter isoform in human brain]]></article-title>
<source><![CDATA[Endocrinology, Sep]]></source>
<year>1992</year>
<volume>131</volume>
<page-range>1270 - 1278</page-range></nlm-citation>
</ref>
<ref id="B21">
<label>21</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Hatton]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[DePinho]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cardiac and adipose tissue abnormalities but not diabetes in GLUT4 deficient mice]]></article-title>
<source><![CDATA[Nature]]></source>
<year>1995</year>
<volume>377</volume>
<page-range>151-155</page-range></nlm-citation>
</ref>
<ref id="B22">
<label>22</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tsao]]></surname>
<given-names><![CDATA[T.-S.]]></given-names>
</name>
<name>
<surname><![CDATA[Burcelin]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Huang]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Enhanced insulin action due to targeted GLUT4 overexpression exclusively in muscle]]></article-title>
<source><![CDATA[Diabetes]]></source>
<year>1996</year>
<volume>45</volume>
<page-range>28-36</page-range></nlm-citation>
</ref>
<ref id="B23">
<label>23</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Burcelin]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Tsao]]></surname>
<given-names><![CDATA[T.-S.]]></given-names>
</name>
<name>
<surname><![CDATA[Gautier]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Le Marchand-Brustel]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Diverse effects of Glut4 ablation on glucose uptake and glycogen synthesis in red and white skeletal muscle]]></article-title>
<source><![CDATA[J. Clin. Invest.]]></source>
<year>1996</year>
<volume>98</volume>
<page-range>629-634</page-range></nlm-citation>
</ref>
<ref id="B24">
<label>24</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Xing]]></surname>
<given-names><![CDATA[A.Y.]]></given-names>
</name>
<name>
<surname><![CDATA[Challier]]></surname>
<given-names><![CDATA[J.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Cauzac]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Girard]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Hauguel De Mouzon]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Unexpected expression of GLUT4 glucose transporter in villous stromal cells of human placenta]]></article-title>
<source><![CDATA[J. Clin. Emb. & Med.]]></source>
<year>1998</year>
<volume>83</volume>
<page-range>4097-4101</page-range></nlm-citation>
</ref>
<ref id="B25">
<label>25</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Shepherd]]></surname>
<given-names><![CDATA[PR]]></given-names>
</name>
<name>
<surname><![CDATA[Kahn]]></surname>
<given-names><![CDATA[BB]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Glucose transporters and insulin action]]></article-title>
<source><![CDATA[New Eng J Med,]]></source>
<year>1999</year>
<volume>341</volume>
<page-range>248-257</page-range></nlm-citation>
</ref>
<ref id="B26">
<label>26</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tsao]]></surname>
<given-names><![CDATA[T.-S.]]></given-names>
</name>
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Li]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Houseknecht]]></surname>
<given-names><![CDATA[K.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Zierath]]></surname>
<given-names><![CDATA[J.R.]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Muscle-specific transgenic complementation of GLUT4-deficient mice: effects on glucose but not lipid metabolism]]></article-title>
<source><![CDATA[J. Clin. Invest.]]></source>
<year>1997</year>
<volume>100</volume>
<page-range>671-677</page-range></nlm-citation>
</ref>
<ref id="B27">
<label>27</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Tsao]]></surname>
<given-names><![CDATA[T.-S]]></given-names>
</name>
<name>
<surname><![CDATA[Li]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Burcelin]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Geenen]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Factor]]></surname>
<given-names><![CDATA[S.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Houseknecht]]></surname>
<given-names><![CDATA[K.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[GLUT4 heterozygous knockout mice develop muscle insulin resistance and diabetes]]></article-title>
<source><![CDATA[Nature Medicine]]></source>
<year>1997</year>
<volume>3</volume>
<page-range>1096-1101</page-range></nlm-citation>
</ref>
<ref id="B28">
<label>28</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B]]></given-names>
</name>
<name>
<surname><![CDATA[Zierath]]></surname>
<given-names><![CDATA[J.R.,]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Metabolic and molecular consequences of modifying GLUT4 expression in skeletal muscle]]></article-title>
<source><![CDATA[Bioc. Soc. Trans.]]></source>
<year>1997</year>
<volume>25</volume>
<page-range>963-968</page-range></nlm-citation>
</ref>
<ref id="B29">
<label>29</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Rossetti]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Cheng]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
<name>
<surname><![CDATA[Barzali]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Peripheral but not hepatic insulin resistance in mice with one disrupted allele of the glucose transporter type 4 (GLUT4 gene)]]></article-title>
<source><![CDATA[J. Clin. Invest.]]></source>
<year>1997</year>
<volume>100</volume>
<page-range>1831-1839</page-range></nlm-citation>
</ref>
<ref id="B30">
<label>30</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Zierath]]></surname>
<given-names><![CDATA[J.R.]]></given-names>
</name>
<name>
<surname><![CDATA[Tsao]]></surname>
<given-names><![CDATA[T.-S.]]></given-names>
</name>
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Ryder]]></surname>
<given-names><![CDATA[J.W.]]></given-names>
</name>
<name>
<surname><![CDATA[Galuska]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Restoration of hypoxia-stimulated glucose uptake in GLUT4-deficient muscles by muscle-specific GLUT4 transgenic complementation]]></article-title>
<source><![CDATA[J. Biol. Chem.]]></source>
<year>1998</year>
<volume>273</volume>
<page-range>20910-20915</page-range></nlm-citation>
</ref>
<ref id="B31">
<label>31</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ryder]]></surname>
<given-names><![CDATA[J.W.]]></given-names>
</name>
<name>
<surname><![CDATA[Kawano]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Galuska]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Fahlman]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[Wallberg-Henriksson]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Zierath]]></surname>
<given-names><![CDATA[J.R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Post-exercise glucose uptake and glycogen synthesis in skeletal muscle from GLUT4-deficient mice]]></article-title>
<source><![CDATA[Faseb J.]]></source>
<year>1999</year>
<volume>13</volume>
<page-range>2246-2256</page-range></nlm-citation>
</ref>
<ref id="B32">
<label>32</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Elmendorf]]></surname>
<given-names><![CDATA[J.S.]]></given-names>
</name>
<name>
<surname><![CDATA[Pessin]]></surname>
<given-names><![CDATA[J.E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Insulin signaling regulating the trafficking and plasma membrane fusion of GLUT4-containing intracellular vesicles]]></article-title>
<source><![CDATA[Exp Cell Res]]></source>
<year>1999</year>
<volume>253</volume>
<page-range>55-62</page-range></nlm-citation>
</ref>
<ref id="B33">
<label>33</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Chiang]]></surname>
<given-names><![CDATA[S.H.]]></given-names>
</name>
<name>
<surname><![CDATA[Baumann]]></surname>
<given-names><![CDATA[C.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Kanzaki]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Thurmond]]></surname>
<given-names><![CDATA[D.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Watson]]></surname>
<given-names><![CDATA[R.T.]]></given-names>
</name>
<name>
<surname><![CDATA[Neudauer]]></surname>
<given-names><![CDATA[C.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Macara]]></surname>
<given-names><![CDATA[I.G.]]></given-names>
</name>
<name>
<surname><![CDATA[Pessin]]></surname>
<given-names><![CDATA[J.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Saltiel]]></surname>
<given-names><![CDATA[A.R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Insulin-stimulated GLUT4 translocation requires the CAP-dependent activation of TC10]]></article-title>
<source><![CDATA[Nature]]></source>
<year>2001</year>
<volume>410</volume>
<page-range>944-8</page-range></nlm-citation>
</ref>
<ref id="B34">
<label>34</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Davidson]]></surname>
<given-names><![CDATA[NO]]></given-names>
</name>
<name>
<surname><![CDATA[Hausman]]></surname>
<given-names><![CDATA[ML]]></given-names>
</name>
<name>
<surname><![CDATA[Ifkovits]]></surname>
<given-names><![CDATA[CA]]></given-names>
</name>
<name>
<surname><![CDATA[Buse]]></surname>
<given-names><![CDATA[JB]]></given-names>
</name>
<name>
<surname><![CDATA[Gould]]></surname>
<given-names><![CDATA[GW]]></given-names>
</name>
<name>
<surname><![CDATA[Burant]]></surname>
<given-names><![CDATA[CF]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Human intestinal glucose transporter]]></article-title>
<source><![CDATA[Bell GI]]></source>
<year>1992</year>
</nlm-citation>
</ref>
<ref id="B35">
<label>35</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lisinski]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Schurmann]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Joost]]></surname>
<given-names><![CDATA[HG]]></given-names>
</name>
<name>
<surname><![CDATA[Cushman]]></surname>
<given-names><![CDATA[SW]]></given-names>
</name>
<name>
<surname><![CDATA[Al-Hasani]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Targeting of GLUT6 (formerly GLUT9) and GLUT8 in rat adipose cells]]></article-title>
<source><![CDATA[Biochem J]]></source>
<year></year>
<volume>358</volume>
<numero>Pt 2</numero>
<issue>Pt 2</issue>
<page-range>517-22</page-range></nlm-citation>
</ref>
<ref id="B36">
<label>36</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Doege]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Schurmann]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Bahrenberg]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Brauers]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Joost]]></surname>
<given-names><![CDATA[HG]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[GLUT8, a novel member of the sugar transport facilitator family with glucose transport activity]]></article-title>
<source><![CDATA[J Biol Chem]]></source>
<year>2000</year>
<volume>275</volume>
<page-range>16275-16280</page-range></nlm-citation>
</ref>
<ref id="B37">
<label>37</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Scheepers]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Doege]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Joost]]></surname>
<given-names><![CDATA[HG]]></given-names>
</name>
<name>
<surname><![CDATA[Schurmann]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Mouse GLUT8: genomic organization and regulation of expression in 3T3-L1 adipocytes by glucose]]></article-title>
<source><![CDATA[Biochem Biophys Res Commun]]></source>
<year>2001</year>
<volume>288</volume>
<page-range>969-974</page-range></nlm-citation>
</ref>
<ref id="B38">
<label>38</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Carayannopoulos]]></surname>
<given-names><![CDATA[M.O.]]></given-names>
</name>
<name>
<surname><![CDATA[Chi]]></surname>
<given-names><![CDATA[M.M]]></given-names>
</name>
<name>
<surname><![CDATA[Cui]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Pingsterhaus]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
<name>
<surname><![CDATA[McKnight]]></surname>
<given-names><![CDATA[R.A]]></given-names>
</name>
<name>
<surname><![CDATA[Mueckler]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Devaskar]]></surname>
<given-names><![CDATA[S.U]]></given-names>
</name>
<name>
<surname><![CDATA[Moley]]></surname>
<given-names><![CDATA[K.H.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[GLUT8 is a glucose transporter responsible for insulin-stimulated glucose uptake in the blastocyst]]></article-title>
<source><![CDATA[Proc Natl Acad Sci USA]]></source>
<year>2000</year>
<volume>97</volume>
<page-range>7313-8</page-range></nlm-citation>
</ref>
<ref id="B39">
<label>39</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Phay]]></surname>
<given-names><![CDATA[JE]]></given-names>
</name>
<name>
<surname><![CDATA[Hussain]]></surname>
<given-names><![CDATA[HB]]></given-names>
</name>
<name>
<surname><![CDATA[Moley]]></surname>
<given-names><![CDATA[JF]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cloning and expression analysis of a novel member of the facilitative glucose transporter family, SLC2A9 (GLUT9)]]></article-title>
<source><![CDATA[Genomics]]></source>
<year>2000</year>
<volume>66</volume>
<numero>2</numero>
<issue>2</issue>
<page-range>217-20</page-range></nlm-citation>
</ref>
<ref id="B40">
<label>40</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Doege]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Bocianski]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Joost]]></surname>
<given-names><![CDATA[HG]]></given-names>
</name>
<name>
<surname><![CDATA[Schurmann]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Activity and genomic organization of human glucose transporter 9 (GLUT9), a novel member of the family of sugar-transport facilitators predominantly expressed in brain and leucocytes]]></article-title>
<source><![CDATA[Biochem J]]></source>
<year>2000</year>
<volume>350</volume>
<numero>^s3</numero>
<issue>^s3</issue>
<supplement>3</supplement>
<page-range>771-6</page-range></nlm-citation>
</ref>
<ref id="B41">
<label>41</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Dawson]]></surname>
<given-names><![CDATA[PA]]></given-names>
</name>
<name>
<surname><![CDATA[Mychaleckyj]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
<name>
<surname><![CDATA[Fossey]]></surname>
<given-names><![CDATA[SC]]></given-names>
</name>
<name>
<surname><![CDATA[Mihic]]></surname>
<given-names><![CDATA[SJ]]></given-names>
</name>
<name>
<surname><![CDATA[Craddock]]></surname>
<given-names><![CDATA[AL]]></given-names>
</name>
<name>
<surname><![CDATA[Bowden]]></surname>
<given-names><![CDATA[DW]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sequence and functional analysis of GLUT10: a glucose transporter in the Type 2 diabetes-linked region of chromosome 20q12-13.1]]></article-title>
<source><![CDATA[Mol Genet Metab]]></source>
<year>2001</year>
<volume>74</volume>
<numero>1-2</numero>
<issue>1-2</issue>
<page-range>186-99</page-range></nlm-citation>
</ref>
<ref id="B42">
<label>42</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[McVie-Wylie]]></surname>
<given-names><![CDATA[A.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Lamson]]></surname>
<given-names><![CDATA[D.R]]></given-names>
</name>
<name>
<surname><![CDATA[Chen]]></surname>
<given-names><![CDATA[Y.T.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Molecular cloning of a novel member of the GLUT family of transporters, SLC2a10 (GLUT10), localized on chromosome 20q13.1: a candidate gene for NIDDM susceptibility]]></article-title>
<source><![CDATA[Genomics]]></source>
<year>2001</year>
<volume>72</volume>
<page-range>1137</page-range></nlm-citation>
</ref>
<ref id="B43">
<label>43</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sasaki]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Minoshima]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Shiohama]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Shintani]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Shimizu]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Asakawa]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Kawasaki]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[Shimizu]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Molecular cloning of a member of the facilitative glucose transporter gene family GLUT11 (SLC2A11) and identification of transcription variants]]></article-title>
<source><![CDATA[Biochem Biophys Res Commun]]></source>
<year>2001</year>
<volume>289</volume>
<numero>5</numero>
<issue>5</issue>
<page-range>1218-24</page-range></nlm-citation>
</ref>
<ref id="B44">
<label>44</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Doege]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Bocianski]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Scheepers]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Axer]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Eckel]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Joost]]></surname>
<given-names><![CDATA[HG]]></given-names>
</name>
<name>
<surname><![CDATA[Schurmann]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Characterization of human glucose transporter (GLUT) 11 (encoded by SLC2A11), a novel sugar-transport facilitator specifically expressed in heart and skeletal muscle]]></article-title>
<source><![CDATA[Biochem J]]></source>
<year>2001</year>
<volume>359</volume>
<numero>^sPt 2</numero>
<issue>^sPt 2</issue>
<supplement>Pt 2</supplement>
<page-range>443-9</page-range></nlm-citation>
</ref>
<ref id="B45">
<label>45</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Suzanne]]></surname>
<given-names><![CDATA[Rogers]]></given-names>
</name>
<name>
<surname><![CDATA[Macheda]]></surname>
<given-names><![CDATA[Maria L.]]></given-names>
</name>
<name>
<surname><![CDATA[Docherty]]></surname>
<given-names><![CDATA[Susan E.]]></given-names>
</name>
<name>
<surname><![CDATA[Maynard D.]]></surname>
<given-names><![CDATA[Carty]]></given-names>
</name>
<name>
<surname><![CDATA[Henderson]]></surname>
<given-names><![CDATA[Michael A.]]></given-names>
</name>
<name>
<surname><![CDATA[Soeller]]></surname>
<given-names><![CDATA[Walter C.]]></given-names>
</name>
<name>
<surname><![CDATA[Gibbs]]></surname>
<given-names><![CDATA[E. Michael]]></given-names>
</name>
<name>
<surname><![CDATA[James]]></surname>
<given-names><![CDATA[David E.]]></given-names>
</name>
<name>
<surname><![CDATA[Best]]></surname>
<given-names><![CDATA[James D]]></given-names>
</name>
</person-group>
<source><![CDATA[Identification of a novel glucose transporter-like protein GLUT-12]]></source>
<year>2002</year>
<page-range>282,3</page-range></nlm-citation>
</ref>
<ref id="B46">
<label>46</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Uldry]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Ibberson]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Horisberger]]></surname>
<given-names><![CDATA[JD]]></given-names>
</name>
<name>
<surname><![CDATA[Chatton]]></surname>
<given-names><![CDATA[JY]]></given-names>
</name>
<name>
<surname><![CDATA[Riederer]]></surname>
<given-names><![CDATA[BM]]></given-names>
</name>
<name>
<surname><![CDATA[Thorens]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Identification of a mammalian H(+)-myo-inositol symporter expressed predominantly in the brain.]]></article-title>
<source><![CDATA[EMBO J.]]></source>
<year>2001</year>
<volume>20</volume>
<numero>16</numero>
<issue>16</issue>
<page-range>4467-77</page-range></nlm-citation>
</ref>
<ref id="B47">
<label>47</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wu]]></surname>
<given-names><![CDATA[X]]></given-names>
</name>
<name>
<surname><![CDATA[Freeze]]></surname>
<given-names><![CDATA[HH]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[GLUT14, a duplicon of GLUT3, is specifically expressed in testis as alternative splice forms]]></article-title>
<source><![CDATA[Genomics]]></source>
<year>2002</year>
<volume>80</volume>
<numero>6</numero>
<issue>6</issue>
<page-range>553-7</page-range></nlm-citation>
</ref>
<ref id="B48">
<label>48</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Baumann]]></surname>
<given-names><![CDATA[C.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Brady]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Saltiel]]></surname>
<given-names><![CDATA[A.R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Activation of glycogen synthase by insulin in 3T3-L1 adipocytes involves c-Cbl-associating protein (CA))-dependent and CAP-independent signaling pathways]]></article-title>
<source><![CDATA[J Biol Chem]]></source>
<year>2001</year>
<volume>276</volume>
<page-range>6065-8</page-range></nlm-citation>
</ref>
<ref id="B49">
<label>49</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tsao]]></surname>
<given-names><![CDATA[T.-S]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Pommer]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Amelioration of insulin resistance but not hyperinsulinemia in obese mice overexpressing GLUT4 selectively in skeletal muscle]]></article-title>
<source><![CDATA[Metabolism]]></source>
<year>2000</year>
<volume>49</volume>
<page-range>340-346</page-range></nlm-citation>
</ref>
<ref id="B50">
<label>50</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Li]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Houseknecht]]></surname>
<given-names><![CDATA[K.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Reduced glucose uptake precedes insulin signaling defects in adipocytes from heterozygous GLUT4 (+/-) knockout mice]]></article-title>
<source><![CDATA[]]></source>
<year></year>
</nlm-citation>
</ref>
<ref id="B51">
<label>51</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stenbit]]></surname>
<given-names><![CDATA[A.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Katz]]></surname>
<given-names><![CDATA[E.B.]]></given-names>
</name>
<name>
<surname><![CDATA[Chatham]]></surname>
<given-names><![CDATA[J.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Geenen]]></surname>
<given-names><![CDATA[D.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Factor]]></surname>
<given-names><![CDATA[S.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Weiss]]></surname>
<given-names><![CDATA[R.G.]]></given-names>
</name>
<name>
<surname><![CDATA[Tsao]]></surname>
<given-names><![CDATA[T.-S.]]></given-names>
</name>
<name>
<surname><![CDATA[Malhotra]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Chacko]]></surname>
<given-names><![CDATA[V.P.]]></given-names>
</name>
<name>
<surname><![CDATA[Ocampo]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Jelicks]]></surname>
<given-names><![CDATA[L.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Charron]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Preservation of glucose metabolism in hypertrophic GLUT4 null hearts]]></article-title>
<source><![CDATA[Am. J. Phys.]]></source>
<year>2000</year>
<volume>279</volume>
<page-range>H313-H318</page-range></nlm-citation>
</ref>
<ref id="B52">
<label>52</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Qiang]]></surname>
<given-names><![CDATA[Li]]></given-names>
</name>
<name>
<surname><![CDATA[Manolescu]]></surname>
<given-names><![CDATA[Andrei]]></given-names>
</name>
<name>
<surname><![CDATA[Ritzel]]></surname>
<given-names><![CDATA[Mabel]]></given-names>
</name>
<name>
<surname><![CDATA[Yao]]></surname>
<given-names><![CDATA[Sylvia]]></given-names>
</name>
<name>
<surname><![CDATA[Slugoski]]></surname>
<given-names><![CDATA[Melissa]]></given-names>
</name>
<name>
<surname><![CDATA[Young]]></surname>
<given-names><![CDATA[James D.]]></given-names>
</name>
<name>
<surname><![CDATA[Xing-Zhen]]></surname>
<given-names><![CDATA[Chen]]></given-names>
</name>
<name>
<surname><![CDATA[Cheeseman]]></surname>
<given-names><![CDATA[Chris I.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cloning and functional characterization of the human GLUT7 isoform SLC2A7 from the small intestine, 2004]]></article-title>
<source><![CDATA[Am J Physiol Gastrointest Liver Physiol]]></source>
<year></year>
<volume>287</volume>
<page-range>G236-G242</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>