<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0798-0264</journal-id>
<journal-title><![CDATA[Archivos Venezolanos de Farmacología y Terapéutica]]></journal-title>
<abbrev-journal-title><![CDATA[AVFT]]></abbrev-journal-title>
<issn>0798-0264</issn>
<publisher>
<publisher-name><![CDATA[Sociedad Venezolana de Farmacológia  y Farmacológia Clínica y Terapéutica. Escuela de MedicinaJosé Maria Vargas. Cátedra de Farmacológia, piso 3, esquina san jacinto, San José Caracas]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0798-02642008000100013</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Cinética de la potenciación post-reposo en tiras de ventrículo derecho aislado de rata, después de varias maniobras inotrópicas]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Alfonso-Pérez]]></surname>
<given-names><![CDATA[Candelaria]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Lamanna]]></surname>
<given-names><![CDATA[Vito]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Ortiz]]></surname>
<given-names><![CDATA[Holger N]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,UCV Instituto de Medicina Experimental Sección de Investigaciones Cardio-Renales]]></institution>
<addr-line><![CDATA[Caracas ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A02">
<institution><![CDATA[,UCV Facultad de Medicina Escuela de Enfermería]]></institution>
<addr-line><![CDATA[Caracas ]]></addr-line>
<country>Venezuela</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>06</month>
<year>2008</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>06</month>
<year>2008</year>
</pub-date>
<volume>27</volume>
<numero>1</numero>
<fpage>79</fpage>
<lpage>81</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0798-02642008000100013&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0798-02642008000100013&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0798-02642008000100013&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[En este trabajo se realizaron maniobras inotrópicas positivas (disminución de [Na+]e, [K+]e y cambios de la frecuencia), y maniobras inotrópicas negativas (disminución de [Ca2+]e y adición de rianodina) en tiras del ventrículo derecho de ratas machos anestesiadas y estimuladas bipolarmente a 1 ó 3 Hz. La máxima potenciación se obtuvo a los 32 s, y disminuyó en las siguientes contracciones monotónicamente hasta alcanzar nuevamente el estado estable. La disminución de [Na+]e produjo un efecto inotrópico positivo ( p<0,05) hasta 16 s de reposo. Con reposo de 64 s y 3 Hz, la fuerza de contracción de los latidos fue menor, quizás por una mayor actividad del intercambiador Na+/Ca2+. La disminución de [Ca2+]e produjo un efecto inotrópico negativo hasta 16 s de reposo. La rianodina fue la única maniobra inotrópica que cambio la cinética de la potenciación post-reposo y del estado estable, lo que indica que la potenciación depende del Ca2+ liberado del retículo sarcoplásmico.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[In this work, positive inotropics maneuvers (diminution of [Na+]e, [ K+]e and changes of the frequency), and negative inotropics maneuvers (diminution of [Ca2+]e and adition of ryanodine) were made in right ventricle strip of male anaesthesia rats, stimulated bipolar to 1 or 3 Hz. The maxim potentiation was to the 32 s, with monotonic diminution until the stable state. The diminution of [ Na+]e produced a positive inotropic effect ( p<0,05) up to 16 s rest. With of 64 s rest and 3 Hz, the force of contraction of the beats was smaller, perhaps by a greater activity of Na+/Ca2+ interchanger. The diminution of [ Ca2+]e produced a negative inotropic effect up to 16 s rest. The ryanodine was only inotropic maneuver that change kinetic of potentiation the post-rest and of the stable state, which indicates that the potentiation depend of the Ca2+ released of the sarcoplasmic reticulum.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[tejido cardiaco]]></kwd>
<kwd lng="es"><![CDATA[potenciación post-reposo]]></kwd>
<kwd lng="es"><![CDATA[rianodina]]></kwd>
<kwd lng="es"><![CDATA[rata]]></kwd>
<kwd lng="en"><![CDATA[cardiac tissues]]></kwd>
<kwd lng="en"><![CDATA[potentiation post-rest]]></kwd>
<kwd lng="en"><![CDATA[ryanodine]]></kwd>
<kwd lng="en"><![CDATA[rat]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[ <p align="center"><font face="Verdana"><b>Cinética de la potenciación  post-reposo en tiras de ventrículo derecho aislado de rata, después de varias  maniobras inotrópicas</b></font></p>     <p align="center"><font face="Verdana" size="2">Candelaria Alfonso-Pérez*, Vito  Lamanna**, Holger N. Ortiz***.</font></p>     <p align="justify"><font face="Verdana" size="2">* Magíster Science. Sección de  Investigaciones Cardio-Renales, Instituto de Medicina Experimental, UCV.  Caracas-Venezuela.</font></p>     <p align="justify"><font face="Verdana" size="2">** PhD. Sección de  Investigaciones Cardio-Renales, Instituto de Medicina Experimental, UCV.</font></p>     <p align="justify"><font face="Verdana" size="2">*** Magíster Science. Escuela  de Enfermería, Facultad de Medicina, UCV. Caracas-Venezuela.</font></p>     <p align="justify"><font face="Verdana" size="2">No hay separatas disponibles.  Ayuda parcial del CDCH-UCV, proyecto PI-09-33-4405-1999. Correo Email: <a href="mailto:alfonsoc@ucv.ve">alfonsoc@ucv.ve</a></font></p>     <p align="justify"><font face="Verdana" size="2"><b>Resumen</b></font></p>     <p align="justify"><font face="Verdana" size="2">En este trabajo se realizaron  maniobras inotrópicas positivas (disminución de [Na<sup>+</sup>]e, [K<sup>+</sup>]e  y cambios de la frecuencia), y maniobras inotrópicas negativas (disminución de  [Ca<sup>2+</sup>]e y adición de rianodina) en tiras del ventrículo derecho de  ratas machos anestesiadas y estimuladas bipolarmente a 1 ó 3 Hz. La máxima  potenciación se obtuvo a los 32 s, y disminuyó en las siguientes contracciones  monotónicamente hasta alcanzar nuevamente el estado estable. La disminución de [Na<sup>+</sup>]e  produjo un efecto inotrópico positivo ( p&lt;0,05) hasta 16 s de reposo. Con reposo  de 64 s y 3 Hz, la fuerza de contracción de los latidos fue menor, quizás por  una mayor actividad del intercambiador Na<sup>+</sup>/Ca<sup>2+</sup>. La  disminución de [Ca<sup>2+</sup>]e produjo un efecto inotrópico negativo hasta 16  s de reposo. La rianodina fue la única maniobra inotrópica que cambio la  cinética de la potenciación post-reposo y del estado estable, lo que indica que  la potenciación depende del Ca<sup>2+</sup> liberado del retículo sarcoplásmico.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Palabras claves:</b> tejido  cardiaco, potenciación post-reposo, rianodina, rata</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Abstract</b></font></p>     ]]></body>
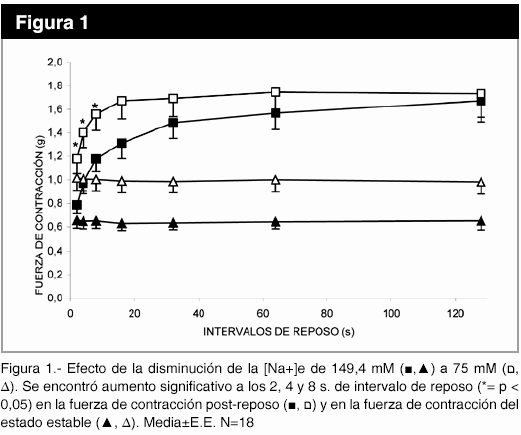
<body><![CDATA[<p align="justify"><font face="Verdana" size="2">In this work, positive  inotropics maneuvers (diminution of [Na<sup>+</sup>]e, [ K<sup>+</sup>]e and  changes of the frequency), and negative inotropics maneuvers (diminution of [Ca<sup>2+</sup>]e  and adition of ryanodine) were made in right ventricle strip of male anaesthesia  rats, stimulated bipolar to 1 or 3 Hz. The maxim potentiation was to the 32 s,  with monotonic diminution until the stable state. The diminution of [ Na<sup>+</sup>]e  produced a positive inotropic effect ( p&lt;0,05) up to 16 s rest. With of 64 s  rest and 3 Hz, the force of contraction of the beats was smaller, perhaps by a  greater activity of Na<sup>+</sup>/Ca<sup>2+</sup> interchanger. The diminution  of [ Ca<sup>2+</sup>]e produced a negative inotropic effect up to 16 s rest. The  ryanodine was only inotropic maneuver that change kinetic of potentiation the  post-rest and of the stable state, which indicates that the potentiation depend  of the Ca<sup>2+</sup> released of the sarcoplasmic reticulum.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Key words:</b> cardiac  tissues, potentiation post-rest, ryanodine, rat</font></p>     <p align="justify"><font face="Verdana" size="2">Recibido: 06/02/2008 Aceptado:  05/03/2008</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Introducción</b></font></p>     <p align="justify"><font face="Verdana" size="2">Se han desarrollado varios  modelos para explicar el manejo celular del calcio en el músculo cardíaco, con  la finalidad de describir la relación entre la potenciación de la fuerza de  contracción y el intervalo de reposo en el músculo cardiaco de mamíferos<sup>1</sup>.  El Ca<sup>2+</sup> extracelular entra a la células cardiacas como consecuencia  del potencial de acción, el cual abre los canales de Ca<sup>2+</sup>  dependientes de voltaje en la membrana plasmática y este Ca<sup>2+</sup> al  unirse a los receptores de rianodina (RYR) del retículo sarcoplásmico (RS),  induce la liberación de Ca<sup>2+</sup> intracelular<sup>2</sup>. Una vez que el  Ca<sup>2+</sup> es utilizado para el fenómeno de la contracción, la mayor  proporción es nuevamente recaptado por el RS y en menor cantidad es eliminado  hacia el medio extracelular por el intercambiador Na<sup>+</sup>/Ca<sup>2+</sup>,  estos dos mecanismos varían en importancia en diferentes especies de mamíferos.  Una pequeña cantidad del Ca<sup>2+</sup> es expulsado de la célula por una bomba  de calcio del sarcolema. El Ca<sup>2+</sup> dentro del RS al ser transportado  desde el sitio de recaptación cerca de las miofibrillas, hasta el sitio de  liberación en un lugar cercano a los receptores de RYR requiere de un tiempo que  varía entre las especie y cuyo mecanismo es desconocido3. Se ha tratado de  explicar la potenciación post-reposo en base a un incremento del contenido de Ca<sup>2+</sup>  del RS, o a la fracción de Ca<sup>2+</sup> liberado por el mismo, pero además,  en algunas especies la potenciación de la contracción post-reposo está  relacionada con el intervalo de reposo<sup>4</sup>. En este trabajo determinamos  el tiempo de reposo en el cual ocurre la máxima potenciación y cuales maniobras  inotrópicas cambian la cinética de la potenciación post-reposo en tiras de  ventrículo derecho y en el manejo del calcio.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Materiales y métodos</b></font></p>     <p align="justify"><font face="Verdana" size="2">Se utilizaron ratas machos  Sprague Dawley, con peso entre 250 y 350 g. Después de anestesiadas con Nesdonal®  intraperitoneal, se extrajo el corazón, se aisló una tira de la pared libre del  ventrículo derecho y se fijó en un baño de superfusión con 15 mL de solución  tyrode, pH 7,4 a 35 °C, burbujeada con 95 % de O<sub>2</sub> y 5 % de CO<sub>2</sub>  con una tensión de basal de 1 g. Las preparaciones fueron estimuladas  bipolarmente con pulsos de 3 ms, con una frecuencia basal de 1 Hz y una  intensidad 1,5 veces el umbral. La fuerza de contracción expresada en gramos se  registró en un polígrafo [5]. Se realizaron varias maniobras inotrópicas  positivas: Disminución de [Na<sup>+</sup>]e de 149 a 75 mM , y de [K<sup>+</sup>]e  de 3,9 a 1,0 mM, además, maniobras inotrópicas negativas: disminución de [Ca<sup>2+</sup>]e  de 2,70 a 1,35 mM, presencia de 1,5x10<sup>-8</sup> M de rianodina. También se  estudiaron cambios de la frecuencia de 1 a 3 Hz. La fuerza contráctil se midió  en el estado estable y luego de intervalos de reposo de 2, 4, 8, 16, 32, 64, 128  s. Una vez colocada las preparaciones en el baño de superfusión, se dejaron  estabilizar por 30 min y se efectuó un registro control de la potenciación  post-reposo con los distintos intervalos de reposo. Después se cambió la  solución del baño para realizar la maniobra inotrópica, se dejó actuar por 10  min, y se hicieron los registros de la potenciación postreposo experimentales.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Resultados</b></font></p>     <p align="justify"><font face="Verdana" size="2">En las tiras de ventrículo  derecho, la máxima fuerza de contracción se alcanzó luego de un periodo de  reposo de 32 s, con reposos mayores (hasta 128 s) permaneció constante. La  potenciación de la fuerza de contracción a la frecuencia de 1Hz disminuyó  monotónicamente hasta alcanzar el estado estable. Resultados similares se  encontraron en la aurícula izquierda aislada de la rata, datos no mostrados.</font></p>     <p align="justify"><font face="Verdana" size="2">Cuando se disminuyó la [Na+]e  se encontró un aumento significativo (p&lt; 0,05) en la fuerza de contracción  post-reposo después de los intervalos de reposo 2, 4, 8 s. También aumentó la  contracción en el estado estable (<a href="#fig1">figura 1</a>). No obstante, la  disminución de la [K<sup>+</sup>]e no produjo cambios significativos en la  potenciación, ni en el estado estable en relación al control, para los  diferentes intervalo de reposo.</font></p>     ]]></body>
<body><![CDATA[<p align="center"><a name="fig1"> <img border="0" src="/img/fbpe/avft/v27n1/art13fig1.gif" width="521" height="435"></a></p>     
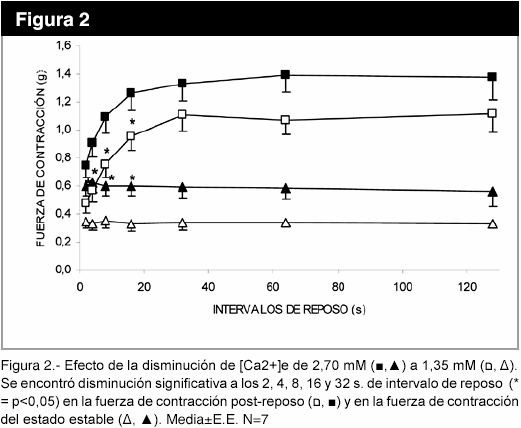
<p align="justify"><font face="Verdana" size="2">La disminución de la [Ca<sup>2+</sup>]e  produjo una disminución significativa (p&lt;0,05) de la fuerza de contracción  post-reposo, entre los intervalos de reposo 2 a 16 s. También disminuyó la  fuerza de contracción del estado estable (<a href="#fig2">figura 2</a>),  mientras que, el aumento de la [Ca<sup>2+</sup>]e al doble del control no causó  cambios significativos, resultados no mostrados.</font></p>     <p align="center"><a name="fig2"> <img border="0" src="/img/fbpe/avft/v27n1/art13fig2.gif" width="521" height="428"></a></p>     
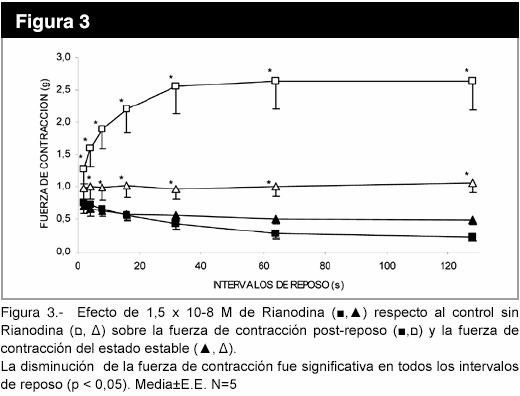
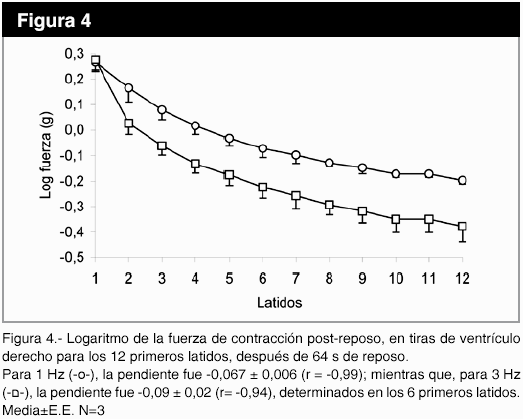
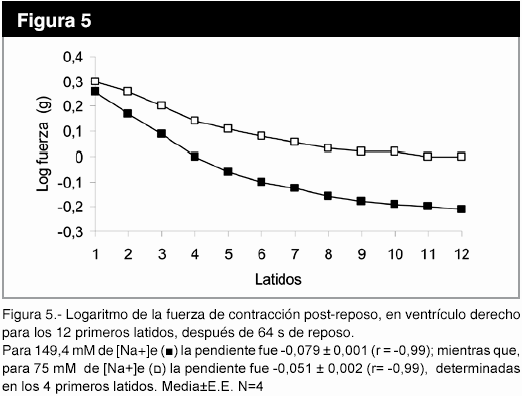
<p align="justify"><font face="Verdana" size="2">En la <a href="#fig3">figura 3</a>,  se observa que el uso de la rianodina, un bloqueante específico de los canales  de Ca<sup>2+</sup> del RS dependientes de ligando, a la concentración de 1,5 x  10<sup>-8</sup> M cambió la cinética de la potenciación post-reposo y disminuyó  la fuerza de contracción del estado estable (p&lt;0,05). El aumento de la  frecuencia de 1 a 3 Hz no modificó la fuerza de contracción post-reposo (<a href="#fig4">figura  4</a>), pero la pendiente del gráfico logaritmo de la fuerza versus número de  latido, con intervalo de reposo de 64 s, fue de -0,067±0,006 (r = -0,99) para 1  Hz; mientras que, para 3 Hz , la pendiente fue -0,09±0,02 (r= -0,94),  determinados en los seis primeros latidos. La disminución de la [Na<sup>+</sup>]e  produce una caída más lenta de la fuerza post-reposo latido a latido, con una  fuerza de contracción mayor desde el primer latido, en relación a [Na<sup>+</sup>]e  normal (<a href="#fig5">figura 5</a>).</font></p>     <p align="center"><a name="fig3"> <img border="0" src="/img/fbpe/avft/v27n1/art13fig3.gif" width="520" height="396"></a></p>     
<p align="center"><a name="fig4"> <img border="0" src="/img/fbpe/avft/v27n1/art13fig4.gif" width="523" height="419"></a></p>     
<p align="center"><a name="fig5"> <img border="0" src="/img/fbpe/avft/v27n1/art13fig5.gif" width="522" height="396"></a></p>     
<p align="justify"><b><font face="Verdana" size="2">Discusión</font></b></p>     <p align="justify"><font face="Verdana" size="2">En el ventrículo, la  disminución de la [Na<sup>+</sup>]e provocó un efecto inotrópico positivo,  posiblemente debido al incremento de la [Ca<sup>2+</sup>]i, originado por una  disminución de la actividad del intercambiador Na<sup>+</sup>/Ca<sup>2+</sup>, o  por que éste comienza a funcionar de forma inversa<sup>6</sup>. La [Na<sup>+</sup>]i  en los miocitos es controlada por la actividad de la ATPasa Na<sup>+</sup>/K<sup>+</sup>,  así como, la [Ca<sup>2+</sup>]i y [Na<sup>+</sup>]i regula al intercambiador Na<sup>+</sup>/Ca<sup>2+</sup> <sup>7</sup>. La disminución de la [Ca<sup>2+</sup>]e indujo el efecto  inotrópico negativo esperado y por tanto, una disminución de la potenciación  post-reposo y del estado estable, posiblemente a la menor cantidad de calcio en  el retículo sarcoplásmico y menor [Ca<sup>2+</sup>]i recirculante<sup>8</sup>.  La&nbsp; rianodina eliminó completamente la potenciación post-reposo,este  compuesto, a la concentración utilizada, bloquea la liberación de Ca<sup>2+</sup>  del retículo sarcoplásmico; por tanto, el fenómeno de la potenciación  post-reposo está estrechamente ligado al manejo del Ca<sup>2+</sup> en el  retículo sarcoplásmico<sup>9,10</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Con la frecuencia de 1 ó 3 Hz,  la potenciación disminuyó en los latidos 8, 9 y 10 siguientes a la contracción  post-reposo, esta disminución es debida posiblemente a la acción normal del  intercambiador Na<sup>+</sup>/Ca<sup>2+</sup>, ya que, la pendiente de la  depotenciación disminuye al bajar la [Na+]e, además, la pendiente aumentó cuando  la frecuencia se cambia de 1 a 3 Hz, lo que aumenta rápidamente la concentración  de [Ca<sup>2+</sup>]i.</font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="Verdana" size="2">En los ventrículos derechos de  la rata Sprague Dawley, aparentemente se abre el mayor número de canales de  calcio en el retículo sarcoplásmico a los 32s, tiempo en que se produce la  máxima potenciación post-reposo. De las maniobras inotrópicas evaluadas, la  rianodina fue la única que cambió la cinética de la potenciación post-reposo, lo  que indica, que el fenómeno de potenciación en el ventrículo derecho está  relacionado con el Ca<sup>2+</sup> liberado del retículo sarcoplásmico.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Referencias</b></font></p>     <!-- ref --><p align="justify"><font face="Verdana" size="2">1. Schouten JV, Van Deen JK, De  Tome P, Verveen AA. Force- intervalo relationship in Herat muscle of mammals.  Biophys J. 1987; 51: 13-26.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596731&pid=S0798-0264200800010001300001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">2. Fabiato A. Time and calcium  dependence of activation and inactivation of calcium-induced release of calcium  from the sarcoplasmic reticulum of the skinned canine cardiac Purkinje cell. J  Gen Physiol. 1985; 85: 247-289.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596732&pid=S0798-0264200800010001300002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">3. Allen DG, Jewell BR, Word  EH. Studies of the contractility of mammalian myocardium at low rates of  stimulation. J Physiol. 1976; 254:1-17.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596733&pid=S0798-0264200800010001300003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">4. Bers DM. Ca influx and  sarcoplasmic reticulum Ca release in cardiac muscle activation during post-rest  recovery. Am J Physiol 1985; 248:H376-381.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596734&pid=S0798-0264200800010001300004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">5. Alfonso C, Lamanna V,  Rodríguez M, Pérez -González M. Efecto de distintas maniobras inotrópicas sobre  la potenciación post-reposo en aurículas izquierda aislada de ratas. Revista  Facultad de Medicina. 2002; 25: 59-62.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596735&pid=S0798-0264200800010001300005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">6. Janvier N.C., Boyett M.R. The  role of Na-Ca exchage current in the cardiac action potential. Cardiovasc.Res.  1996; 32: 69-84.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596736&pid=S0798-0264200800010001300006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">7. Barry. W H., Bridge J H.  Intracellular calcium homeostasis in cardiac Myocites. Circulation 1993; 57:  1806-1815.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596737&pid=S0798-0264200800010001300007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">8. Bassani, J W., Yuan W., Bers  DM. Fractional S R Ca release is regulated by trigger Ca and R S Ca content in  cardiomiocytes. Am J Physiol. 1995; 268: C1313 - C1347.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596738&pid=S0798-0264200800010001300008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">9. Bers DM. Ryanodine and the  calcium content of cardiac RS assessed by caffeine and rapid cooling  contractures. Am. J. Physiol 1987; 253:C408 - 415.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596739&pid=S0798-0264200800010001300009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font face="Verdana" size="2">10. Zhang L, Kelley J,  Schmeisser G, Kobayashi Y M, Jones L. Complex Formation between Junctin,  Calsequestrin, and the Ryanodine Receptor. J.Biol.Chem 1997; 272: 23389-23397.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=596740&pid=S0798-0264200800010001300010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Schouten]]></surname>
<given-names><![CDATA[JV]]></given-names>
</name>
<name>
<surname><![CDATA[Van Deen]]></surname>
<given-names><![CDATA[JK]]></given-names>
</name>
<name>
<surname><![CDATA[De Tome]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Verveen]]></surname>
<given-names><![CDATA[AA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Force- intervalo relationship in Herat muscle of mammals]]></article-title>
<source><![CDATA[Biophys J.]]></source>
<year>1987</year>
<volume>51</volume>
<page-range>13-26</page-range></nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Fabiato]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Time and calcium dependence of activation and inactivation of calcium-induced release of calcium from the sarcoplasmic reticulum of the skinned canine cardiac Purkinje cell]]></article-title>
<source><![CDATA[J Gen Physiol.]]></source>
<year>1985</year>
<volume>85</volume>
<page-range>247-289</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Allen]]></surname>
<given-names><![CDATA[DG]]></given-names>
</name>
<name>
<surname><![CDATA[Jewell]]></surname>
<given-names><![CDATA[BR]]></given-names>
</name>
<name>
<surname><![CDATA[Word]]></surname>
<given-names><![CDATA[EH]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Studies of the contractility of mammalian myocardium at low rates of stimulation]]></article-title>
<source><![CDATA[J Physiol.]]></source>
<year>1976</year>
<volume>254</volume>
<page-range>1-17</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bers]]></surname>
<given-names><![CDATA[DM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ca influx and sarcoplasmic reticulum Ca release in cardiac muscle activation during post-rest recovery]]></article-title>
<source><![CDATA[Am J Physiol]]></source>
<year>1985</year>
<volume>248</volume>
<page-range>H376-381</page-range></nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Alfonso]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Lamanna]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Rodríguez]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Pérez -González]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Efecto de distintas maniobras inotrópicas sobre la potenciación post-reposo en aurículas izquierda aislada de ratas]]></article-title>
<source><![CDATA[Revista Facultad de Medicina.]]></source>
<year>2002</year>
<volume>25</volume>
<page-range>59-62</page-range></nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Janvier]]></surname>
<given-names><![CDATA[N.C.]]></given-names>
</name>
<name>
<surname><![CDATA[Boyett]]></surname>
<given-names><![CDATA[M.R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The role of Na-Ca exchage current in the cardiac action potential]]></article-title>
<source><![CDATA[Cardiovasc.Res.]]></source>
<year>1996</year>
<volume>32</volume>
<page-range>69-84</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barry.]]></surname>
<given-names><![CDATA[W H.]]></given-names>
</name>
<name>
<surname><![CDATA[Bridge]]></surname>
<given-names><![CDATA[J H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Intracellular calcium homeostasis in cardiac Myocites]]></article-title>
<source><![CDATA[Circulation]]></source>
<year>1993</year>
<volume>57</volume>
<page-range>1806-1815</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bassani,]]></surname>
<given-names><![CDATA[J W.]]></given-names>
</name>
<name>
<surname><![CDATA[Yuan]]></surname>
<given-names><![CDATA[W.]]></given-names>
</name>
<name>
<surname><![CDATA[Bers]]></surname>
<given-names><![CDATA[DM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Fractional S R Ca release is regulated by trigger Ca and R S Ca content in cardiomiocytes]]></article-title>
<source><![CDATA[Am J Physiol.]]></source>
<year>1995</year>
<volume>268</volume>
<page-range>C1313 - C1347</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bers]]></surname>
<given-names><![CDATA[DM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ryanodine and the calcium content of cardiac RS assessed by caffeine and rapid cooling contractures]]></article-title>
<source><![CDATA[Am. J. Physiol]]></source>
<year>1987</year>
<volume>253</volume>
<page-range>C408 - 415</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Zhang]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Kelley]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Schmeisser]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Kobayashi]]></surname>
<given-names><![CDATA[Y M]]></given-names>
</name>
<name>
<surname><![CDATA[Jones]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Complex Formation between Junctin, Calsequestrin, and the Ryanodine Receptor]]></article-title>
<source><![CDATA[J.Biol.Chem]]></source>
<year>1997</year>
<volume>272</volume>
<page-range>23389-23397</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>