<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0798-0264</journal-id>
<journal-title><![CDATA[Archivos Venezolanos de Farmacología y Terapéutica]]></journal-title>
<abbrev-journal-title><![CDATA[AVFT]]></abbrev-journal-title>
<issn>0798-0264</issn>
<publisher>
<publisher-name><![CDATA[Sociedad Venezolana de Farmacológia  y Farmacológia Clínica y Terapéutica. Escuela de MedicinaJosé Maria Vargas. Cátedra de Farmacológia, piso 3, esquina san jacinto, San José Caracas]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0798-02642015000400001</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Análisis funcional de la actividad anti-tripanosoma de compuestos seleccionados]]></article-title>
<article-title xml:lang="en"><![CDATA[Functional analysis of trypanocidal effect of selected compounds]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Ponte-Sucre]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad Central de Venezuela Facultad de Medicina Escuela de Medicina Luis Razetti]]></institution>
<addr-line><![CDATA[Caracas ]]></addr-line>
<country>Venezuela</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>12</month>
<year>2015</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>12</month>
<year>2015</year>
</pub-date>
<volume>34</volume>
<numero>4</numero>
<fpage>47</fpage>
<lpage>52</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0798-02642015000400001&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0798-02642015000400001&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0798-02642015000400001&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[La tripanosomiasis africana humana es una enfermedad transmitida por vectores, fatal si no se trata. La incidencia anual de pacientes solía ser muy alta, pero se ha reducido a menos de 10.000 por año. Esta declaración se esgrime para afirmar que no es necesario invertir en el desarrollo de nuevos fármacos contra la enfermedad del sueño. Sin embargo, la misma puede reaparecer, como en el pasado, cada vez más agresiva. Muy pocos compuestos están siendo analizados en entornos clínicos y la tasa de supervivencia de las moléculas es extremadamente baja; ninguno de los candidatos se encuentra en fase tres de evaluación clínica. En el marco de un proyecto multicéntrico, liderado por los Profesores Ulrike Holzgrabe y Gerhard Bringmann de la Universidad de Würzburg en Alemania, evaluamos previamente los cambios morfológicos y ultraestructurales producidos por compuestos líder sintetizados miembros de las familias estudiadas sobre Trypanosoma brucei. Los datos sugieren que las moléculas estudiadas podrían afectar el retículo endoplasmático (la bisnaftilamida biscuaternaria, 37) y la mitocondria y el cinetoplasto (la sal de N-Arylpyridinium, 88). En este trabajo determinamos si los compuestos 37 y 88 son parasitostáticos o parasiticidas, si actúan de forma sinérgica con las drogas clásicas y si afectan el estado metabólico de la célula. Nuestros resultados sugieren que 37 es parasiticida y 88 parasitostático, que ambos compuestos son sinérgicos con pentamidina y que 37 es sinérgico con eflornitina, y al igual que pentamidina y eflornitina, no altera la relación ADP / ATP o los niveles de glucosa del parásito, sugiriendo que su efecto no está asociado a la alteración del estado metabólico celular.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[Human African Trypanosomiasis is a vector-borne disease, fatal if left untreated. The annual incidence of patients used to be outrageous, but it has dropped to less than 10,000 per year. This statement has been used to assert that it is not necessary to invest in the development of new drugs against sleeping sickness. However, the disease may return, increasingly aggressive. Only a small number of compounds are being analyzed in clinical settings and the survival rate of candidates is normally low; none of the candidates is actually in phase three evaluation. Previously we assessed the morphological and ultrastructural changes produced by members of families of compounds synthesized within the frame of our university consortium multicenter project, led by Professor Ulrike Holzgrabe and Gerhard Bringmann, University of Würzburg, Germany on Trypanosoma brucei. The data suggested that the endoplasmic reticulum membrane systems (for the bisquaternary bisnaphthalimide 37) and the mitochondria and kinetoplast (for the N-Arylpyridinium salt 88) might be the potential organelles targeted. Herein we have determined whether these compounds are parasitostatic or parasitocydal, act synergistically with classical trypanocydal drugs and if they affect the metabolic status of the cell. Our results suggest that 37 seems to be parasitocidal while 88 seems to be parasitostatic, but that both compounds exert a synergistic effect with pentamidine, and 37 eflornithine. We further determined 37 and 88 did not alter the parasite ADP/ATP ratio or the parasite glucose levels thus indicating that they do not alter the metabolic status of the parasite.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Trypanosoma brucei]]></kwd>
<kwd lng="es"><![CDATA[enfermedad del sueño]]></kwd>
<kwd lng="es"><![CDATA[bisnaftilamida biscuaternaria]]></kwd>
<kwd lng="es"><![CDATA[sal de N-Arylpyridinium]]></kwd>
<kwd lng="es"><![CDATA[efecto metabólico]]></kwd>
<kwd lng="es"><![CDATA[sinergismo]]></kwd>
<kwd lng="en"><![CDATA[Trypanosoma brucei]]></kwd>
<kwd lng="en"><![CDATA[sleeping sickness]]></kwd>
<kwd lng="en"><![CDATA[bisquaternary bisnaphthalimide]]></kwd>
<kwd lng="en"><![CDATA[N-Arylpyridinium salt]]></kwd>
<kwd lng="en"><![CDATA[metabolic effect]]></kwd>
<kwd lng="en"><![CDATA[synergism]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[ <p align="center"><font face="Verdana"><b>Análisis funcional de la actividad  anti-tripanosoma de compuestos seleccionados</b></font></p>     <p align="center"><font face="Verdana"><b>Functional analysis of trypanocidal  effect of selected compounds</b></font></p>     <p align="center"><font face="Verdana" size="2">A. Ponte-Sucre</font></p>     <p align="justify"><font face="Verdana" size="2">A. Ponte-Sucre: Laboratorio de  Fisiología Molecular, Instituto de Medicina Experimental, Escuela de Medicina  Luis Razetti, Facultad de Medicina. Universidad Central de Venezuela, Caracas,  Venezuela, e-mail: <a href="mailto:aiponte@gmail.com">aiponte@gmail.com</a></font></p>     <p align="justify"><font face="Verdana" size="2"><b>Resumen</b></font></p>     <p align="justify"><font face="Verdana" size="2">La tripanosomiasis africana  humana es una enfermedad transmitida por vectores, fatal si no se trata. La  incidencia anual de pacientes solía ser muy alta, pero se ha reducido a menos de  10.000 por año. Esta declaración se esgrime para afirmar que no es necesario  invertir en el desarrollo de nuevos fármacos contra la enfermedad del sueño. Sin  embargo, la misma puede reaparecer, como en el pasado, cada vez más agresiva.  Muy pocos compuestos están siendo analizados en entornos clínicos y la tasa de  supervivencia de las moléculas es extremadamente baja; ninguno de los candidatos  se encuentra en fase tres de evaluación clínica. En el marco de un proyecto  multicéntrico, liderado por los Profesores Ulrike Holzgrabe y Gerhard Bringmann  de la Universidad de Würzburg en Alemania, evaluamos previamente los cambios  morfológicos y ultraestructurales producidos por compuestos líder sintetizados  miembros de las familias estudiadas sobre <i>Trypanosoma brucei</i>. Los datos  sugieren que las moléculas estudiadas podrían afectar el retículo endoplasmático  (la bisnaftilamida biscuaternaria, 37) y la mitocondria y el cinetoplasto (la  sal de N-Arylpyridinium, 88). En este trabajo determinamos si los compuestos 37  y 88 son parasitostáticos o parasiticidas, si actúan de forma sinérgica con las  drogas clásicas y si afectan el estado metabólico de la célula. Nuestros  resultados sugieren que 37 es parasiticida y 88 parasitostático, que ambos  compuestos son sinérgicos con pentamidina y que 37 es sinérgico con eflornitina,  y al igual que pentamidina y eflornitina, no altera la relación ADP / ATP o los  niveles de glucosa del parásito, sugiriendo que su efecto no está asociado a la  alteración del estado metabólico celular.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Palabras clave:</b> <i> Trypanosoma brucei</i>, enfermedad del sueño, bisnaftilamida biscuaternaria, sal  de N-Arylpyridinium, efecto metabólico, sinergismo.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Abstract</b></font></p>     <p align="justify"><font face="Verdana" size="2">Human African Trypanosomiasis  is a vector-borne disease, fatal if left untreated. The annual incidence of  patients used to be outrageous, but it has dropped to less than 10,000 per year.  This statement has been used to assert that it is not necessary to invest in the  development of new drugs against sleeping sickness. However, the disease may  return, increasingly aggressive. Only a small number of compounds are being  analyzed in clinical settings and the survival rate of candidates is normally  low; none of the candidates is actually in phase three evaluation.</font></p>     <p align="justify"><font face="Verdana" size="2">Previously we assessed the  morphological and ultrastructural changes produced by members of families of  compounds synthesized within the frame of our university consortium multicenter  project, led by Professor Ulrike Holzgrabe and Gerhard Bringmann, University of  Würzburg, Germany on <i>Trypanosoma brucei</i>. The data suggested that the  endoplasmic reticulum membrane systems (for the bisquaternary bisnaphthalimide  37) and the mitochondria and kinetoplast (for the N-Arylpyridinium salt 88)  might be the potential organelles targeted. Herein we have determined whether  these compounds are parasitostatic or parasitocydal, act synergistically with  classical trypanocydal drugs and if they affect the metabolic status of the cell.  Our results suggest that 37 seems to be parasitocidal while 88 seems to be  parasitostatic, but that both compounds exert a synergistic effect with  pentamidine, and 37 eflornithine. We further determined 37 and 88 did not alter  the parasite ADP/ATP ratio or the parasite glucose levels thus indicating that  they do not alter the metabolic status of the parasite.</font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="Verdana" size="2"><b>Key words:</b> <i> Trypanosoma brucei</i>, sleeping sickness, bisquaternary bisnaphthalimide, N-Arylpyridinium  salt, metabolic effect, synergism.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Introducción</b></font></p>     <p align="justify"><font face="Verdana" size="2">Unos pocos organismos son  responsables de las principales enfermedades parasitarias del siglo XX y XXI. De  hecho, la incidencia y el número de personas afectadas, y la desolación que  estos organismos causan a los pacientes es enorme. Estos patógenos producen un  ingente número de víctimas; sobre todo, pero no exclusivamente en los países en  desarrollo. Entre estos organismos podemos mencionar los tripanosomas que causan  la tripanosomiasis africana humana (HAT)<sup>1</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Esta es una enfermedad  transmitida por vectores, fatal si no se trata. Su incidencia anual solía ser  muy alta. Sin embargo, recientemente se ha reducido a menos de 10.000 casos por  año<sup>2</sup>. Este hecho se esgrime para destacar que “no es necesario  invertir en el desarrollo de nuevos fármacos contra la enfermedad del sueño”<sup>3</sup>.  Sin embargo, la misma puede resurgir como lo ha hecho en el pasado, y podría  volver de una forma más agresiva. Muy pocos fármacos están siendo analizados  clínicamente en diversas asociaciones sin fines de lucro, así como por la  denominada Iniciativa Medicamentos para Enfermedades Olvidadas (DNDi por sus  siglas en inglés)<sup>4</sup>. Sin embargo, la tasa de supervivencia de los  candidatos es extremadamente baja, y ninguno de los compuestos analizados se  encuentra en la tercera fase de evaluación clínica<sup>5</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Basados en el hecho de que la  potencia de un compuesto (que se refleja en su IC<sub>50</sub>), no  necesariamente se traduce en el “mejor fármaco a nivel de mercado” y de que,  además de la actividad que las moléculas deben tener en contra de un organismo  seleccionado, sus propiedades de absorción, distribución, metabolismo y  excreción (ADME) son esenciales para la selección de candidatos para estudios  con animales y preclínicos<sup>6</sup>, en un trabajo anterior, y con el  objetivo de perfeccionar la selección de los candidatos a estudios preclínicos,  analizamos la correlación entre la actividad anti-tripanosoma de moléculas de  diferentes clases estructurales con los parámetros físico-químicos de los  compuestos, para delinear la relación entre la estructura química y sus  funciones biológicas<sup>7</sup>. Los datos sugieren que los índices de  eficiencia de ligando pueden ser útiles para comprender la relación entre la  potencia y las características químicas de los compuestos. En esa oportunidad  describimos una buena correlación entre los parámetros físico-químicos de los  compuestos seleccionados y los de moléculas comerciales cuyas dianas son  organelos específicos. Estos resultados sugieren que nuestra aproximación podría  ser útil para impulsar el diseño de compuestos con buenas actividades y  propiedades farmacocinéticas aceptables para todas las familias de compuestos<sup>7</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">En este trabajo y a fin de  profundizar en el análisis de la potencia de los compuestos líder hemos evaluado  varias propiedades funcionales relacionadas con su acción sobre los parásitos.  De hecho, analizamos si los mismos ejercen una función parasitostática o  parasiticida, si actúan sinérgicamente con fármacos clásicos, y si afectan el  estado metabólico de la célula. Nuestros resultados sugieren que los mejores  candidatos 37 y 88, son, parasiticida el primero y parasitostático el segundo.  Sólo 37 es sinérgico con eflornitina, ambos con pentamidina. Finalmente, 37, al  igual que pentamidina o eflornitina, no altera la relación ADP / ATP del  parásito o sus niveles de glucosa. Estos resultados indican que su efecto no  está relacionado con la alteración del metabolismo celular.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Materiales y métodos</b></font></p>     <p align="justify"><font face="Verdana" size="2">La descripción de los  compuestos usados está resumida en un trabajo previo<sup>7</sup>. Ellos pueden  ser definidos como una bisnaftilamida biscuaternaria (37) y una sal de N-Arylpyridinium  (88).</font></p>     <p align="justify"><font face="Verdana" size="2">Para evaluar la actividad  tripanocida de los compuestos, se cultivaron formas sanguíneas monomórficas de  Trypanosoma (T.) brucei (TC-221) en medio Baltz, a 37°C, 5% de CO<sub>2</sub>.  El medio se suplementó con 16,7 % de suero fetal bovino inactivado por calor, 16  U ml<sup>-1</sup> de penicilina, 16 mg ml<sup>-1</sup> de estreptomicina y  0,0001% &#946;-mercaptoetanol. La actividad de los compuestos se determinó mediante  el ensayo de Azul de Alamar<sup>®</sup>. Brevemente, se incubó un número  apropiado de tripanosomas (10<sup>5</sup> células ml<sup>-1</sup>) en placas de  96 pozos, con concentraciones crecientes de los compuestos en un volumen final  de 200 ml. Después de 24 h de incubación a 37°C, 5% CO<sub>2</sub>, se añadieron  20 ml de Azul de Alamar a cada pozo; seguidamente las placas se incubaron en las  mismas condiciones por 48 h y 72 h. Las placas se leyeron en un lector de ELISA  (Oasys Expert 96) a una longitud de onda de 550 nm y una longitud de onda de  referencia de 630 nm. La absorbancia registrada en los pozos incubados en  ausencia de los compuestos determinó el 100% de crecimiento. La absorbancia  resultante en cada uno de los otros pozos reflejó el crecimiento celular y su  inhibición por los compuestos. Los valores de IC<sub>50</sub> se calcularon por  interpolación lineal<sup>8,9</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Para determinar la actividad  parasitostática o parasiticida de los compuestos se realizó el ensayo de  susceptibilidad de Azul de Alamar. Seguidamente se recogieron las células de los  pozos más cercanos a las concentraciones correspondientes al IC<sub>10</sub>, IC<sub>50</sub>  e IC<sub>90</sub> de cada compuesto. Las células se lavaron dos veces con PBS y  se sembraron de nuevo en las mismas condiciones, pero sin fármacos; se incubaron  durante 48 h, recibieron 20 ml de Azul de Alamar y se incubaron durante 48 h  adicionales para determinar su crecimiento adicional.</font></p>     ]]></body>
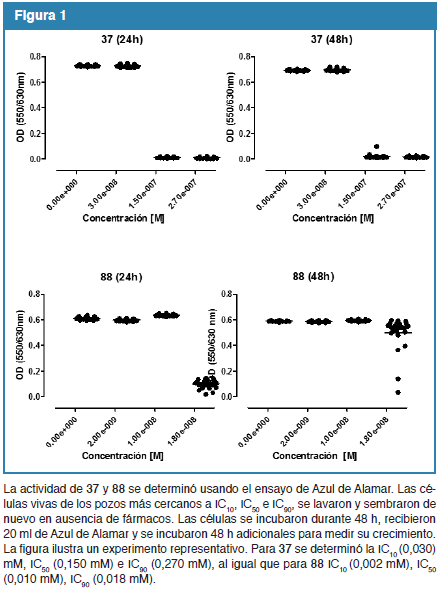
<body><![CDATA[<p align="justify"><font face="Verdana" size="2">Para determinar la actividad  sinérgica de 37 y 88 se realizaron en paralelo curvas de susceptibilidad con  Azul de Alamar para cada compuesto solo y para cada compuesto en presencia de  concentraciones IC<sub>50</sub> de pentamidina y eflornitina. Con este ensayo  definimos el desplazamiento del IC<sub>50</sub> de pentamidina y eflornitina  hacia concentraciones superiores o inferiores por la acción de los compuestos  utilizados.</font></p>     <p align="justify"><font face="Verdana" size="2">Para determinar las posibles  dianas intracelulares de 37 y 88 las células se incubaron como normalmente para  los ensayos de Azul de Alamar a concentraciones de IC<sub>50</sub> de los  respectivos compuestos durante 24 h. Al finalizar la incubación las células se  suspendieron a una densidad de 2.5 10<sup>6</sup> ml<sup>-1</sup> y se incubaron  con los siguientes indicadores: a. en 4 &#956;g ml<sup>-1</sup> Hoechst en PBS  durante 5 min a temperatura ambiente para marcar el núcleo. b. en 2,5 mM  MitoTracker Red durante 30 min a 37°C, 5% de CO<sub>2</sub> para marcar la  mitocondria. c. en 10 mM Lysotracker, durante 1 h a 37°C, 5% CO<sub>2</sub>,  para marcar los compartimientos ácidos. d. en 10 mM Fm 464 durante 10 min a 4°C,  para marcar el sistema de retículo endoplásmico.</font></p>     <p align="justify"><font face="Verdana" size="2">Posteriormente las células se  centrifugaron a 700 x g durante 5 min, se lavaron con PBS y se suspendieron en  200 ml de buffer para ser analizados por citometría de flujo.</font></p>     <p align="justify"><font face="Verdana" size="2">Para determinar el efecto de 37  y 88 sobre el metabolismo celular los tripanosomas fueron sembrados en placas de  96 pozos en 200 ml de medio a densidades iniciales de 10<sup>4</sup> células ml<sup>-1</sup>.  Las células se incubaron durante 24 h a 37°C, 5% CO<sub>2</sub> solas o en  presencia de DMSO (&lt;1%), florizidina (Sigma 274313-1G, 100 mM), DOG (Sigma  D6134-1G, 5 mM), pentamidina (Aventis, IC<sub>50</sub>), o a la IC50 de 37 y 88.  Posteriormente las células se centrifugaron a 700 x g durante 5 min, se lavaron  con PBS y suspendieron hasta una densidad de 1x10<sup>5</sup> células ml<sup>-1</sup>.  La relación ADP / ATP y el contenido de glucosa (Sigma MAK135 ADP / ATP Ratio  Kit de ensayo, Kit de ensayo de Sigma GAHK20 glucosa (HK)) se determinaron  utilizando un luminómetro, a 1 s de tiempo de detección.</font></p>     <p align="justify"><font face="Verdana" size="2">La relación ADP / ATP se  calculó por la siguiente razón: RLUA1 - luminiscencia de ATP; RLUB –  luminiscencia de ATP residual después de 10 min; RLUC - luminiscencia después de  la conversión enzimática de ADP en ATP; ADP / ATP = (RLUC1-RLUB1) / RLUA1),  siendo RLU la luminiscencia detectada en los canales A, B o C. Los niveles de  glucosa se ensayaron en el sobrenadante de cada condición a través del ensayo de  reducción de la hexoquinasa<sup>10</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Los experimentos se realizaron  al menos dos veces por cuadruplicado y el análisis estadístico se llevó a cabo  utilizando el software Graph Pad Prism, versión 6.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Resultados</b></font></p>     <p align="justify"><font face="Verdana" size="2">La susceptibilidad de los  parásitos a los compuestos se determinó mediante el ensayo de Azul de Alamar.  Seguidamente, se recogieron las células viables presentes en los pozos más  cercanos a las concentraciones IC<sub>10</sub>, IC<sub>50</sub> e IC<sub>90</sub>  para cada compuesto. Los parásitos se lavaron y sembraron de nuevo en las mismas  condiciones, pero sin drogas. Las células se incubaron durante 48 h a 37°C y 5%  CO<sub>2</sub> y de nuevo se determinó su crecimiento mediante el ensayo de Azul  de Alamar. Los resultados obtenidos se representan en la <a href="#fig1">Fig. 1</a>. Las células  expuestas a concentraciones IC<sub>50</sub> e IC<sub>90</sub> de 37 no reanudan  su crecimiento, incluso 48 h después de ser incubadas solas, sugiriendo que 37  podría ser parasiticida. Por el contrario, 88 presenta características de  parasitostático; las células supervivientes recogidas de los pozos incubados  incluso a IC<sub>90</sub>, reanudan su crecimiento al cabo de 48 h de ser  incubadas solas.</font></p>     <p align="center"><a name="fig1"> <img border="0" src="/img/fbpe/avft/v34n4/art01fig1.gif" width="441" height="592"></a></p>     
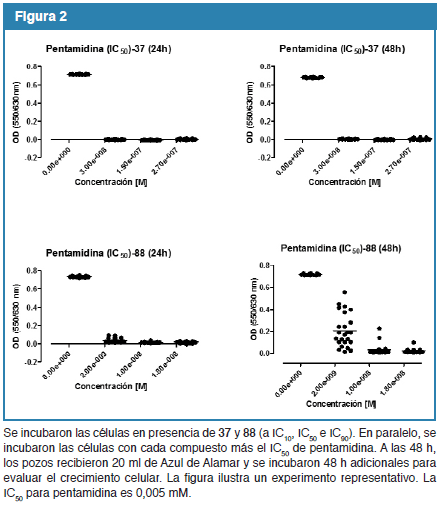
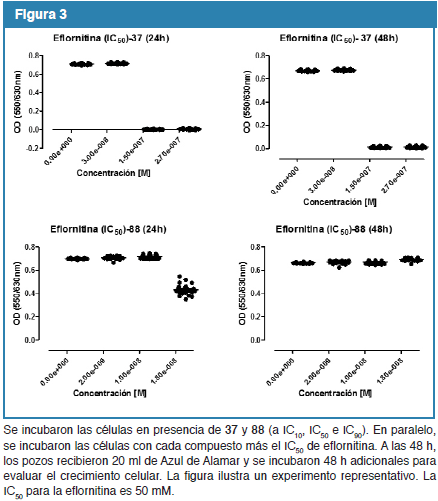
<p align="justify"><font face="Verdana" size="2">Con base a los resultados  anteriores evaluamos el potencial efecto sinérgico de los compuestos con las  drogas clásicas pentamidina y eflornitina. Para ello se incubaron los parásitos  con 37 y 88 (a concentraciones de IC<sub>10</sub>, IC<sub>50</sub> e IC<sub>90</sub>)  solos, y para cada molécula en presencia de pentamidina (IC<sub>50</sub>,  <a href="#fig2">Fig.  2</a>), o eflonitina (IC<sub>50</sub>, <a href="#fig3">Fig. 3</a>). El efecto sinérgico se demostró  claramente para pentaminina y 37, ya que incluso cuando 37 se utilizó a  concentraciones de IC<sub>10</sub> en conjunto con pentamidina (IC<sub>50</sub>),  las células no reanudaron su crecimiento a las 24 y 48 h de comenzado el  experimento. Resultados similares se obtuvieron al utilizar 88 en conjunto con  pentamidina (IC<sub>50)</sub> en las mediciones realizadas a las 24 h. Sin  embargo, después de 48 h las células incubadas con pentamidina a su IC<sub>50</sub>,  y 88 a su IC<sub>10</sub>, reanudaron el crecimiento hasta en un 30% del control  sin droga. El efecto sinérgico también se demostró para eflornitina y 37 a las  24 y 48 h, al utilizar 37 a concentraciones de IC<sub>50</sub>. Este no fue el  caso para el 88 y eflornitina (IC<sub>50</sub>), ya que incluso cuando 88 se  utilizó a concentraciones IC<sub>90</sub> las células continuaron su  crecimiento.</font></p>     ]]></body>
<body><![CDATA[<p align="center"><a name="fig2"> <img border="0" src="/img/fbpe/avft/v34n4/art01fig2.gif" width="438" height="505"></a></p>     
<p align="center"><a name="fig3"> <img border="0" src="/img/fbpe/avft/v34n4/art01fig3.gif" width="438" height="501"></a></p>     
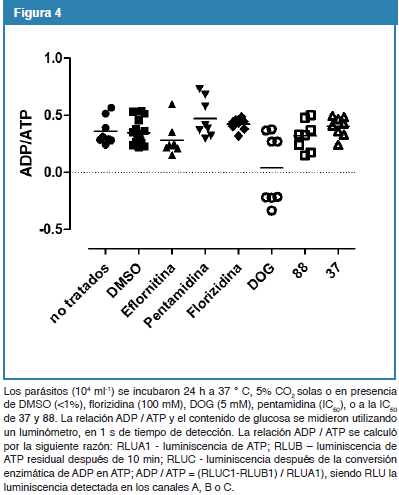
<p align="justify"><font face="Verdana" size="2">Estudios anteriores sugieren  del retículo endoplasmático es la diana celular para la bisnaftilamida  bicuaternaria (37) y la mitocondria y el cinetoplasto lo son para la sal de N-Arylpyridinium  (88). Para confirmar esta aseveración, utilizamos la citometría de flujo para  determinar cambios en el marcaje de organelos como el núcleo, los  compartimientos ácidos, la mitocondria y el cinteoplasto, y el sistema retículo  endotelial en parásitos tratados con pentamidina y eflornitina, así como con 37  y 88. Los resultados sugieren que sólo se evidencia una disminución en el  marcaje con Mitotracker (no significativo) en todas las condiciones, en  comparación con los parásitos no tratados. Estos resultados indican que en las  condiciones ensayadas este método no permite identificar de forma específica las  dianas intracelulares ya que los marcajes no distinguen el efecto de los  compuestos con los que trabajamos con respecto a los controles positivos (datos  no mostrados).</font></p>     <p align="justify"><font face="Verdana" size="2">Finalmente, y a fin de evaluar  si 37 y 88 alteran el metabolismo del parásito determinamos la relación ADP /  ATP y los niveles de glucosa en parásitos tratados y no tratados durante 24 h  con los compuestos, comparado con el efecto ejercido por las drogas clásicas  pentamidina y eflornitina. La DOG (control positivo) disminuye  significativamente la relación ADP/ATP de las células tratadas luego de 24 h de  incubación (<a href="#fig4">Fig. 4</a>). Sin embargo, ni las drogas clásicas ni los compuestos  experimentales utilizados reproducen este efecto. De igual forma, aunque la DOG,  disminuye los niveles de glucosa, las drogas clásicas y los compuestos  experimentales no afectan este parámetro (datos no mostrados). Estos resultados  sugieren que 37 y 88 no afectan el metabolismo celular, al menos a las primeras  24 h de tratamiento.</font></p>     <p align="center"><a name="fig4"> <img border="0" src="/img/fbpe/avft/v34n4/art01fig4.gif" width="399" height="495"></a></p>     
<p align="justify"><font face="Verdana" size="2"><b>Discusión</b></font></p>     <p align="justify"><font face="Verdana" size="2">En este estudio profundizamos  el análisis de dos compuestos líder sintetizados en el marco del consorcio  liderado por los profesores Gerhard Bringmann y Ulrike Holzgrabe en la  Universidad de Würzburg. Nuestro interés fue determinar si los mismos cumplen  con propiedades que aumenten la probabilidad de su inclusión en ensayos con  animales, preclínicos y clínicos. Específicamente evaluamos si la bisnaftilamida  biscuaternaria (37) y la sal de N-Arylpyridinium (88) son parasitostáticos o  parasiticidas, si actúan de forma sinérgica con las drogas clásicas pentamidina  y eflornitina y si afectan el estado metabólico celular.</font></p>     <p align="justify"><font face="Verdana" size="2">Nuestros resultados sugieren  que 37 es parasiticida y 88 parasitostático, que ambos compuestos actúan de  forma sinérgica con pentamidina y que 37 ejerce un efecto sinérgico con  eflornitina; finalmente describimos que 37 y 88 no alteran la relación celular  ADP / ATP o los niveles de glucosa del parásito, lo cual sugiere que su efecto  no está asociado a la alteración del estado metabólico del parásito.</font></p>     <p align="justify"><font face="Verdana" size="2">El ensayo de la resazurina  proporciona una fotografía puntual de la susceptibilidad de los parásitos a  diversos compuestos<sup>8</sup>. Aunque este ensayo permite calcular valores de  IC<sub>50</sub> reproducibles, no otorga información sobre cómo es la acción de  los mismos. Nuestros resultados sugieren que 37 es parasiticida, es decir, es  capaz de destruir los parásitos. Por otra parte, los ensayos sugieren que 88 es  parasitostático, es decir, es capaz de detener el crecimiento de los parásitos  durante el tiempo en el cual el compuesto está presente en el cultivo.</font></p>     <p align="justify"><font face="Verdana" size="2">Al evaluar el potencial efecto  sinérgico de los compuestos con las drogas clásicas pentamidina y eflornitina  encontramos que este se evidencia al utilizar pentaminina y 37 (incluso a  concentraciones IC<sub>10</sub>) y pentamidina y 88 (utilizado a concentraciones  IC<sub>50</sub>, a las 24 h). El efecto sinérgico de pentamidina y 88 (a  concentraciones IC<sub>50</sub>) se revierte a las 48 h; en estas condiciones  las células reanudan su crecimiento hasta en un 30% del control no tratado.</font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="Verdana" size="2">El efecto sinérgico también se  demostró para eflornitina y 37 (utilizado a concentraciones IC<sub>50</sub>) mas  no para eflornitina y 88 (utilizado a concentraciones IC<sub>90</sub>). Estos  resultados sugieren que el uso combinado de 37 y las drogas clásicas pentamidina  y eflornitina podría ser beneficioso y confirman el efecto parasitostático de  88.</font></p>     <p align="justify"><font face="Verdana" size="2">La pentamidina es una droga  cuya diana es la mitocondria. Esta droga es efectiva incluso en las formas  sanguíneas de <i>T. brucei</i> que no expresan una cadena respiratoria  completamente funcional<sup>11</sup>. Por su parte, la eflornitina, un análogo  de aminoácidos, inhibe a la ornitina decarboxilasa durante la síntesis de las  poliaminas<sup>12</sup>. Estudios anteriores realizados en el marco del  consorcio mencionado sugieren que la diana celular para 37 es el retículo  endoplasmático, mientras la mitocondria y el cinetoplasto lo son para 88.  Nuestros resultados de citometría de flujo sugieren que en los parásitos  tratados con pentamidina y eflornitina, al igual que con 37 y 88 se evidencia  una disminución (no significativa) en el marcaje con Mitotracker, con respecto a  los parásitos no tratados. Esto no ocurre con el resto de los marcadores  utilizados, específicos para compartimientos açídicos, el núcleo y el sistema  retículo endotelial. Los resultados globales sugieren que en las condiciones  ensayadas la citometría de flujo no parece ser un método idóneo para la  identificación específica de las dianas celulares de estos compuestos. Podríamos  especular que debido a que los cultivos de tripanosomas son asincrónicos, aunque  sean monomórficos como es el caso que nos ocupa<sup>13</sup>, no hay una  reproducción simultánea de todos los miembros de la población. La variabilidad  en los estadios de crecimiento podría entonces estar enmascarando el efecto  específico de los compuestos sobre los organelos diana, debido a que la  población de células con la característica morfológica específica debería ser  muy pequeña.</font></p>     <p align="justify"><font face="Verdana" size="2">La glucosa es la fuente de  energía preferencial de los tripanosomas. Estos son células que utilizan  escasamente las mitocondrias para sintetizar ATP y el mecanismo preferencial de  síntesis de esta fuente de energía depende de la glicólisis (en el citosol)<sup>14</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Los tripanosomas están entre el  tipo de células en las que la glicólisis está activa, incluso en presencia de  oxígeno. En otro tipo de células la presencia de oxígeno disminuye el flujo  glucolítico y favorece la producción de ATP via la fosforilación oxidativa.  Bajos niveles de oxígeno en los tripanosomas disminuyen el consumo de glucosa y  altas concentraciones de oxígeno inducen la glicólisis, probablemente para  inducir la proliferación. Es más, se postula que el ATP producido durante la  glicolisis no se utiliza para el crecimiento del parásito; sin embargo, ya que  mediante la glicólisis sólo se producen dos moléculas de ATP, estos parásitos  deben mantener su relación ADP / ATP muy controlada<sup>15</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Por otra parte, las formas  sanguíneas de tripanosoma no tienen una mitocondria “normal” sino una forma  reducida de este organelo. No posee oxidasas de citocromo (pero si una oxidasa  alternativa), el transporte de electrones no genera un potencial de membrana, y  por lo tanto, no se utiliza para producir ATP mediante la fosforilación  oxidativa. Al contrario, la ATPasa que normalmente sintetiza ATP en este  compartimiento lo hidroliza con el fin de generar un potencial de membrana  esencial para la importación de proteínas<sup>14</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Puesto que se ha demostrado que  la inhibición del transporte de glucosa es parasiticida para <i>T. brucei</i><sup>16</sup>  y para evidenciar si los compuestos 37 y 88 alteran el metabolismo parasitario y  comprometen la relación celular ADP /ATP, evaluamos el efecto de ambos  compuestos sobre este parámetro. Comparamos los efectos de 37 y 88 con  florizidina, ya que el transporte de glucosa en las especies sanguíneas del  parasito requiere iones sodio y el florizidin es un inhibidor de este tipo de  transportadores en mamíferos<sup>17</sup> y el desacoplante de la fosforilación  oxidativa CCCP, puesto que se ha demostrado su efecto específico sobre los  tripanosomas<sup>18</sup>.</font></p>     <p align="justify"><font face="Verdana" size="2">Nuestros resultados sugieren  que ni la relación ADP / ATP ni el consumo de glucosa se ven alterados por los  compuestos 37 y 88 en estas condiciones, lo cual parecería evidenciar que estos  compuestos no alteran el estado metabólico de la célula.</font></p>     <p align="justify"><font face="Verdana" size="2">En conclusión, en este trabajo  describimos que el compuesto líder (37) es parasiticida y el 88 es  parasitostático. Que ambos compuestos potencian el efecto de pentamidina y 37 el  de eflornitina y sugieren que su efecto no está relacionado con una alteración  del metabolismo celular.</font></p>     <p align="justify"><font face="Verdana" size="2">Estos resultados indican la  ventaja que traería utilizar un compuesto como 37 para utilizarlo en combinación  con pentamidina o eflornitina a fin de reducir los efectos adversos potenciales  de estas drogas clásicas. Por otra parte sugieren que las propiedades  parasitostáticas de 88, incluso a concentraciones cercanas al IC<sub>90</sub>  podrían ser explotadas para imitar el efecto de una vacunación con parasito  inactivado. Esta acción inhabilitaría al parásito de continuar reproduciéndose  por un tiempo, lo cual facilitaría la acción del sistema inmune.</font></p>     <p align="justify"><font face="Verdana" size="2"><b>Agradecimientos</b></font></p>     ]]></body>
<body><![CDATA[<p align="justify"><font face="Verdana" size="2">A los miembros del consorcio  SFB630 financiado por la Deutsche Forschung Gemainschaft, Alemania y a la  Fundación Alejandro de Humboldt, Alemania por su apoyo financiero a APS. A Antje  Fuß por su apoyo técnico en la realización de los experimentos.</font></p>     <p align="justify"><b><font size="2" face="Verdana">Referencias</font></b></p>     <!-- ref --><p align="justify"><font size="2" face="Verdana">1. WHO. Research priorities for  Chagas disease, human African trypanosomiasis and leishmaniasis. World Health  Organ Tech Rep Ser. 2012; 975: 1–100.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601756&pid=S0798-0264201500040000100001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">2. Bisser S, Courtioux B.  Sleeping sickness: end of the epidemic outbreak? Rev Neurol (Paris). 2012; 168:  230-8.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601757&pid=S0798-0264201500040000100002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">3. Stich A, Ponte-Sucre A,  Holzgrabe U. Do we need new drugs against human African trypanosomiasis? Lancet  Infect Dis. 2013; 13(9):733-4.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601758&pid=S0798-0264201500040000100003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">4. Burri C. Chemotherapy  against human African trypanosomiasis: is there a road to success? Parasitology.  2010; 137(14):1987-94.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601759&pid=S0798-0264201500040000100004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">5. Barrett MP, Croft SL.  Management of trypanosomiasis and leishmaniasis. Br Med Bull. 2012; 104:175-96.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601760&pid=S0798-0264201500040000100005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">6. Hou T, Wang J, Zhang W, Xu  X. ADME evaluation in drug Discovery, 6. Can oral bioavailability in humans be  effectively predicted by simple molecular property-based rules? J Chem Inf Model.  2007; 47:460–3.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601761&pid=S0798-0264201500040000100006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">7. Ponte-Sucre A, Bruhn H,  Schirmeister T, Cecil A, Albert CR, Buechold C, Tischer M, Schlesinger S, Goebel  T, Fuß A, Mathein D, Merget B, Sotriffer CA, Stich A, Krohne G, Engstler M,  Bringmann G, Holzgrabe U. Anti-trypanosomal activities and structural chemical  properties of selected compound classes. Parasitol Res. 2015; 114(2):501-12.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601762&pid=S0798-0264201500040000100007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">8. Mikus J, Steverding D. A  simple colorimetric method to screen drug cytotoxicity against Leishmania using  the dye Alamar Blue. Parasitol Int. 2000; 48(3):265-9.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601763&pid=S0798-0264201500040000100008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">9. Muth M, Hoerr V, Glaser M,  Ponte-Sucre A, Moll H, Stich A, Holzgrabe U. Antitrypanosomal activity of  quaternary naphthalimide derivatives. Bioorg Med Chem Lett. 2007; 17:1590–3.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601764&pid=S0798-0264201500040000100009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">10. Seyfang A, Duszenko M.  Specificity of glucose transport in <i>Trypanosoma brucei</i>. Effective  inhibition by phloretin and cytochalasin B. Eur J Biochem. 1991; 202(1):191-6.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601765&pid=S0798-0264201500040000100010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">11. Monzote Fidalgo L., Gille L.  Mitochondria and Trypanosomatids: Targets and Drugs. Pharm Res. 2011; 28:2758-70.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601766&pid=S0798-0264201500040000100011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">12. Vincent IM, Creek D, Watson  DG, Kamleh MA, Woods DJ, Wong PE, Burchmore RJ, Barrett M. A Molecular Mechanism  for Eflornithine resistance in African Trypanosomes. PLoS Pathog 6(11): e1001204.  doi:10.1371/journal.ppat.1001204.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601767&pid=S0798-0264201500040000100012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">13. Matthews KR, Gull K. Cycles  within cycles: the interplay between differentiation and cell division in <i> Trypanosoma brucei</i>. Parasitol Today. 1994; 10(12):473-6.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601768&pid=S0798-0264201500040000100013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">14. Bringaud F, Rivière L,  Coustou V. Energy metabolism of trypanosomatids: adaptation to available carbon  sources. Mol Biochem Parasitol. 2006; 149(1):1-9.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601769&pid=S0798-0264201500040000100014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">15. Haanstra JR, Kerkhoven EJ,  van Tuijl A, Blits M, Wurst M, van Nuland R, Albert MA, Michels PAM, Bouwman J,  Clayton C, Westerhoff H, Bakker BM1. A domino effect in drug action: from  metabolic assault towards parasite differentiation. Molecular Microbiology, 2011;  79(1): 94–108.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601770&pid=S0798-0264201500040000100015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">16. Haanstra JR, van Tuij A,  van Dam J, van Winden W, Tielens AG, van Hellemond JJ, Bakker BM. Proliferating  bloodstream-form <i>Trypanosoma brucei</i> use a negligible part of consumed  glucose for anabolic processes. Int J Parasitol. 2012; 42(7):667-73.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601771&pid=S0798-0264201500040000100016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">17. Munoz-Antonia T, Richards  FF, Ullu E. Differences in glucose transport between blood stream and procyclic  forms of <i>Trypanosoma brucei</i> rhodesiense. Mol Biochem Parasitol. 1991;  47(1):73-81.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601772&pid=S0798-0264201500040000100017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p align="justify"><font size="2" face="Verdana">18. Stoppani AO, Docampo R, de  Boiso JF, Frasch AC. Effect of inhibitors of electron transport and oxidative  phosphorylation on Trypanosoma cruzi respiration and growth. Mol Biochem  Parasitol. 1980; 2(1):3-21.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=601773&pid=S0798-0264201500040000100018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<collab>WHO</collab>
<article-title xml:lang="en"><![CDATA[Research priorities for Chagas disease, human African trypanosomiasis and leishmaniasis]]></article-title>
<source><![CDATA[World Health Organ Tech Rep Ser]]></source>
<year>2012</year>
<volume>975</volume>
<page-range>1-100</page-range></nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bisser]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Courtioux]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sleeping sickness: end of the epidemic outbreak?]]></article-title>
<source><![CDATA[Rev Neurol (Paris).]]></source>
<year>2012</year>
<volume>168</volume>
<page-range>230-8</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stich]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Ponte-Sucre]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Holzgrabe]]></surname>
<given-names><![CDATA[U]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Do we need new drugs against human African trypanosomiasis?]]></article-title>
<source><![CDATA[Lancet Infect Dis.]]></source>
<year>2013</year>
<volume>13</volume>
<numero>9</numero>
<issue>9</issue>
<page-range>733-4</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Burri]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Chemotherapy against human African trypanosomiasis: is there a road to success?]]></article-title>
<source><![CDATA[Parasitology.]]></source>
<year>2010</year>
<volume>137</volume>
<numero>14</numero>
<issue>14</issue>
<page-range>1987-94</page-range></nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Barrett]]></surname>
<given-names><![CDATA[MP]]></given-names>
</name>
<name>
<surname><![CDATA[Croft]]></surname>
<given-names><![CDATA[SL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Management of trypanosomiasis and leishmaniasis]]></article-title>
<source><![CDATA[Br Med Bull.]]></source>
<year>2012</year>
<volume>104</volume>
<page-range>175-96</page-range></nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hou]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Wang]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Zhang]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
<name>
<surname><![CDATA[Xu]]></surname>
<given-names><![CDATA[X]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[ADME evaluation in drug Discovery, 6: Can oral bioavailability in humans be effectively predicted by simple molecular property-based rules?]]></article-title>
<source><![CDATA[J Chem Inf Model.]]></source>
<year>2007</year>
<volume>47</volume>
<page-range>460-3</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ponte-Sucre]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Bruhn]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Schirmeister]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Cecil]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Albert]]></surname>
<given-names><![CDATA[CR]]></given-names>
</name>
<name>
<surname><![CDATA[Buechold]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Tischer]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Schlesinger]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Goebel]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Fuß]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Mathein]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Merget]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Sotriffer]]></surname>
<given-names><![CDATA[CA]]></given-names>
</name>
<name>
<surname><![CDATA[Stich]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Krohne]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Engstler]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Bringmann]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Holzgrabe]]></surname>
<given-names><![CDATA[U]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Anti-trypanosomal activities and structural chemical properties of selected compound classes]]></article-title>
<source><![CDATA[Parasitol Res.]]></source>
<year>2015</year>
<volume>114</volume>
<numero>2</numero>
<issue>2</issue>
<page-range>501-12</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Mikus]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Steverding]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A simple colorimetric method to screen drug cytotoxicity against Leishmania using the dye Alamar Blue]]></article-title>
<source><![CDATA[Parasitol Int.]]></source>
<year>2000</year>
<volume>48</volume>
<numero>3</numero>
<issue>3</issue>
<page-range>265-9</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Muth]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Hoerr]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Glaser]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Ponte-Sucre]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Moll]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Stich]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Holzgrabe]]></surname>
<given-names><![CDATA[U]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Antitrypanosomal activity of quaternary naphthalimide derivatives]]></article-title>
<source><![CDATA[Bioorg Med Chem Lett.]]></source>
<year>2007</year>
<volume>17</volume>
<page-range>1590-3</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Seyfang]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Duszenko]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Specificity of glucose transport in Trypanosoma brucei: Effective inhibition by phloretin and cytochalasin B]]></article-title>
<source><![CDATA[Eur J Biochem.]]></source>
<year>1991</year>
<volume>202</volume>
<numero>1</numero>
<issue>1</issue>
<page-range>191-6</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Monzote Fidalgo]]></surname>
<given-names><![CDATA[L.]]></given-names>
</name>
<name>
<surname><![CDATA[Gille]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Mitochondria and Trypanosomatids: Targets and Drugs]]></article-title>
<source><![CDATA[Pharm Res.]]></source>
<year>2011</year>
<volume>28</volume>
<page-range>2758-70</page-range></nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Vincent]]></surname>
<given-names><![CDATA[IM]]></given-names>
</name>
<name>
<surname><![CDATA[Creek]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Watson]]></surname>
<given-names><![CDATA[DG]]></given-names>
</name>
<name>
<surname><![CDATA[Kamleh]]></surname>
<given-names><![CDATA[MA]]></given-names>
</name>
<name>
<surname><![CDATA[Woods]]></surname>
<given-names><![CDATA[DJ]]></given-names>
</name>
<name>
<surname><![CDATA[Wong]]></surname>
<given-names><![CDATA[PE]]></given-names>
</name>
<name>
<surname><![CDATA[Burchmore]]></surname>
<given-names><![CDATA[RJ]]></given-names>
</name>
<name>
<surname><![CDATA[Barrett]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A Molecular Mechanism for Eflornithine resistance in African Trypanosomes]]></article-title>
<source><![CDATA[PLoS Pathog]]></source>
<year></year>
<volume>6</volume>
<numero>11</numero>
<issue>11</issue>
<page-range>e1001204</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Matthews]]></surname>
<given-names><![CDATA[KR]]></given-names>
</name>
<name>
<surname><![CDATA[Gull]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cycles within cycles: the interplay between differentiation and cell division in Trypanosoma brucei]]></article-title>
<source><![CDATA[Parasitol Today.]]></source>
<year>1994</year>
<volume>10</volume>
<numero>12</numero>
<issue>12</issue>
<page-range>473-6</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bringaud]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[Rivière]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Coustou]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Energy metabolism of trypanosomatids: adaptation to available carbon sources]]></article-title>
<source><![CDATA[Mol Biochem Parasitol.]]></source>
<year>2006</year>
<volume>149</volume>
<numero>1</numero>
<issue>1</issue>
<page-range>1-9</page-range></nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Haanstra]]></surname>
<given-names><![CDATA[JR]]></given-names>
</name>
<name>
<surname><![CDATA[Kerkhoven]]></surname>
<given-names><![CDATA[EJ]]></given-names>
</name>
<name>
<surname><![CDATA[van Tuijl]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Blits]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[Wurst]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[van Nuland]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Albert]]></surname>
<given-names><![CDATA[MA]]></given-names>
</name>
<name>
<surname><![CDATA[Michels]]></surname>
<given-names><![CDATA[PAM]]></given-names>
</name>
<name>
<surname><![CDATA[Bouwman]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Clayton]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Westerhoff]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Bakker]]></surname>
<given-names><![CDATA[BM1]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A domino effect in drug action: from metabolic assault towards parasite differentiation]]></article-title>
<source><![CDATA[Molecular Microbiology]]></source>
<year>2011</year>
<volume>79</volume>
<numero>1</numero>
<issue>1</issue>
<page-range>94-108</page-range></nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Haanstra]]></surname>
<given-names><![CDATA[JR]]></given-names>
</name>
<name>
<surname><![CDATA[van Tuij]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[van Dam]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[van Winden]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
<name>
<surname><![CDATA[Tielens]]></surname>
<given-names><![CDATA[AG]]></given-names>
</name>
<name>
<surname><![CDATA[van Hellemond]]></surname>
<given-names><![CDATA[JJ]]></given-names>
</name>
<name>
<surname><![CDATA[Bakker]]></surname>
<given-names><![CDATA[BM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Proliferating bloodstream-form Trypanosoma brucei use a negligible part of consumed glucose for anabolic processes]]></article-title>
<source><![CDATA[Int J Parasitol.]]></source>
<year>2012</year>
<volume>42</volume>
<numero>7</numero>
<issue>7</issue>
<page-range>667-73</page-range></nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Munoz-Antonia]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Richards]]></surname>
<given-names><![CDATA[FF]]></given-names>
</name>
<name>
<surname><![CDATA[Ullu]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Differences in glucose transport between blood stream and procyclic forms of Trypanosoma brucei rhodesiense]]></article-title>
<source><![CDATA[Mol Biochem Parasitol.]]></source>
<year>1991</year>
<volume>47</volume>
<numero>1</numero>
<issue>1</issue>
<page-range>73-81</page-range></nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stoppani]]></surname>
<given-names><![CDATA[AO]]></given-names>
</name>
<name>
<surname><![CDATA[Docampo]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[de Boiso]]></surname>
<given-names><![CDATA[JF]]></given-names>
</name>
<name>
<surname><![CDATA[Frasch]]></surname>
<given-names><![CDATA[AC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effect of inhibitors of electron transport and oxidative phosphorylation on Trypanosoma cruzi respiration and growth]]></article-title>
<source><![CDATA[Mol Biochem Parasitol.]]></source>
<year>1980</year>
<volume>2</volume>
<numero>1</numero>
<issue>1</issue>
<page-range>3-21</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>