<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0378-1844</journal-id>
<journal-title><![CDATA[Interciencia]]></journal-title>
<abbrev-journal-title><![CDATA[INCI]]></abbrev-journal-title>
<issn>0378-1844</issn>
<publisher>
<publisher-name><![CDATA[ASOCIACIÓN INTERCIENCIA]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0378-18442006000600009</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Recuperación del genoma del padre recurrente en un programa de retrocruzas asistido por marcadores en arroz]]></article-title>
<article-title xml:lang="en"><![CDATA[RECURRENT PARENT GENOME RECOVERY IN A MARKER ASSISTED BACKCROSS BREEDING PROGRAM IN RICE]]></article-title>
<article-title xml:lang="pt"><![CDATA[RECUPERAÇÃO DO GENOMA DO PADRE RECORRENTE EM UM PROGRAMA DE RETROCRUZAS ASSISTIDO POR MARCADORES EM ARROZ]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Arnao]]></surname>
<given-names><![CDATA[Erika]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Borges]]></surname>
<given-names><![CDATA[Orangel]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Ramis]]></surname>
<given-names><![CDATA[Catalina]]></given-names>
</name>
<xref ref-type="aff" rid="A03"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Díaz]]></surname>
<given-names><![CDATA[Antonio]]></given-names>
</name>
<xref ref-type="aff" rid="A04"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Galindo]]></surname>
<given-names><![CDATA[Iván]]></given-names>
</name>
<xref ref-type="aff" rid="A05"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Fundación Danac  ]]></institution>
<addr-line><![CDATA[San Javier Yaracuy]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A02">
<institution><![CDATA[,UCV Facultad de Agronomía ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A03">
<institution><![CDATA[,UCV Facultad de Agronomía ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A04">
<institution><![CDATA[,UCV Facultad de Agronomía ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A05">
<institution><![CDATA[,Fundación Instituto de Estudios Avanzados (IDEA)  ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>06</month>
<year>2006</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>06</month>
<year>2006</year>
</pub-date>
<volume>31</volume>
<numero>6</numero>
<fpage>431</fpage>
<lpage>436</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0378-18442006000600009&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0378-18442006000600009&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0378-18442006000600009&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[La piricularia (Pyricularia grisea (Cooke) Sacc.) es una de las enfermedades más destructivas del arroz a nivel mundial. El uso de cultivares resistentes es la vía más efectiva y económica de controlar la enfermedad. El método de la retrocruza es el más empleado para la incorporación de genes simples de resistencia. Sin embargo, el proceso se dificulta cuando existe ligamiento de estos genes con características indeseables, el cual puede ser difícil de romper, aún después de muchas generaciones de retrocruzas. La selección asistida por marcadores (SAM) contribuye a facilitar la recuperación del genoma del padre recurrente (PR) en un menor número de generaciones. El objetivo del presente estudio fue la recuperación del genoma del PR utilizando marcadores moleculares en generaciones tempranas de un programa de retrocruzas para la incorporación de un gen de resistencia a P. grisea. En los parentales se evaluaron 36 microsatélites ubicados en los 12 cromosomas del arroz; aquellos que mostraron polimorfismo se evaluaron en plantas de las generaciones RC2F2 y RC3F1. La SAM permitió identificar plantas 100% similares al PR para los loci evaluados en ambas generaciones de retrocruzas; sin embargo, la proporción fue mayor en la RC3F1 que en RC2F2. Se identificaron regiones cromosómicas candidatas en los cromosomas 4 y 7 para la futura identificación del gen de resistencia incorporado. La aplicación de SAM en el programa de retrocruzas permitió la recuperación del genoma del PR en pocas generaciones, reduciendo el tiempo necesario en el proceso de mejoramiento para incorporar resistencia a piricularia.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[Rice blast (Pyricularia grisea (Cooke) Sacc.) is one of the most destructive diseases of rice world-wide. The deployment of resistant cultivars is the most effective and economic way for controlling the disease. The backcross breeding is the method most commonly used for incorporating single resistance genes. It is limited by the presence of linkage between the resistance gene and undesirable traits, which may persist even after many generations of backcrossing. Marker assisted selection (MAS) contributes to overcome the main limitation of the backcross breeding, accelerating the recovery of the recurrent parent (RP) genome. The purpose of this study was the recovery of the RP genome in early generations of backcrossing by using molecular markers. Thirty six microsatellites located in the 12 rice chromosomes were evaluated in the parents and the polymorphic ones were evaluated in plants of the BC2F2 and BC3F1 generations. MAS allowed identification of plants which were 100% similar to the RP for the loci evaluated in both generations of backcrossing. However, the probability of finding those genotypes was greater in BC3F1 than in BC2F2. Some chromosomal regions were identified as candidates for mapping the resistance gene in chromosomes 4 and 7. The application of MAS on this backcrossing breeding program accelerated the recovery of the RP genome, reducing the number of generations and the time for incorporating resistance to rice blast.]]></p></abstract>
<abstract abstract-type="short" xml:lang="pt"><p><![CDATA[O Índice de Vegetação da Diferença Normalizada (IVN) é um índice espectral derivado de sensores a bordo de satélites que mostra uma relação positiva e linear com a fração da radiação fotossinteticamente ativa absorvida pelo dossel. Por isto o IVN é um bom estimador da produtividade, um dos principais atributos ecossistêmicos. Neste trabalho caracterizamos os ecossistemas do Uruguai com base em três atributos derivados da curva estacional do IVN, obtidos a partir de 20 anos de imagens dos satélites NOAA/AVHRR (1981-2000). Foi calculada a integral anual do IVN (IVN-I), usada como estimador da produtividade primária líquida aérea, o mês de máximo de IVN (IVN-MDM) e o rango relativo de IVN (IVN-REEL), características que dão conta da sazonalidade da produtividade primária e refletem aspectos centrais do funcionamento dos ecossistemas. De acordo com o comportamento destes três atributos, cada porção do território uruguaio, foi classificada como um tipo funcional de ecossistema (TFE) combinando métodos de classificação não supervisionados, supervisionados e análise hierárquica. Identificaram-se 6 TFE que diferem significativamente uns de outros. A variação espacial dos três atributos utilizados associa-se principalmente às regiões geomorfológicas e aos padrões de uso do solo, e não às variáveis climáticas.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Microsatélites]]></kwd>
<kwd lng="es"><![CDATA[Piricularia]]></kwd>
<kwd lng="es"><![CDATA[Resistencia]]></kwd>
<kwd lng="es"><![CDATA[SAM]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[   <B>    <P align="center"><font face="Verdana" size="3">RECUPERACI&Oacute;N DEL GENOMA DEL PADRE RECURRENTE EN UN PROGRAMA DE RETROCRUZAS ASISTIDO POR MARCADORES EN ARROZ</font> </P>     <P align="center"><font face="Verdana" size="2">Erika Arnao, Orangel Borges, Catalina Ramis, Antonio D&iacute;az e Iv&aacute;n Galindo</font></P> </B>    <P align="justify"><font face="Verdana" size="2"><b>Erika A. Arnao T.</b> Ingeniero Agr&oacute;nomo y Mag&iacute;ster en Agronom&iacute;a, Universidad Central de Venezuela (UCV). Investigador, Fundaci&oacute;n para la Investigaci&oacute;n Agr&iacute;cola Danac, Venezuela. Direcci&oacute;n: Fundaci&oacute;n Danac, Apartado Postal 182, San Javier-v&iacute;a Guarataro, Edo. Yaracuy, Venezuela. e-mail: earnao@danac.org.ve</font></P>     <P align="justify"><font face="Verdana" size="2"><b>Orangel L. Borges F.</b> Ingeniero Agr&oacute;nomo, UCV, Venezuela. M.Sc. en Agronom&iacute;a y Ph.D. en Gen&eacute;tica, University of California, Davis, EEUU. Profesor, Facultad de Agronom&iacute;a, UCV, Venezuela. e-mail: oborges@cantv.net</font></P>     <P align="justify"><font face="Verdana" size="2"><b>Catalina M. Ramis J. </b> Ingeniera Agr&oacute;noma, UCV, Venezuela. Docteur, Universit&eacute; de Rouen, Francia. Profesora, Facultad de Agronom&iacute;a, UCV, Venezuela. e-mail: cmcramis@yahoo.es</font></P>     <P align="justify"><font face="Verdana" size="2"><b>Antonio J. D&iacute;az P.</b> Ingeniero Agr&oacute;nomo y Mag&iacute;ster en Agronom&iacute;a, UCV, Venezuela. Profesor, Facultad de Agronom&iacute;a, UCV, Venezuela. e-mail: adiape@cantv.net</font></P>     <P align="justify"><font face="Verdana" size="2"><b>Iv&aacute;n F. Galindo C.</b> Licenciado en Biolog&iacute;a, UCV, Venezuela. Doctor en Biolog&iacute;a Celular, Universidad Sim&oacute;n Bol&iacute;var, Venezuela. Investigador, Fundaci&oacute;n Instituto de Estudios Avanzados (IDEA), Venezuela. e-mail: igalindo@idea.org.ve</font></P>     <P align="justify"><font face="Verdana" size="2"><b>RESUMEN</b></font></P>      <P align="justify"><font face="Verdana" size="2">La piricularia (Pyricularia grisea (Cooke) Sacc.) es una de las enfermedades m&aacute;s destructivas del arroz a nivel mundial. El uso de cultivares resistentes es la v&iacute;a m&aacute;s efectiva y econ&oacute;mica de controlar la enfermedad. El m&eacute;todo de la retrocruza es el m&aacute;s empleado para la incorporaci&oacute;n de genes simples de resistencia. Sin embargo, el proceso se dificulta cuando existe ligamiento de estos genes con caracter&iacute;sticas indeseables, el cual puede ser dif&iacute;cil de romper, a&uacute;n despu&eacute;s de muchas generaciones de retrocruzas. La selecci&oacute;n asistida por marcadores (SAM) contribuye a facilitar la recuperaci&oacute;n del genoma del padre recurrente (PR) en un menor n&uacute;mero de generaciones. El objetivo del presente estudio fue la recuperaci&oacute;n del genoma del PR utilizando marcadores moleculares en generaciones tempranas de un programa de retrocruzas para la incorporaci&oacute;n de un gen de resistencia a P. grisea. En los parentales se evaluaron 36 microsat&eacute;lites ubicados en los 12 cromosomas del arroz; aquellos que mostraron polimorfismo se evaluaron en plantas de las generaciones RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub>. La SAM permiti&oacute; identificar plantas 100% similares al PR para los loci evaluados en ambas generaciones de retrocruzas;<B> </B>sin embargo, la proporci&oacute;n fue mayor en la RC<sub>3</sub>F<sub>1</sub> que en RC<sub>2</sub>F<sub>2</sub>. Se identificaron regiones cromos&oacute;micas candidatas en los cromosomas 4 y 7 para la futura identificaci&oacute;n del gen de resistencia incorporado. La aplicaci&oacute;n de SAM en el programa de retrocruzas permiti&oacute; la recuperaci&oacute;n del genoma del PR en pocas generaciones, reduciendo el tiempo necesario en el proceso de mejoramiento para incorporar resistencia a piricularia.</font></P>  <B>    ]]></body>
<body><![CDATA[<P align="center"><font face="Verdana" size="2">RECURRENT PARENT GENOME RECOVERY IN A MARKER ASSISTED BACKCROSS BREEDING PROGRAM IN RICE</font></B> </P>     <P align="justify"><font face="Verdana" size="2"><b>SUMMARY</b></font></P>      <P align="justify"><font face="Verdana" size="2">Rice blast (Pyricularia grisea (Cooke) Sacc.) is one of the most destructive diseases of rice world-wide. The deployment of resistant cultivars is the most effective and economic way for controlling the disease. The backcross breeding is the method most commonly used for incorporating single resistance genes. It is limited by the presence of linkage between the resistance gene and undesirable traits, which may persist even after many generations of backcrossing. Marker assisted selection (MAS) contributes to overcome the main limitation of the backcross breeding, accelerating the recovery of the recurrent parent (RP) genome. The purpose of this study was the recovery of the RP genome in early generations of backcrossing by using molecular markers. Thirty six microsatellites located in the 12 rice chromosomes were evaluated in the parents and the polymorphic ones were evaluated in plants of the BC<sub>2</sub>F<sub>2</sub> and BC<sub>3</sub>F<sub>1</sub> generations. MAS allowed identification of plants which were 100% similar to the RP for the loci evaluated in both generations of backcrossing. However, the probability of finding those genotypes was greater in BC<sub>3</sub>F<sub>1</sub> than in BC<sub>2</sub>F<sub>2</sub>. Some chromosomal regions were identified as candidates for mapping the resistance gene in chromosomes 4 and 7. The application of MAS on this backcrossing breeding program accelerated the recovery of the RP genome, reducing the number of generations and the time for incorporating resistance to rice blast.</font></P>  <B>    <P align="center"><font face="Verdana" size="2">RECUPERA&Ccedil;&Atilde;O DO GENOMA DO PADRE RECORRENTE EM UM PROGRAMA DE RETROCRUZAS ASSISTIDO POR MARCADORES EM ARROZ</font></P> </B>     <P align="justify"><font face="Verdana" size="2"><b>RESUMO</b></font></P>      <P align="justify"><font face="Verdana" size="2">O &Iacute;ndice de Vegeta&ccedil;&atilde;o da Diferen&ccedil;a Normalizada (IVN) &eacute; um &iacute;ndice espectral derivado de sensores a bordo de sat&eacute;lites que mostra uma rela&ccedil;&atilde;o positiva e linear com a fra&ccedil;&atilde;o da radia&ccedil;&atilde;o fotossinteticamente ativa absorvida pelo dossel. Por isto o IVN &eacute; um bom estimador da produtividade, um dos principais atributos ecossist&ecirc;micos. Neste trabalho caracterizamos os ecossistemas do Uruguai com base em tr&ecirc;s atributos derivados da curva estacional do IVN, obtidos a partir de 20 anos de imagens dos sat&eacute;lites NOAA/AVHRR (1981-2000). Foi calculada a integral anual do IVN (IVN-I), usada como estimador da produtividade prim&aacute;ria l&iacute;quida a&eacute;rea, o m&ecirc;s de m&aacute;ximo de IVN (IVN-MDM) e o rango relativo de IVN (IVN-REEL), caracter&iacute;sticas que d&atilde;o conta da sazonalidade da produtividade prim&aacute;ria e refletem aspectos centrais do funcionamento dos ecossistemas. De acordo com o comportamento destes tr&ecirc;s atributos, cada por&ccedil;&atilde;o do territ&oacute;rio uruguaio, foi classificada como um tipo funcional de ecossistema (TFE) combinando m&eacute;todos de classifica&ccedil;&atilde;o n&atilde;o supervisionados, supervisionados e an&aacute;lise hier&aacute;rquica. Identificaram-se 6 TFE que diferem significativamente uns de outros. A varia&ccedil;&atilde;o espacial dos tr&ecirc;s atributos utilizados associa-se principalmente &agrave;s regi&otilde;es geomorfol&oacute;gicas e aos padr&otilde;es de uso do solo, e n&atilde;o &agrave;s vari&aacute;veis clim&aacute;ticas.</font> </P>  <B>    <P align="justify"><font face="Verdana" size="2">Palabras clave </font> </B><font size="2" face="Verdana">/ Microsat&eacute;lites / Piricularia / Resistencia / SAM /</font></P> <FONT SIZE=2>    <P align="justify"><font face="Verdana" size="2">Recibido: 10/11/2004. Modificado: 21/03/2006. Aceptado: 07/04/2006.</font></P> </FONT><B>    <P align="justify"><font face="Verdana" size="2">Introducci&oacute;n</font></P> </B>     <P align="justify"><font face="Verdana" size="2">El arroz (Oryza sativa L.) constituye la base alimenticia para gran parte de la poblaci&oacute;n mundial, siendo el cereal m&aacute;s cultivado despu&eacute;s del trigo y el tercero en producci&oacute;n (FAO, 1993). Este cultivo se ve amenazado por numerosas enfermedades y problemas causados por agentes bi&oacute;ticos y por factores abi&oacute;ticos (Casta&ntilde;o, 1985). Dentro de &eacute;stas, la enfermedad conocida como piricularia, causada por el hongo Pyricularia grisea (Cooke) Sacc., es la principal limitante de la producci&oacute;n a nivel mundial (Ou, 1985).</font></P>     ]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">El empleo de variedades resistentes y la aplicaci&oacute;n de fungicidas son los principales m&eacute;todos de control de la enfermedad usados actualmente. Sin embargo, el uso de fungicidas no siempre es econ&oacute;mico ni deseable para el medio ambiente y la resistencia de las variedades comerciales ha sido de poca duraci&oacute;n, entre otras razones, por el surgimiento de nuevas razas del hongo compatibles con los genes de resistencia de los cultivares liberados (Correa y Zeigler, 1993; Guimar&atilde;es et al., 1996).</font></P>     <P align="justify"><font face="Verdana" size="2">El m&eacute;todo de mejoramiento por retrocruzas es el m&aacute;s utilizado para la incorporaci&oacute;n de genes simples de resistencia a P. grisea, minimizando la probabilidad de transferir caracter&iacute;sticas indeseables del padre donante (PD) con el gen resistencia. Una de las principales limitantes del m&eacute;todo es que para obtener una progenie gen&eacute;ticamente id&eacute;ntica al padre recurrente (PR), excepto para el gen a ser incorporado, son necesarias de 6 a 7 generaciones de retrocruzas (Stam y Zeven, 1981; Tanskley et al., 1989). La selecci&oacute;n asistida por marcadores moleculares (SAM) abre muchas posibilidades a la incorporaci&oacute;n de genes por retrocruzas, al reducir el n&uacute;mero de generaciones necesarias para la recuperaci&oacute;n del genoma del PR mientras se fija el gen incorporado (Paterson, 1996).</font></P>     <P align="justify"><font face="Verdana" size="2">En arroz existe un n&uacute;mero considerable de investigadores que est&aacute;n comenzando a usar marcadores moleculares para la transferencia simult&aacute;nea de dos o m&aacute;s genes de resistencia a enfermedades importantes como lo son el a&ntilde;ublo bacterial causado por Xanthomonas oryzae pv. oryzae y la piricularia causada por P. grisea. Por ejemplo, Huang et al. (1997) piramidaron mediante marcadores moleculares cuatro genes (Xa4, Xa5, Xa13 y X21) que confieren amplio espectro de resistencia al a&ntilde;ublo bacteriano. S&aacute;nchez et al. (2000) transfirieron tres genes de resistencia a la misma enfermedad a tres l&iacute;neas susceptibles que pose&iacute;an caracter&iacute;sticas agron&oacute;micas deseables. Hittalmani et al. (2000) usaron la SAM para combinar los genes Pi1, Piz-5 y Pita que confieren resistencia a piricularia en un solo genotipo.</font></P>     <P align="justify"><font face="Verdana" size="2">El impacto de la SAM ha sido mayor en los programas de mejoramiento para transferir genes de resistencia mediante retrocruzas, donde adem&aacute;s de los marcadores ligados a genes espec&iacute;ficos, los marcadores distribuidos en el genoma permiten la selecci&oacute;n de plantas gen&eacute;ticamente similares al PR (Young y Tanksley, 1989). Chen et al. (2000) usaron SAM para transferir el gen Xa21 al cultivar &quot;Minguini 63&quot;, un padre ampliamente usado para la producci&oacute;n de h&iacute;bridos en China. Los marcadores permitieron seguir la presencia del gen y acelerar la recuperaci&oacute;n del genoma de &quot;Minguini 63&quot;. Estos estudios han demostrado la factibilidad de usar SAM para piramidar genes y acelerar los programas de mejoramiento hasta en tres generaciones de retrocruzas, lo que se traduce en ahorro de tiempo y dinero.</font></P>     <P align="justify"><font face="Verdana" size="2">El objetivo de este estudio fue acelerar la recuperaci&oacute;n del genoma del padre recurrente, mediante la detecci&oacute;n de plantas id&eacute;nticas al PR para un conjunto de marcadores moleculares utilizados en generaciones tempranas en un programa de retrocruzas para la incorporaci&oacute;n de un gen de resistencia a P. grisea. Se caracteriz&oacute; la relaci&oacute;n entre la proporci&oacute;n del genoma del PR y el porcentaje de similitud fenot&iacute;pica con este padre, de tal forma de conocer cuales marcadores est&aacute;n asociados con genes responsables de la morfolog&iacute;a.</font></P>  <B>    <P align="justify"><font face="Verdana" size="2">Materiales y M&eacute;todos</font></P> </B>     <P align="justify"><font face="Verdana" size="2">Material Vegetal</font></P>     <P align="justify"><font face="Verdana" size="2">En 1988 se inici&oacute; el programa de retrocruzas para incorporar el gen de resistencia a P. grisea. Como PR se us&oacute; la variedad comercial &quot;Cimarr&oacute;n&quot;, que presenta excelente calidad industrial y caracter&iacute;sticas agron&oacute;micas deseables; sin embargo, tiene la desventaja de ser susceptible a piricularia. Como PD se utiliz&oacute; la variedad &quot;Fonaiap 1&quot;, conocida por mostrar un amplio espectro de resistencia a<B> </B>P. grisea. El esquema de retrocruza forma parte de un programa de mejoramiento que contempla la producci&oacute;n de l&iacute;neas isog&eacute;nicas con diferentes genes de resistencia, las cuales pueden ser utilizadas para construir pir&aacute;mides de genes que ofrezcan una protecci&oacute;n m&aacute;s durable a la piricularia.</font></P>     <P align="justify"><font face="Verdana" size="2">Evaluaci&oacute;n de la resistencia</font> </P>     <P align="justify"><font face="Verdana" size="2">Las plantas de las generaciones RC<sub>1</sub>F<sub>1</sub>, RC<sub>1</sub>F<sub>2</sub>, RC<sub>2</sub>F<sub>1</sub>, RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub> fueron evaluadas por su resistencia al hongo P. grisea. En cada caso se seleccionaron los individuos resistentes para la obtenci&oacute;n de la siguiente generaci&oacute;n. Las muestras de semilla se sembraron en el invernadero en bandejas de 50×20cm y se inocularon a los 21 d&iacute;as despu&eacute;s de la siembra (dds). El in&oacute;culo consisti&oacute; de una suspensi&oacute;n de conidias (5×10<sup>5</sup> conidias/cc) del aislamiento monsp&oacute;rico 39003 de P. grisea. Dicho aislamiento pertenece al linaje venezolano 1, es el de mayor frecuencia en la poblaci&oacute;n del pat&oacute;geno en Venezuela y ha mostrado un amplio espectro de virulencia en un grupo de cultivares diferenciadores. Ocho d&iacute;as despu&eacute;s de la inoculaci&oacute;n, se realiz&oacute; la evaluaci&oacute;n para seleccionar las plantas resistentes, utilizando la escala del IRRI para P. grisea, modificada en el CIAT (Fernando J. Correa-Victoria, comunicaci&oacute;n personal).</font></P>      ]]></body>
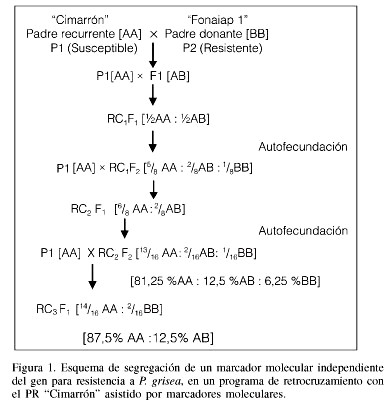
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">Evaluaci&oacute;n molecular</font></P>      <P align="justify"><font face="Verdana" size="2">Extracci&oacute;n y cuantificaci&oacute;n del ADN. El n&uacute;mero de plantas resistentes seleccionadas para las evaluaciones morfol&oacute;gicas y moleculares en la RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub> fue de 123 y 185, respectivamente. En &eacute;stas se realiz&oacute; la extracci&oacute;n del ADN utilizando el m&eacute;todo descrito por Dellaporta et al. (1983) con modificaciones menores. La calidad y cantidad del ADN se verific&oacute; en geles de agarosa al 0,8%, utilizando como referencia un marcador de peso molecular conocido (ADN del bacteri&oacute;fago Lambda).</font></P>      <P align="justify"><font face="Verdana" size="2">Selecci&oacute;n de iniciadores microsat&eacute;lites polim&oacute;rficos. Para seleccionar los microsat&eacute;lites polim&oacute;rficos a ser evaluados en la progenie se probaron en los parentales &quot;Cimarr&oacute;n&quot; y &quot;Fonaiap 1&quot; 36 SSR ubicados en los 12 cromosomas del arroz. Cada reacci&oacute;n de PCR se desarroll&oacute; en un volumen final de 20µl, el cual conten&iacute;a tamp&oacute;n para PCR (10mM Tris-HCl, pH 8,3; 50mM KCl); 1,5mM MgCl; 0,325mM dNTPs; 0,2µM de cada iniciador directo y reverso; 0,5U de taq polimerasa y 20ng de ADN. La amplificaci&oacute;n del ADN se realiz&oacute; en un termociclador MJ Research<sup>&reg;</sup> modelo PT-100, bajo los siguientes perfiles de temperatura: un ciclo de desnaturalizaci&oacute;n inicial por 5min a 94ºC, seguido por 34 ciclos de desnaturalizaci&oacute;n a 94ºC por 45seg; 2min de alineamiento de los iniciadores a 56ºC y 15seg de extensi&oacute;n a 72ºC. Por &uacute;ltimo, se agreg&oacute; un ciclo de extensi&oacute;n final a 72ºC por 5min.</font></P>      <P align="justify"><font face="Verdana" size="2">Electroforesis. Los productos amplificados fueron sometidos a electroforesis en geles de agarosa al 3% o poliacrilamida al 6%, dependiendo del tama&ntilde;o del segmento de ADN amplificado. Se usaron marcadores de talla molecular para establecer el tama&ntilde;o (pb) de los diferentes alelos. Una vez realizada la electroforesis se procedi&oacute; a la tinci&oacute;n con bromuro de etidio (geles de agarosa) o nitrato de plata (geles de poliacrilamida) usando el kit Promega (SILVER SEQUENCE&trade;). Estos &uacute;ltimos se dejaron secar por 24h para proceder a examinarlos y registrar la informaci&oacute;n.</font></P>      <P align="justify"><font face="Verdana" size="2">Evaluaci&oacute;n de los microsat&eacute;lites en la progenie. Los iniciadores que generaron polimorfismo en los padres fueron evaluados en la progenie. La amplificaci&oacute;n del ADN y la electroforesis se realizaron bajo las condiciones previamente estandarizadas. La informaci&oacute;n de los microsat&eacute;lites en la progenie incluy&oacute; la caracterizaci&oacute;n gen&eacute;tica. Cada locus microsatelital se registr&oacute; en una matriz con una fila para cada individuo y una columna para cada locus. Se consideraron homocigotos aquellos individuos que presentaron una sola banda id&eacute;ntica a la de uno de los padres y heterocigotos los que presentaron las dos bandas, registr&aacute;ndose tres genotipos: AA= homocigotos para el padre recurrente &quot;Cimarr&oacute;n&quot;, AB= heterocigotos, y BB= homocigotos para el padre donante &quot;Fonaiap1&quot;.</font></P>     <P align="justify"><font face="Verdana" size="2">Evaluaci&oacute;n morfol&oacute;gica</font></P>     <P align="justify"><font face="Verdana" size="2">Para detectar alguna relaci&oacute;n entre los individuos seleccionados por presentar una mayor proporci&oacute;n del genoma del GPR y el fenotipo caracter&iacute;stico de la variedad, las plantas resistentes seleccionadas se transplantaron al campo para realizar la evaluaci&oacute;n fenot&iacute;pica planta a planta, en hileras de 3m de largo, con una distancia de siembra de 30cm entre hileras y 25cm entre plantas. Se sembraron cuatro hileras del PR &quot;Cimarr&oacute;n&quot; cada 10 hileras para fines de comparaci&oacute;n.<B> </B>Las mediciones se realizaron en cada planta utilizando descriptores varietales que incluyeron n&uacute;mero de macollos, d&iacute;as a floraci&oacute;n, altura de la planta y longitud de la hoja bandera. Tambi&eacute;n se evalu&oacute; el aspecto general de la planta en comparaci&oacute;n con &quot;Cimarr&oacute;n&quot; mediante una escala de 1 a 3, donde 1, 2 y 3 corresponden a muy parecido, moderadamente parecido y ning&uacute;n parecido a cimarr&oacute;n, respectivamente.</font></P>     <P align="justify"><font face="Verdana" size="2">An&aacute;lisis de resultados</font></P>     <P align="justify"><font face="Verdana" size="2">Se utiliz&oacute; el programa GGT (Van Beerlo, 1999) para cuantificar en los individuos de la RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub> la proporci&oacute;n del GPR. Se obtuvo una representaci&oacute;n gr&aacute;fica de las regiones cromos&oacute;micas evaluadas, tanto por grupo de ligamiento como por individuos, as&iacute; como las estad&iacute;sticas acerca de la proporci&oacute;n del genoma que provino de cada padre. Los individuos con mayor proporci&oacute;n del PR fueron seleccionados y usados como padres de la siguiente generaci&oacute;n.</font></P>     <P align="justify"><font face="Verdana" size="2">De acuerdo al esquema de cruzamiento, se esper&oacute; para cada marcador independiente del gen de resistencia las proporciones genot&iacute;picas 13/16AA : 2/16AB 1: 1/16BB en RC<sub>2</sub>F<sub>2</sub> y 7/8AA : 1/8AB en la RC<sub>3</sub>F<sub>1</sub>  (<a href="#fig1">Figura 1</a>). Para verificar si cada marcador SSR se ajustaba a la segregaci&oacute;n esperada, se estim&oacute; la frecuencia genot&iacute;pica observada y su intervalo de confianza (IC), asumiendo una distribuci&oacute;n binomial. Se prob&oacute; si la proporci&oacute;n te&oacute;rica quedaba incluida dentro del intervalo de confianza, donde su aceptaci&oacute;n sugerir&iacute;a una segregaci&oacute;n no sujeta a selecci&oacute;n alguna.</font></P>      ]]></body>
<body><![CDATA[<P align="center"><font face="Verdana" size="2"><a name="fig1"><IMG SRC="/img/fbpe/inci/v31n6/Image202.jpg" WIDTH=389 HEIGHT=404></a></font></P>      
<P align="justify"><font face="Verdana" size="2">Para estimar la relaci&oacute;n de los individuos seleccionados por presentar mayor porcentaje de similitud genot&iacute;pica (PSG) con cimarr&oacute;n y las variables morfol&oacute;gicas, las variables cuantitativas n&uacute;mero de macollos, d&iacute;as a floraci&oacute;n, altura de la plantas y longitud de la hoja bandera fueron analizadas por m&eacute;todos param&eacute;tricos. Para ello se calcul&oacute; el IC para cada variable con una confianza de 95%. Considerando los IC de cada variable se formaron dos clases, una para los individuos cuyo valor de la variable esta incluida dentro del IC y otra para los individuos donde el valor de la variable estaba excluido. Se realiz&oacute; el an&aacute;lisis de las varianzas aplicando una prueba de t normal cuando las variables cumpl&iacute;an con el supuesto de normalidad y una prueba de t aproximada cuando las variables violaron dicho supuesto. Se utiliz&oacute; el programa estad&iacute;stico SAS para estos an&aacute;lisis.</font></P>     <P align="justify"><font face="Verdana" size="2">Para medir el grado de asociaci&oacute;n de las variables morfol&oacute;gicas con los marcadores moleculares se estim&oacute; la correlaci&oacute;n de una medida de distancia fenot&iacute;pica entre cada individuo y el PR versus el PSG. La distancia fenot&iacute;pica se bas&oacute; en la distancia euclideana obtenida a partir de las variables estandarizadas, seg&uacute;n el programa NTSYS (versi&oacute;n 2.0)</font></P>  <B>    <P align="justify"><font face="Verdana" size="2">Resultados y Discusi&oacute;n</font></P> </B>     <P align="justify"><font face="Verdana" size="2">De los 36 iniciadores evaluados en los parentales solo 21 (58,33%) resultaron polim&oacute;rficos; dichos iniciadores se encuentran distribuidos en casi todos los cromosomas del arroz excepto de los cromosomas 1 y 3 (<a href="#t1">Tabla I</a>).</font></P>      <P align="center"><font face="Verdana" size="2"><a name="t1"><IMG SRC="/img/fbpe/inci/v31n6/Image203.jpg" WIDTH=577 HEIGHT=476></a></font></P>      
<P align="justify"><font face="Verdana" size="2">En promedio, el porcentaje de individuos homocigotos para el PR aument&oacute; de la RC<sub>2</sub>F<sub>2</sub> (83,84%) a la RC<sub>3</sub>F<sub>1</sub> (91,66%) como era de esperarse por la continua introducci&oacute;n en la poblaci&oacute;n de alelos del PR. En la RC<sub>2</sub>F<sub>2</sub>, el 1,62% de las plantas evaluadas presentaron 100% de similitud con el PR para los marcadores evaluados, mientras que en RC<sub>3</sub>F<sub>1</sub> el porcentaje fue 11,35%. La mayor&iacute;a de los individuos mostraron entre 80,95 a 85,71 y 85,7 a 90,48% de similitud en la RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub>, respectivamente (<a href="#fig2">Figura 2</a>).</font></P>      <P align="center"><font face="Verdana" size="2"><a name="fig2"><IMG SRC="/img/fbpe/inci/v31n6/Image204.jpg" WIDTH=390 HEIGHT=247></a></font></P>      
<P align="justify"><font face="Verdana" size="2">De los 21 iniciadores polim&oacute;rficos evaluados en las progenies (RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub>), 11 resultaron ser homocigotos para el PR en todos los individuos analizados, indicando que la mayor&iacute;a de los alelos del PR ya hab&iacute;an sido fijados en la RC<sub>2</sub>F<sub>2</sub>. Por otro lado, los iniciadores que segregaron presentaron un comportamiento un poco diferente al esperado en cada generaci&oacute;n de retrocruza. En las generaciones RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub> las proporciones esperadas de los loci de individuos homocigotos para el PR deber&iacute;an ser 0,81 y 0,875, respectivamente (<a href="#fig1">Figura 1</a>). Quiz&aacute;s la desviaci&oacute;n en la segregaci&oacute;n observada, con respecto al esperado, se debi&oacute; al bajo n&uacute;mero de individuos escogidos para realizar los cruces, el cual fue de 30 y 20 para la obtenci&oacute;n de la RC<sub>2</sub>F<sub>1</sub> y RC<sub>3</sub>F<sub>1</sub>, respectivamente.</font></P>     <P align="justify"><font face="Verdana" size="2">Los intervalos de confianza calculados para cada marcador en ambas retrocruzas no mostraron solapamiento entre ellos (<a href="#t2">Tabla II</a>), lo cual indica un aumento significativo en el porcentaje de individuos similares al PR de la RC<sub>2</sub>F<sub>2</sub> a la RC<sub>3</sub>F<sub>1</sub>, exceptuando los marcadores RM72, RM310, RM296, RM228 y RM216 donde el aumento no fue significativo. En la RC<sub>2</sub>F<sub>2</sub> la mayor&iacute;a de los individuos ya ten&iacute;an esos alelos fijados para el PR, manteni&eacute;ndose esta tendencia en la RC<sub>3</sub>F<sub>1</sub>. El marcador RM11 localizado en el cromosoma 7 tampoco mostr&oacute; un aumento significativo en la recuperaci&oacute;n del PR de una generaci&oacute;n de retrocruza a otra y al observar el porcentaje de homocigotos para el PR se evidencia una tendencia del marcador hacia el PD.</font></P>      ]]></body>
<body><![CDATA[<P align="center"><font face="Verdana" size="2"><a name="t2"><IMG SRC="/img/fbpe/inci/v31n6/Image205.jpg" WIDTH=383 HEIGHT=329></a></font></P>      
<P align="justify"><font face="Verdana" size="2">En este tipo de estudio es conveniente utilizar un mayor n&uacute;mero de marcadores para realizar una cobertura m&aacute;s completa del genoma. Cuando el n&uacute;mero de marcadores es limitado, la selecci&oacute;n es m&aacute;s eficiente en etapas tempranas (RC<sub>1</sub> y RC<sub>2</sub>), donde los marcadores est&aacute;n ligados a grandes bloques de genes, permitiendo cubrir una mayor proporci&oacute;n del genoma. Lo contrario ocurre en generaciones avanzadas donde el entrecruzamiento rompe el ligamiento, disminuyendo cada vez m&aacute;s la proporci&oacute;n monitoreada por el marcador.</font></P>      <P align="justify"><font face="Verdana" size="2">Posible asociaci&oacute;n de los marcadores con el gen de resistencia incorporado</font></P>     <P align="justify"><font face="Verdana" size="2">La alta proporci&oacute;n de heterocigotos encontrada en RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub> para algunos marcadores revela una posible asociaci&oacute;n con el gen de resistencia transferido. Los marcadores RM70, RM11 y RM346, ubicados en el cromosoma 7, presentaron estad&iacute;sticamente una mayor proporci&oacute;n de heterocigotos que la esperada (12,5%) en la RC<sub>3</sub>F<sub>1</sub>  (<a href="#t1">Tabla I</a>). Es posible que el gen de resistencia se encuentre en el cromosoma 7 y que esa tendencia hacia el PD sea debido al ligamiento de estos marcadores con genes de resistencia del PD, efecto conocido como &quot;arrastre gen&eacute;tico&quot; o linkage drag. El marcador RM11 fue el que mostr&oacute; una mayor proporci&oacute;n de heterocigotos en la RC<sub>3</sub>F<sub>1</sub>, por lo que posiblemente este marcador se encuentre m&aacute;s pr&oacute;ximo al gen de resistencia. Adem&aacute;s, se observa que a medida que los marcadores est&aacute;n m&aacute;s cercanos del centr&oacute;mero hay una tendencia a aumentar la proporci&oacute;n de heterocigotos y a disminuir la de homocigotos para el PR, por lo que pudiera sugerirse la ubicaci&oacute;n del gen de resistencia cercana a la regi&oacute;n centrom&eacute;rica del cromosoma siete (<a href="#fig3">Figura 3</a>). El comportamiento de tres de los cuatro marcadores evaluados en el cromosoma 7 (<a href="#fig3">Figura 3</a>) segregando en las retrocruzas RC<sub>2</sub>F<sub>2</sub> y RC<sub>3</sub>F<sub>1</sub> apoyan &eacute;sta hip&oacute;tesis, ya que la tasa de retorno hacia el genotipo del PR es menor en el cromosoma portador del gen, que en los cromosomas no portadores (Hospital, 2002).</font></P>      <P align="center"><font face="Verdana" size="2"><a name="fig3"><IMG SRC="/img/fbpe/inci/v31n6/Image206.jpg" WIDTH=380 HEIGHT=483></a></font></P>      
<P align="justify"><font face="Verdana" size="2">La informaci&oacute;n generada en el presente trabajo es un primer paso para conocer la ubicaci&oacute;n del gen y su manipulaci&oacute;n en los programas de mejoramiento. Los marcadores ligados al gen facilitar&iacute;an el desarrollo de l&iacute;neas isog&eacute;nicas, paso necesario para la formaci&oacute;n de pir&aacute;mides de genes como una estrategia efectiva en la b&uacute;squeda de resistencia durable a P. grisea. Sin embargo; en este caso, los estudios de ubicaci&oacute;n del gen ser&iacute;an complejos por la existencia de una regi&oacute;n en otro cromosoma con las mismas caracter&iacute;sticas. El marcador RM185, ubicado en el cromosoma 4, present&oacute; un comportamiento similar al RM11, RM70 y RM346, indicando la posibilidad de otro gen de resistencia, no evidenciado en las generaciones segregantes de estudios previos.</font></P>     <P align="justify"><font face="Verdana" size="2">De ser posible la identificaci&oacute;n de marcadores asociados a un gen de resistencia en &quot;Fonaiap 1&quot;, ser&iacute;a factible utilizar la estrategia propuesta por Chen et al. (2000) para maximizar la eficiencia de la SAM, en la cual se debe realizar la selecci&oacute;n en dos generaciones de retrocruzas. En la RC<sub>1</sub>F<sub>1</sub> se deber&iacute;a seleccionar recombinantes para uno de los marcadores flanqueantes al gen y en la RC<sub>2</sub>F<sub>1</sub> seleccionar recombinantes para el otro marcador flanqueante, con el fin de minimizar el arrastre gen&eacute;tico. Luego, seleccionar los individuos doble recombinantes por &quot;background&quot;, es decir con marcadores ubicados en los cromosomas no portadores del gen para recuperar el genoma del PR. Si se asume una distancia de 1cM entre ambos marcadores flanqueantes y el gen en la primera generaci&oacute;n de retrocruza se esperar&iacute;a que la frecuencia de que ocurra una recombinaci&oacute;n en alguno de los lados sea de 2%. De modo que se necesitar&iacute;an solo 50 individuos en la RC<sub>1</sub>F<sub>1</sub> para seleccionar un individuo recombinante entre el gen y uno de los marcadores y 100 individuos para obtener un individuo recombinante en el otro marcador en la RC<sub>2</sub>F<sub>1</sub>.</font></P>     <P align="justify"><font face="Verdana" size="2">Asociaci&oacute;n de los marcadores moleculares con los caracteres morfol&oacute;gicos</font></P>     <P align="justify"><font face="Verdana" size="2">De las cuatro variables morfol&oacute;gicas cuantitativas evaluadas, solo el macollamiento en la RC3F1 present&oacute; cierta asociaci&oacute;n con el % de similitud genot&iacute;pica con el PR (<a href="#t3">Tabla III</a>). Ello indica que con estos marcadores un mayor % de similitud con el PR est&aacute; asociado con un mayor n&uacute;mero de macollos. El macollamiento (n&uacute;mero de macollos) es considerado una de las caracter&iacute;sticas morfol&oacute;gicas m&aacute;s importantes del cultivar &quot;Cimarr&oacute;n&quot;, por lo que este hecho es ventajoso para acelerar la recuperaci&oacute;n del PR.</font></P>      <P align="center"><font face="Verdana" size="2"><a name="t3"><IMG SRC="/img/fbpe/inci/v31n6/Image207.jpg" WIDTH=576 HEIGHT=220></a></font></P>      
]]></body>
<body><![CDATA[<P align="justify"><font face="Verdana" size="2">Los coeficientes de correlaci&oacute;n de Pearson de 0,05120 y 0,0098 para la RC<sub>2</sub>F<sub>2</sub> y<B> </B>RC<sub>3</sub>F<sub>1</sub>, respectivamente, no mostraron asociaci&oacute;n alguna entre el PSG con el PR y la distancia euclidiana calculada a partir de las variables morfol&oacute;gicas. Esto indica que las plantas con mayor PSG con el PR no necesariamente presentan una mayor similitud fenot&iacute;pica. El n&uacute;mero de marcadores utilizados en este estudio pudo afectar la significaci&oacute;n de las correlaciones con el fenotipo. Un bajo n&uacute;mero de marcadores disminuye la probabilidad de que puedan estar ligados a los genes que condicionan los caracteres morfol&oacute;gicos evaluados; por lo tanto, no reflejan las variaciones que &eacute;stos presentan. Adem&aacute;s, el efecto ambiental en las evaluaciones fenot&iacute;picas posiblemente disminuy&oacute; la capacidad de la prueba de detectar estas correlaciones, ya que las evaluaciones fueron realizadas en parcelas sin repeticiones, especialmente por tratarse de caracter&iacute;sticas seguramente bajo un control polig&eacute;nico.</font></P>  <B>    <P align="justify"><font face="Verdana" size="2">REFERENCIAS</font></P> </B>     <!-- ref --><P align="justify"><font face="Verdana" size="2">1. Casta&ntilde;o A (1985) Principales enfermedades del arroz y su control en Am&eacute;rica Latina. En Arroz: Investigaci&oacute;n y Producci&oacute;n. CIAT. Cali, Colombia. pp. 567-597.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025877&pid=S0378-1844200600060000900001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">2. Chen S, Lin X, Xu C, Zhang Q (2000) Improvement of bacterial blight resistance of &quot;Minghuini 63&quot;, an elite restorer line of hybrid rice, by molecular marker assisted selection. Crop Sci. 40: 239-244.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025878&pid=S0378-1844200600060000900002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">3. Correa-Victoria FJ, Zeigler RS (1993) Pathogenic variability in Pyricularia grisea at a rice blast &quot;hot sport&quot; breeding site in Eastern Colombia. Plant Dis. 67: 1029-1035.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025879&pid=S0378-1844200600060000900003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">4. Dellaporta S, Wood T, Hicks T (1983) A plant DNA mini preparation: Version II. Plant Mol. Biol. Rep. 1: 19-21</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025880&pid=S0378-1844200600060000900004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">5. FAO (1993) Anuario Estad&iacute;stico Nº 42. pp. 118-119.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025881&pid=S0378-1844200600060000900005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">6. Guimar&atilde;es E, Ospina Y, Correa-Victoria F (1996) Empleo del concepto de linajes de Pyricularia grisea para escoger germoplasma de arroz resistente. Rev. Fitopatol. Venez. 9: 2-6.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025882&pid=S0378-1844200600060000900006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">7. Hittalmani S, Parco A, Mew TV, Zeigler RS, Huang N (2000) Fine mapping and DNA marker-assisted pyramiding of the three major genes for blast resistance in rice. Theor. Appl. Genet. 100: 1121-1128</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025883&pid=S0378-1844200600060000900007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">8. Hospital F (2002) Marker-assisted Backcross Breeding: A Case-Study in Genotype Building Theory. En Kang S (Ed.) Quantitative Genetics, Genomics, and Plant Breeding. CABI. Wallingford, RU. pp. 135-141</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025884&pid=S0378-1844200600060000900008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">9. Huang N, Angeles ER, Domingo J, Magpantay G, Singh S, Zhang G, Kumaravadivel N, Bennett J, Krush GS (1997) Pyramiding of bacterial blight resistance genes in rice: Marker-assisted selection using RFLP and PCR. Theor. Appl. Genet. 95: 313-320</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025885&pid=S0378-1844200600060000900009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">10. Ou S (1985) Rice Diseases. 2a ed. Commonwealth Agricultural Bureaux. Wallingford, RU. 660 pp.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025886&pid=S0378-1844200600060000900010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">11. Paterson A (1996) DNA marker-assisted crop improvement. En Paterson A (Ed.) Genome Mapping in Plants. Landes Bioscience. Austin, TX, EEUU. pp. 72-83.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025887&pid=S0378-1844200600060000900011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">12. S&aacute;nchez AC, Brar DS, Huang N, Li Z, Khush GS (2000) Sequence tagged site marker-assisted selection for three bacterial blight resistance genes in rice. Crop Sci. 40: 792-797.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025888&pid=S0378-1844200600060000900012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">13. Stam P, Zeven C (1981) The theoretical proportion of the donor genome in near-isogenic lines of self-fertilizers bred by backcrossing. Euphytica 30: 227-238.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025889&pid=S0378-1844200600060000900013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">14. Tanksley S, Young N, Paterson A, Bonierbale M (1989) RFLP mapping in plant breeding: new tools for an old science. Biotechnology 7: 257-263.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025890&pid=S0378-1844200600060000900014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">15. Young N, Tanksley S (1989) RFLP analysis of the size of chromosomal segments retained around the tm-2 locus of tomato during backcross breeding. Theor. Appl. Genet. 77: 353-359.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025891&pid=S0378-1844200600060000900015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P align="justify"><font face="Verdana" size="2">16. Van Berloo R (1999) GGT: software for the display of graphical genotypes. J. Heredity 90: 328-329.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1025892&pid=S0378-1844200600060000900016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Castaño]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<source><![CDATA[Principales enfermedades del arroz y su control en América Latina]]></source>
<year>1985</year>
<page-range>567-597</page-range><publisher-loc><![CDATA[Cali ]]></publisher-loc>
<publisher-name><![CDATA[CIAT]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Chen]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Lin]]></surname>
<given-names><![CDATA[X]]></given-names>
</name>
<name>
<surname><![CDATA[Xu]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Zhang]]></surname>
<given-names><![CDATA[Q]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Improvement of bacterial blight resistance of "Minghuini 63", an elite restorer line of hybrid rice, by molecular marker assisted selection]]></article-title>
<source><![CDATA[Crop Sci.]]></source>
<year>2000</year>
<volume>40</volume>
<page-range>239-244</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Correa-Victoria]]></surname>
<given-names><![CDATA[FJ]]></given-names>
</name>
<name>
<surname><![CDATA[Zeigler]]></surname>
<given-names><![CDATA[RS]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Pathogenic variability in Pyricularia grisea at a rice blast "hot sport" breeding site in Eastern Colombia]]></article-title>
<source><![CDATA[Plant Dis.]]></source>
<year>1993</year>
<volume>67</volume>
<page-range>1029-1035</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Dellaporta]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Wood]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Hicks]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A plant DNA mini preparation: Version II]]></article-title>
<source><![CDATA[Plant Mol. Biol. Rep.]]></source>
<year>1983</year>
<volume>1</volume>
<page-range>19-21</page-range></nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="">
<collab>FAO</collab>
<source><![CDATA[]]></source>
<year>1993</year>
<page-range>118-119</page-range></nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Guimarães]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Ospina]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
<name>
<surname><![CDATA[Correa-Victoria]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Empleo del concepto de linajes de Pyricularia grisea para escoger germoplasma de arroz resistente]]></article-title>
<source><![CDATA[Rev. Fitopatol. Venez.]]></source>
<year>1996</year>
<volume>9</volume>
<page-range>2-6</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hittalmani]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Parco]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Mew]]></surname>
<given-names><![CDATA[TV]]></given-names>
</name>
<name>
<surname><![CDATA[Zeigler]]></surname>
<given-names><![CDATA[RS]]></given-names>
</name>
<name>
<surname><![CDATA[Huang]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Fine mapping and DNA marker-assisted pyramiding of the three major genes for blast resistance in rice]]></article-title>
<source><![CDATA[Theor. Appl. Genet.]]></source>
<year>2000</year>
<volume>100</volume>
<page-range>1121-1128</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Kang]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<source><![CDATA[Quantitative Genetics, Genomics, and Plant Breeding]]></source>
<year></year>
<page-range>135-141</page-range><publisher-loc><![CDATA[Wallingford ]]></publisher-loc>
<publisher-name><![CDATA[CABI]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Huang]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Angeles]]></surname>
<given-names><![CDATA[ER]]></given-names>
</name>
<name>
<surname><![CDATA[Domingo]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Magpantay]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Singh]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Zhang]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[Kumaravadivel]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Bennett]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Krush]]></surname>
<given-names><![CDATA[GS]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Pyramiding of bacterial blight resistance genes in rice: Marker-assisted selection using RFLP and PCR]]></article-title>
<source><![CDATA[Theor. Appl. Genet.]]></source>
<year>1997</year>
<volume>95</volume>
<page-range>313-320</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ou]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<source><![CDATA[Rice Diseases]]></source>
<year>1985</year>
<edition>2</edition>
<page-range>660</page-range><publisher-loc><![CDATA[Wallingford ]]></publisher-loc>
<publisher-name><![CDATA[Commonwealth Agricultural Bureaux]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Paterson]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<source><![CDATA[Genome Mapping in Plants]]></source>
<year></year>
<page-range>72-83</page-range><publisher-loc><![CDATA[Austin^eTX TX]]></publisher-loc>
<publisher-name><![CDATA[Landes Bioscience]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sánchez]]></surname>
<given-names><![CDATA[AC]]></given-names>
</name>
<name>
<surname><![CDATA[Brar]]></surname>
<given-names><![CDATA[DS]]></given-names>
</name>
<name>
<surname><![CDATA[Huang]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Li]]></surname>
<given-names><![CDATA[Z]]></given-names>
</name>
<name>
<surname><![CDATA[Khush]]></surname>
<given-names><![CDATA[GS]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sequence tagged site marker-assisted selection for three bacterial blight resistance genes in rice]]></article-title>
<source><![CDATA[Crop Sci.]]></source>
<year>2000</year>
<volume>40</volume>
<page-range>792-797</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Stam]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Zeven]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The theoretical proportion of the donor genome in near-isogenic lines of self-fertilizers bred by backcrossing]]></article-title>
<source><![CDATA[Euphytica]]></source>
<year>1981</year>
<volume>30</volume>
<page-range>227-238</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tanksley]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Young]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Paterson]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Bonierbale]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[RFLP mapping in plant breeding: new tools for an old science]]></article-title>
<source><![CDATA[Biotechnology]]></source>
<year>1989</year>
<volume>7</volume>
<page-range>257-263</page-range></nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Young]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Tanksley]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[RFLP analysis of the size of chromosomal segments retained around the tm-2 locus of tomato during backcross breeding]]></article-title>
<source><![CDATA[Theor. Appl. Genet.]]></source>
<year>1989</year>
<volume>77</volume>
<page-range>353-359</page-range></nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Van Berloo]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[GGT: software for the display of graphical genotypes]]></article-title>
<source><![CDATA[J. Heredity]]></source>
<year>1999</year>
<volume>90</volume>
<page-range>328-329</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>
