<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0378-1844</journal-id>
<journal-title><![CDATA[Interciencia]]></journal-title>
<abbrev-journal-title><![CDATA[INCI]]></abbrev-journal-title>
<issn>0378-1844</issn>
<publisher>
<publisher-name><![CDATA[ASOCIACIÓN INTERCIENCIA]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0378-18442007000100010</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Caracterización y evaluacion de virulencia en aislamientos de rhizoctonia solani kühn, causante de la mancha bandeada en maíz]]></article-title>
<article-title xml:lang="en"><![CDATA[Characterization and evaluation of virulence in rhizoctonia solani kühn isolates, causal agent of leaf banded spot on maize]]></article-title>
<article-title xml:lang="pt"><![CDATA[Caracterização e avaliação de virulência em isolamentos de rhizoctonia solani kühn, causante da mancha bandeada no milho]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Perdomo]]></surname>
<given-names><![CDATA[Rosaura]]></given-names>
</name>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Hernández]]></surname>
<given-names><![CDATA[Alexander]]></given-names>
</name>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[González]]></surname>
<given-names><![CDATA[Alex]]></given-names>
</name>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Pineda]]></surname>
<given-names><![CDATA[Juan]]></given-names>
</name>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[Alezones]]></surname>
<given-names><![CDATA[Jesús]]></given-names>
</name>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad Centroccidental Lisandro Alvarado (UCLA)  ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A02">
<institution><![CDATA[,Universidad Centroccidental Lisandro Alvarado (UCLA) UCLA ]]></institution>
<addr-line><![CDATA[Lara ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A03">
<institution><![CDATA[,Universidad Centroccidental Lisandro Alvarado (UCLA) UCLA ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A04">
<institution><![CDATA[,UCV  ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<aff id="A05">
<institution><![CDATA[,UCV  ]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
<country>Venezuela</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>01</month>
<year>2007</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>01</month>
<year>2007</year>
</pub-date>
<volume>32</volume>
<numero>1</numero>
<fpage>48</fpage>
<lpage>54</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_arttext&amp;pid=S0378-18442007000100010&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_abstract&amp;pid=S0378-18442007000100010&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://ve.scielo.org/scielo.php?script=sci_pdf&amp;pid=S0378-18442007000100010&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[En Venezuela la mancha bandeada del maíz, causada por Rhizoctonia solani Kühn, tiene una alta incidencia y distribución en las principales zonas maiceras, causando disminución de los rendimientos. En 2004 se condujeron ensayos con el objetivo de caracterizar y evaluar la virulencia de 25 aislamientos de R. solani. Para la caracterización se realizaron evaluaciones culturales, microscópicas y moleculares, estas últimas utilizando una secuencia de amplificación específica de la transcrita región espaciadora interna del ADN ribosomal (rADN-ITS). Para la evaluación de la virulencia se realizaron pruebas de inoculación en las líneas de maíz CML-254 y L-82201-22-1-1, tanto en laboratorio, usando una solución de cinetina (6- furfuril-amino-purina), como en invernadero, inoculando plántulas. Las pruebas de caracterización demostraron que los aislamientos efectivamente correspondían a R. solani, aun cuando hubo diferencias en el color de las colonias, crecimiento micelial y tamaño de esclerocios, entre otras. El análisis molecular demostró que los aislamientos pertenecen al grupo de anastomosis AG1-IA. En la prueba de inoculación en laboratorio los aislamientos G1SOM1 y P2TUR3 tuvieron mayor índice de virulencia. En invernadero los aislamientos más virulentos fueron B1TOR1, P2TUR6 y B2SAB1. La línea CML-254 mostró el mayor nivel de resistencia a la enfermedad en ambas pruebas de virulencia. Los resultados permitieron identificar y caracterizar aislamientos que pueden ser utilizados en programas de mejoramiento genético para la identificación de posibles fuentes de resistencia y en la evaluación del germoplasma mejorado.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[In Venezuela, banded leaf spot caused by Rhizoctonia solani Kühn is a widely distributed disease in the most important maize growing areas, causing important yield losses. In 2004, experiments were conducted with the purpose of characterizing and evaluating the virulence of 25 isolates of R. solani. Characterization tests were performed throughout cultural, microscopic, and molecular evaluations, the latter using a specific ribosomal internal transcribed spacer region (rADN-ITS). Virulence tests were performed on the maize inbred lines CML-254 y L-82201-22-1-1, both in the laboratory using KIN solution (6-furfurilaminopurine), and in a greenhouse inoculating seedlings. Characterization tests demonstrated that all isolates belong to R. solani, although differences were observed in colony color, mycelial growth and sclerotia size, among others. Molecular analysis classified all isolates within the R. solani anastomosis group AG1-IA. Virulence tests performed in the laboratory showed that the isolates G1SOM1 and P2TUR3 had the highest virulence index. In greenhouse tests B1TOR1, P2TUR6, and B2SAB1 resulted more virulent. In both virulence tests, the line CML-254 showed the highest level of resistance to disease. The isolates identified and characterized in this study may be used by maize breeding programs looking for resistant sources and improved cultivars.]]></p></abstract>
<abstract abstract-type="short" xml:lang="pt"><p><![CDATA[Na Venezuela a mancha bandeada do milho, causada por Rhizoctonia solani Kühn, tem uma alta incidência e distribuição nas principais áreas de plantio de milho, causando diminuição do rendimento. Em 2004 foram conduzidos ensaios com o objetivo de caracterizar e avaliar a virulência de 25 isolamentos de R. solani. Para a caracterização se realizaram avaliações culturais, microscópicas e moleculares, estas últimas utilizando uma seqüência de amplificação específica da região espaçadora transcrita interna do DNA ribossomal (rDNA-ITS). Para a avaliação da virulência se realizaram provas de inoculação nas línhas de milho CML-254 e L-82201-22-1-1, tanto em laboratório, usando uma solução de cinetina (6- furfuril-amino-purina), como em estufa, inoculando plântulas. As provas de caracterização demonstraram que os isolamentos efetivamente correspondiam a R. solani, ainda quando houve diferenças na cor das colônias, crescimento micelial e tamanho de esclerócios, entre outras. A análise molecular demonstrou que os isolamentos pertencem ao grupo de anastomosis AG1-IA. Na prova de inoculação em laboratório os isolamentos G1SOM1 e P2TUR3 tiveram maior índice de virulência. Em estufa, os isolamentos mais virulentos foram B1TOR1, P2TUR6 e B2SAB1. A linha CML-254 mostrou o maior nível de resistência à enfermidade em ambas provas de virulência. Os resultados permitiram identificar e caracterizar isolamentos que podem ser utilizados em programas de melhoramento genético para a identificação de possíveis fontes de resistência e na avaliação do germoplasma melhorado.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Grupo de Anastomosis]]></kwd>
<kwd lng="es"><![CDATA[Maíz]]></kwd>
<kwd lng="es"><![CDATA[Mancha Bandeada]]></kwd>
<kwd lng="es"><![CDATA[Rhizoctonia solana]]></kwd>
<kwd lng="es"><![CDATA[Virulencia]]></kwd>
<kwd lng="es"><![CDATA[Zea mays]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[ <p align="center"><font face="Verdana" size="3"><b>Caracterización y evaluacion de virulencia en aislamientos de <i>rhizoctonia solani</i> kühn, causante de la mancha bandeada en maíz</b></font></p> <B>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Rosaura Perdomo, Alexander Hern&aacute;ndez, Alex Gonz&aacute;lez, Juan Pineda y Jes&uacute;s Alezones</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Rosaura D. Perdomo R.</font></B> <font face="Verdana" size="2"> Ingeniero Agr&oacute;nomo, Universidad Centroccidental Lisandro Alvarado (UCLA), Venezuela. Asistente de Investigaci&oacute;n, Fundaci&oacute;n Agr&iacute;cola Danac (DANAC), Venezuela.</font></P> <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Alexander J. Hern&aacute;ndez J.</font></B> <font face="Verdana" size="2"> Ingeniero Agr&oacute;nomo, Universidad de Oriente (UDO), Venezuela. M.Sc. en Mejoramiento Gen&eacute;tico de Plantas, Universidad Central de Venezuela (UCV). Profesor, UCLA, Venezuela, e Investigador, DANAC, Venezuela. Direcci&oacute;n: Post-grado de Fitopatolog&iacute;a. Decanato de Agronom&iacute;a, UCLA. Cabudare, Lara, Venezuela. e-mail: alexander.hernandez@danac.org.ve</font></P> <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Juan Bautista Pineda P.</font></B> <font face="Verdana" size="2"> Ingeniero Agr&oacute;nomo y M.Sc. en Fitopatolog&iacute;a, UCLA, Venezuela. Profesor, UCLA, Venezuela.</font></P> <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Alex D. Gonz&aacute;lez V.</font></B> <font face="Verdana" size="2"> M.Sc. en Agronom&iacute;a y Estudiante de Doctorado, UCV, Venezuela. Investigador, Danac, Venezuela.</font></P> <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Jes&uacute;s M. Alezones G. </font> </B><font face="Verdana" size="2">Ingeniero Agr&oacute;nomo y Estudiante de Maestr&iacute;a, UCV, Venezuela. Investigador, DANAC, Venezuela.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2"><b>RESUMEN</b></font></P>      <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">En Venezuela la mancha bandeada del ma&iacute;z, causada por Rhizoctonia solani K&uuml;hn, tiene una alta incidencia y distribuci&oacute;n en las principales zonas maiceras, causando disminuci&oacute;n de los rendimientos. En 2004 se condujeron ensayos con el objetivo de caracterizar y evaluar la virulencia de 25 aislamientos de R. solani. Para la caracterizaci&oacute;n se realizaron evaluaciones culturales, microsc&oacute;picas y moleculares, estas &uacute;ltimas utilizando una secuencia de amplificaci&oacute;n espec&iacute;fica de la transcrita regi&oacute;n espaciadora interna del ADN ribosomal (rADN-ITS). Para la evaluaci&oacute;n de la virulencia se realizaron pruebas de inoculaci&oacute;n en las l&iacute;neas de ma&iacute;z CML-254 y L-82201-22-1-1, tanto en laboratorio, usando una soluci&oacute;n de cinetina (6- furfuril-amino-purina), como en invernadero, inoculando pl&aacute;ntulas. Las pruebas de caracterizaci&oacute;n demostraron que los aislamientos efectivamente correspond&iacute;an a R. solani, aun cuando hubo diferencias en el color de las colonias, crecimiento micelial y tama&ntilde;o de esclerocios, entre otras. El an&aacute;lisis molecular demostr&oacute; que los aislamientos pertenecen al grupo de anastomosis AG1-IA. En la prueba de inoculaci&oacute;n en laboratorio los aislamientos G1SOM1 y P2TUR3 tuvieron mayor &iacute;ndice de virulencia. En invernadero los aislamientos m&aacute;s virulentos fueron B1TOR1, P2TUR6 y B2SAB1. La l&iacute;nea CML-254 mostr&oacute; el mayor nivel de resistencia a la enfermedad en ambas pruebas de virulencia. Los resultados permitieron identificar y caracterizar aislamientos que pueden ser utilizados en programas de mejoramiento gen&eacute;tico para la identificaci&oacute;n de posibles fuentes de resistencia y en la evaluaci&oacute;n del germoplasma mejorado.</font></P>      <p style="line-height: 100%" align="center"><b><font face="Verdana" size="2"><span style="mso-fareast-font-family: Times New Roman; mso-bidi-font-family: Times New Roman; mso-ansi-language: EN-US; mso-fareast-language: ES; mso-bidi-language: AR-SA" lang="EN-US"><span style="mso-fareast-font-family: Times New Roman; mso-bidi-font-family: Times New Roman; mso-ansi-language: EN-US; mso-fareast-language: ES; mso-bidi-language: AR-SA">C</span><span style="mso-fareast-font-family: Times New Roman; mso-bidi-font-family: Times New Roman; mso-ansi-language: EN-US; mso-fareast-language: ES; mso-bidi-language: AR-SA">haracterization and evaluation of virulence in <i>rhizoctonia</i> <i>solani</i> kühn isolates, causal agent of leaf banded spot on maize</span></span></font></b></p>     ]]></body>
<body><![CDATA[<P style="line-height: 100%" align="justify"><font face="Verdana" size="2"><b>SUMMARY</b></font></P>      <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">In Venezuela, banded leaf spot caused by Rhizoctonia solani K&uuml;hn is a widely distributed disease in the most important maize growing areas, causing important yield losses. In 2004, experiments were conducted with the purpose of characterizing and evaluating the virulence of 25 isolates of R. solani. Characterization tests were performed throughout cultural, microscopic, and molecular evaluations, the latter using a specific ribosomal internal transcribed spacer region (rADN-ITS). Virulence tests were performed on the maize inbred lines CML-254 y L-82201-22-1-1, both in the laboratory using KIN solution (6-furfurilaminopurine), and in a greenhouse inoculating seedlings. Characterization tests demonstrated that all isolates belong to R. solani, although differences were observed in colony color, mycelial growth and sclerotia size, among others. Molecular analysis classified all isolates within the R. solani anastomosis group AG1-IA. Virulence tests performed in the laboratory showed that the isolates G1SOM1 and P2TUR3 had the highest virulence index. In greenhouse tests B1TOR1, P2TUR6, and B2SAB1 resulted more virulent. In both virulence tests, the line CML-254 showed the highest level of resistance to disease. The isolates identified and characterized in this study may be used by maize breeding programs looking for resistant sources and improved cultivars.</font></P>      <p style="line-height: 100%" align="center"><b><font face="Verdana" size="2"><span style="mso-fareast-font-family: Times New Roman; mso-bidi-font-family: Times New Roman; mso-ansi-language: ES; mso-fareast-language: ES; mso-bidi-language: AR-SA">Caracterização e avaliação de virulência em isolamentos de <i>rhizoctonia solani </i>kühn, causante da mancha bandeada no milho</span></font></b></p>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2"><b>RESUMO</b></font></P>      <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Na Venezuela a mancha bandeada do milho, causada por Rhizoctonia solani K&uuml;hn, tem uma alta incid&ecirc;ncia e distribui&ccedil;&atilde;o nas principais &aacute;reas de plantio de milho, causando diminui&ccedil;&atilde;o do rendimento. Em 2004 foram conduzidos ensaios com o objetivo de caracterizar e avaliar a virul&ecirc;ncia de 25 isolamentos de R. solani. Para a caracteriza&ccedil;&atilde;o se realizaram avalia&ccedil;&otilde;es culturais, microsc&oacute;picas e moleculares, estas &uacute;ltimas utilizando uma seq&uuml;&ecirc;ncia de amplifica&ccedil;&atilde;o espec&iacute;fica da regi&atilde;o espa&ccedil;adora transcrita interna do DNA ribossomal (rDNA-ITS). Para a avalia&ccedil;&atilde;o da virul&ecirc;ncia se realizaram provas de inocula&ccedil;&atilde;o nas l&iacute;nhas de milho CML-254 e L-82201-22-1-1, tanto em laborat&oacute;rio, usando uma solu&ccedil;&atilde;o de cinetina (6- furfuril-amino-purina), como em estufa, inoculando pl&acirc;ntulas. As provas de caracteriza&ccedil;&atilde;o demonstraram que os isolamentos efetivamente correspondiam a R. solani, ainda quando houve diferen&ccedil;as na cor das col&ocirc;nias, crescimento micelial e tamanho de escler&oacute;cios, entre outras. A an&aacute;lise molecular demonstrou que os isolamentos pertencem ao grupo de anastomosis AG1-IA. Na prova de inocula&ccedil;&atilde;o em laborat&oacute;rio os isolamentos G1SOM1 e P2TUR3 tiveram maior &iacute;ndice de virul&ecirc;ncia. Em estufa, os isolamentos mais virulentos foram B1TOR1, P2TUR6 e B2SAB1. A linha CML-254 mostrou o maior n&iacute;vel de resist&ecirc;ncia &agrave; enfermidade em ambas provas de virul&ecirc;ncia. Os resultados permitiram identificar e caracterizar isolamentos que podem ser utilizados em programas de melhoramento gen&eacute;tico para a identifica&ccedil;&atilde;o de poss&iacute;veis fontes de resist&ecirc;ncia e na avalia&ccedil;&atilde;o do germoplasma melhorado.</font></P>  <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">PALABRAS CLAVE / Grupo de Anastomosis / Ma&iacute;z / Mancha Bandeada / <I>Rhizoctonia solana</I> / Virulencia / <I>Zea mays</I> /</font></P> </B><FONT SIZE=2>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2"><b>Recibido</b>: 03/10/2005. <b>Modificado</b>: 13/12/2006. <b>Aceptado</b>: 14/12/2006.</font></P> </FONT> <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Introducci&oacute;n</font></P> </B>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">En el &aacute;mbito mundial el cultivo de ma&iacute;z ocupa el tercer lugar de producci&oacute;n despu&eacute;s del arroz y el trigo. En Venezuela el ma&iacute;z se encuentra ubicado en segundo lugar despu&eacute;s del arroz y, debido a su alto valor nutritivo y el gran impacto socioecon&oacute;mico, es considerado de gran importancia como alimento estrat&eacute;gico en la poblaci&oacute;n y como subproducto en la elaboraci&oacute;n de alimentos concentrados para animales (Bastidas, 2003).</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">La planta de ma&iacute;z, aunque de reconocida adaptabilidad, frecuentemente sufre enfermedades que alteran su funcionamiento normal, modificando su desarrollo y reduciendo o anulando su producci&oacute;n (Fontana y Gonz&aacute;lez, 2000). Durante los &uacute;ltimos a&ntilde;os se han agudizado los problemas ocasionados por el hongo <I>Rhizoctonia solani</I> K&uuml;hn en plantaciones de ma&iacute;z, provocando reducciones importantes en los niveles de productividad. En Venezuela la enfermedad se ha se&ntilde;alado desde el a&ntilde;o 1995, afectando severamente hojas, tallos y mazorcas en estado de madurez en siembras de ma&iacute;z en la colonia agr&iacute;cola de Tur&eacute;n, estado Portuguesa (Cardona <I>et al</I>., 1999).</font></P>     ]]></body>
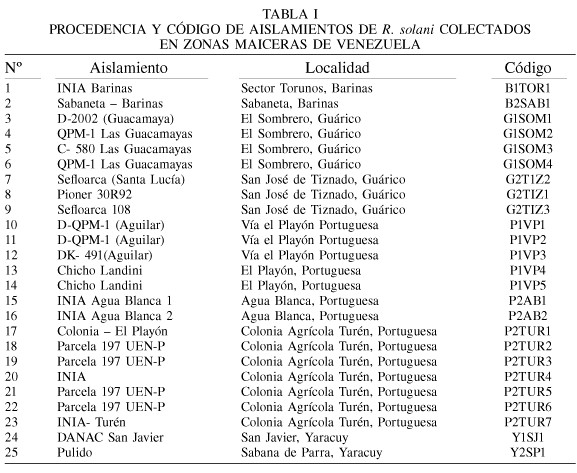
<body><![CDATA[<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Este problema ha ganado la atenci&oacute;n de investigadores en diferentes &aacute;reas del cultivo, as&iacute; como tambi&eacute;n de los productores, quienes demandan una respuesta r&aacute;pida para superarlo, llegando incluso a considerarse potencialmente m&aacute;s importante que las limitantes abi&oacute;ticas y de manejo agron&oacute;mico, por la dificultad en encontrar a corto plazo medidas culturales, controles qu&iacute;micos o resistencia gen&eacute;tica para combatir el pat&oacute;geno (Cabrera y Garc&iacute;a, 2000).</font></P> <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">R. solani</font></I><font face="Verdana" size="2">, estado anamorfo de <I>Thanatephorus</I> <I>cucumeris </I>(Frank) Donk<I>.,</I> es un usual habitante del suelo con un amplio rango de hospedantes, caracter&iacute;sticas que lo convierten en un enemigo peligroso y dif&iacute;cil de controlar, porque adem&aacute;s sobrevive como sapr&oacute;fito y a&ntilde;o tras a&ntilde;o su presencia se incrementa (Cabrera, 2002; Bastidas, 2003). Se ha establecido que las cepas de <I>R. solani</I> que afectan al ma&iacute;z, pertenecen al grupo de anastomosis AG1-IA (Hern&aacute;ndez <I>et al</I>., 2003a).</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">El objetivo del presente estudio fue caracterizar y evaluar la virulencia de 25 aislamientos de <I>R. solani</I> AG1-IA, obtenidos de plantaciones de ma&iacute;z en diferentes localidades de Venezuela, a fin de identificar los aislamientos m&aacute;s virulentos para posteriormente orientar programas de mejoramiento dirigidos hacia la b&uacute;squeda de cultivares de ma&iacute;z resistentes al pat&oacute;geno.</font></P>  <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Materiales y M&eacute;todos</font></P> </B><I>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Origen de los aislamientos</font></I><font face="Verdana" size="2">. Los 25 aislamientos de <I>R. solani</I> fueron obtenidos de una selecci&oacute;n de esclerocios tomados de materiales infectados que fueron colectados durante los a&ntilde;os 2002 y 2003 por investigadores de la Fundaci&oacute;n Agr&iacute;cola DANAC, en diferentes localidades de los estados venezolanos de Portuguesa, Gu&aacute;rico, Yaracuy y Barinas (<a href="#tab1">Tabla I</a>). El cultivo patr&oacute;n del grupo de anastomosis AGI-IA de <I>R. solani</I> fue donado por Nelly Delgado, del Instituto Nacional de Investigaciones Agr&iacute;colas (INIA), Portuguesa, Venezuela.</font></P>      <P style="line-height: 100%" align="center"><a name="tab1"><img border="0" src="/img/fbpe/inci/v32n1/art10tab1.jpg" width="577" height="473"></a></P>  <I>    
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Obtenci&oacute;n de los aislamientos</font></I><font face="Verdana" size="2">.<B> </B>Para la desinfecci&oacute;n de los esclerocios, &eacute;stos fueron sumergidos por 3min en soluci&oacute;n de cloro al 1%; luego fueron lavados con agua destilada est&eacute;ril, secados en papel absorbente, sembrados as&eacute;pticamente en placas con agar-agua (AA) y colocados en condiciones de laboratorio (22-24ºC). Cada aislado se purific&oacute; por transferencia de &aacute;pices hifales a placas de Petri con agar-papa-dextrosa (PDA). Los aislamientos fueron caracterizados en funci&oacute;n de la morfolog&iacute;a hifal y la condici&oacute;n nuclear. Los in&oacute;culos utilizados en todas las pruebas fueron discos de agar-micelio (6mm di&aacute;metro) extra&iacute;dos del margen de cultivos de 4-5 d&iacute;as en placas con PDA incubadas en condiciones de laboratorio.</font></P>  <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Caracterizaci&oacute;n nuclear</font></I><font face="Verdana" size="2">.<B> </B>Se utilizaron cultivos producidos durante 4-5 d&iacute;as en placas de Petri que conten&iacute;an 15ml de AA, bajo condiciones de laboratorio. Se extrajeron c&iacute;rculos delgados de agar-micelio (12mm di&aacute;metro) que fueron colocados sobre portaobjetos y te&ntilde;idos con safranina O y azul de anilina al 0,5%, para contabilizar el n&uacute;mero de n&uacute;cleos por c&eacute;lula y medir el grosor de las hifas (Johansen, 1940).</font></P>  <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Crecimiento y caracterizaci&oacute;n hifal</font></I><font face="Verdana" size="2">.<B> </B>Los aislamientos fueron subcultivados en placas con PDA y mantenidos incubados en condiciones de laboratorio. Por cada tratamiento (25 cepas) se usaron tres repeticiones en un dise&ntilde;o aleatorio. Se medi&oacute; el crecimiento micelial en cm<SUP>2</SUP> a las 48h. La caracterizaci&oacute;n se hizo durante cuatro semanas, sobre la base del color de la colonia, caracter&iacute;sticas del micelio e inicio de la formaci&oacute;n, maduraci&oacute;n, color y tama&ntilde;o de los esclerocios.</font></P>  <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Evaluaci&oacute;n de Virulencia</font></I><font face="Verdana" size="2">.<B> </B>Se realizaron dos pruebas, una a nivel de laboratorio utilizando placas Petri con soluci&oacute;n de cinetina y otra en invernadero. Los an&aacute;lisis de la variancia y la discriminaci&oacute;n de las medias, en ambos ensayos, fueron realizados empleando el programa SAS JMP 5.012.</font></P>  <I>    ]]></body>
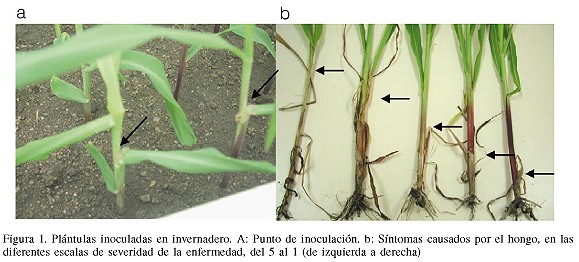
<body><![CDATA[<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Ensayo de virulencia en soluci&oacute;n de cinetina</font></I><font face="Verdana" size="2">. Dos l&iacute;neas de ma&iacute;z (CML-254 y L-82201-22-1-1) del banco de germoplasma de la Fundaci&oacute;n DANAC fueron sembradas y mantenidas en invernadero. Para tales prop&oacute;sitos se usaron envases pl&aacute;sticos con 2kg de sustrato previamente esterilizado. Los 25 aislamientos de <I>R. solani</I> se multiplicaron sobre granos de arroz esterilizados en autoclave a 121ºC y 15lb durante 15min. De plantas de ma&iacute;z con 30-35 d&iacute;as de edad, se cortaron hojas completas y se dividieron en segmentos de 8cm de largo que fueron lavados con agua y colocados en capsulas de Petri que conten&iacute;an 8ml de soluci&oacute;n de cinetina (6-furfuril-amino-purina) a 2ppm. Los segmentos foliares fueron inoculados aplicando en la superficie adaxial un grano de arroz colonizado por el correspondiente aislamiento. Seguidamente, las placas se incubaron a 22-24ºC por tres d&iacute;as.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">El desarrollo de la enfermedad se evalu&oacute; a las 24h de inoculaci&oacute;n, utilizando la escala de Ahuja y Payak (1981), que consiste de grados de 0 a 5 seg&uacute;n el porcentaje de &aacute;rea afectada de la hoja, a saber 1: 3,4%; 1.5: 10,8%; 2: 11,4%; 2.5: 23,6%; 3: 32,0%; 3.5: 38,0%; 4: 39,2%; 4.5: 45,0%; y 5:&#8805;53,4% de &aacute;rea afectada. La prueba se estableci&oacute; en un dise&ntilde;o completamente aleatorio con 3 repeticiones y en arreglo factorial con los siguientes factores: horas, cepa, genotipo y sus interacciones.</font></P>  <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Ensayo de virulencia en invernadero</font></I><font face="Verdana" size="2">.<B> </B>De las l&iacute;neas CML-254 y L-82201-22-1-1 se sembr&oacute; una semilla por punto sobre tierra esterilizada. Se emplearon 13 mesones de 60×120cm y 20cm de espesor. Cada mes&oacute;n fue dividido en dos partes iguales, para utilizar un total de 25. Cada mitad ten&iacute;a 14 hileras con 12 plantas, repartidas entre los dos genotipos, donde cada hilera representa una repetici&oacute;n. Cada parte fue inoculada con un aislamiento, para lo cual se coloc&oacute; un c&iacute;rculo de PDA colonizado de cada uno de los aislamientos en la primera hoja verdadera entre la vaina y el tallo de la planta a los 12 d&iacute;as de edad (dde; <a href="#fig1"> Figura 1a</a>). La evaluaci&oacute;n se realiz&oacute; 7 d&iacute;as despu&eacute;s de la inoculaci&oacute;n (ddi), utilizando para ello una escala de cinco pasos, basada en la altura relativa o avance de la lesi&oacute;n, a saber 1: &lt;5% de la altura de la planta, 2: 5-15%, 3: 16-35%, 4: 36-65%; y 5: &gt;66% de la altura de la planta y muerte de las mismas (<a href="#fig1">Figura 1b</a>).</font></P>      <P style="line-height: 100%" align="center"><a name="fig1"><img border="0" src="/img/fbpe/inci/v32n1/art10fig1.jpg" width="579" height="262"></a></P>      
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">El experimento se estableci&oacute; mediante un dise&ntilde;o completamente aleatorio, con un arreglo factorial y siete repeticiones. El factor genotipo se analiz&oacute; en dos niveles, susceptible y resistente, y el factor cepa en 25 niveles correspondientes a los diferentes aislamientos.</font></P>  <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Identificaci&oacute;n del grupo de anastomosis mediante rADN-ITS</font></I><font face="Verdana" size="2">. Este m&eacute;todo permite la identificaci&oacute;n de manera precisa y r&aacute;pida de los grupos de anastomosis de los aislamientos (Hern&aacute;ndez <I>et al</I>., 2003a). Para la extracci&oacute;n de ADN de cada aislamiento y del patr&oacute;n AG1-1A usado como control, se utilizaron cultivos puros multiplicados en medio l&iacute;quido. El micelio fue filtrado y lavado con agua est&eacute;ril para la obtenci&oacute;n de la masa que fue macerada en N<SUB>2</SUB> l&iacute;quido y luego se le agreg&oacute; buffer de extracci&oacute;n (CETAB 2%, 750µl; Mercaptoetanol, 15µl). El extracto con ADN fue transferido a tubos de microcentr&iacute;fuga e incubados por 30min a 65°C, mezclando por inversi&oacute;n cada 8min. Se agreg&oacute; 300µl de acetato de potasio 3M (pH 4,8) e inmediatamente fue incubado en hielo por 15min y luego centrifugado a 12000rpm por 9min. El sobrenadante fue transferido a tubos de microcentr&iacute;fuga y se le agreg&oacute; 200µl de cloroformo isoam&iacute;lico (24:1), mezclando por inversi&oacute;n; despu&eacute;s fue centrifugado a 12000rpm por 9min a 4°C. El sobrenadante fue transferido a tubos de microcentr&iacute;fuga donde se a&ntilde;adi&oacute; 750µl de etanol 100%, se incub&oacute; sobre hielo por 10min y se centrifug&oacute; a 18000rpm por 9min. Tras descartar el sobrenadante, se lav&oacute; 2 veces con 500µl de etanol 70%, para luego centrifugar a 9000rpm por 9min por cada lavado. El sobrenadante fue desechado y se dej&oacute; secar en papel de filtro. El precipitado fue resuspendido en 100µl de tamp&oacute;n TE y almacenado a 4°C.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">La amplificaci&oacute;n rDNA-ITS fue realizada usando los primers ITS1 (5’-TCCGTAGGTGAACCTGCGG-3’) y ITS4 (5’-TCCTCCGCTTATTGATATGC-3’). Cada 30µl de reacci&oacute;n de PCR tuvo 2,0µl de ADN, 3µl de buffer 10X, 19µl de agua destilada, 0,6µl de dNTP’S 10mM, 1,8µl de Mg<SUP>+2</SUP> 25mM, 3µl de primers (10X) y 0,6µl de Taq DNA polimerasa. Se amplific&oacute; durante 35 ciclos a una temperatura de alineaci&oacute;n de 58°C. El producto de amplificaci&oacute;n fue digerido con la mezcla de las enzimas AluI y HaeIII, en donde 6µl del producto del PCR fue mezclado con 1,5µl de tamp&oacute;n-2, 5,5µl de agua destilada y 1µl de cada enzima y se incub&oacute; a 37°C por 3h. Se corri&oacute; una electroforesis en gel de poliacrilamida al 10% (PAGE), para luego realizar la tinci&oacute;n con plata al 0,2%. Posteriormente se analiz&oacute; el patr&oacute;n de bandas.</font></P>  <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Resultados y Discusi&oacute;n</font></P> </B><I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Caracterizaci&oacute;n microsc&oacute;pica de los aislamientos</font></P> </I>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">En todos los materiales examinados se observaron hifas formando &aacute;ngulos rectos, constricciones en el punto de origen de las ramificaciones e inmediatamente por encima de este sitio presentaban un septo. La caracterizaci&oacute;n nuclear de los aislamientos te&ntilde;idos con azul de anilina permiti&oacute; la observaci&oacute;n de c&eacute;lulas som&aacute;ticas con 3-6 n&uacute;cleos. Para la caracterizaci&oacute;n del g&eacute;nero <I>Rhizoctonia</I> es necesario determinar el n&uacute;mero de n&uacute;cleos que presentan las c&eacute;lulas vegetativas<I> </I>y en funci&oacute;n de ello se pueden diferenciar <I>Rhizoctonia</I> binucleadas o multinucleadas (Parmeter y Whitney, 1970).</font></P>     ]]></body>
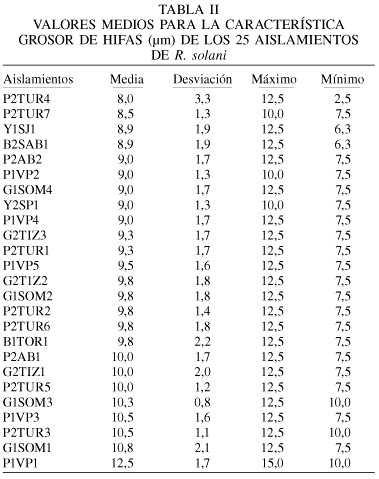
<body><![CDATA[<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Entre las observaciones microsc&oacute;picas realizadas (<a href="#tab2">Tabla II</a>) se puede se&ntilde;alar que el grosor de hifas estuvo comprendido entre valores promedio de 8,0 y 12,5µm. Los aislamientos P1VP1, G1SOM1, P2TUR3 y P1VP3 mostraron un mayor grosor de hifas, con valores de 12,5; 10,8; 10,5 y 10,5µm, respectivamente; mientras que el menor grosor de hifas correspondi&oacute; al aislamiento P2TUR4, con 8,0µm. Los aislamientos restantes mostraron valores intermedios.</font></P>      <P style="line-height: 100%" align="center"><a name="tab2"><img border="0" src="/img/fbpe/inci/v32n1/art10tab2.jpg" width="379" height="479"></a></P>      
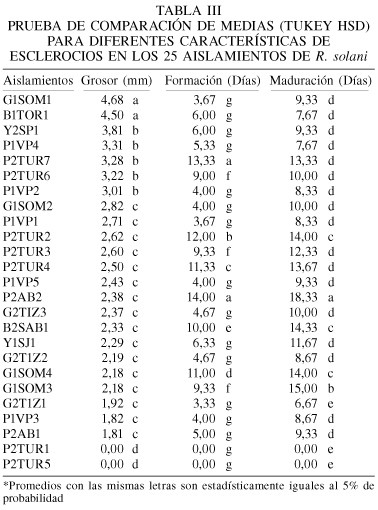
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">La evaluaci&oacute;n morfol&oacute;gica<B> </B>de las colonias producidas en PDA de cada uno de los aislamientos, permiti&oacute; tambi&eacute;n la caracterizaci&oacute;n cualitativa de este pat&oacute;geno. Las caracter&iacute;sticas m&aacute;s resaltantes fueron: a) micelio blanco en colonias j&oacute;venes, torn&aacute;ndose posteriormente amarillentas a marr&oacute;n en todo el plato; b) formaci&oacute;n de esclerocios, al principio de color blanco y posteriormente se tornan de color marr&oacute;n y sin forma definida, apreci&aacute;ndose esclerocios semiesf&eacute;ricos, globosos o sencillamente de forma irregular con base aplanada; c) esclerocios de diferentes tama&ntilde;os, y en ciertas ocasiones aparecieron como masas de mayor tama&ntilde;o; d) ocasionalmente se observ&oacute; un exudado color &aacute;mbar sobre los esclerocios. Todas las caracter&iacute;sticas descritas coinciden con las reportadas por otros investigadores (Carling y Summer, 1992; Cede&ntilde;o <I>et al</I>., 1996; Cardona <I>et al</I>., 1999; Da Silveira <I>et al</I>., 2000).</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">El an&aacute;lisis de varianza aplicado a las variables morfol&oacute;gicas evaluadas (grosor, d&iacute;as de aparici&oacute;n y d&iacute;as de maduraci&oacute;n de los esclerocios) detect&oacute; diferencias altamente significativas entre los aislamientos (<a href="#tab3">Tabla III</a>). La prueba de comparaci&oacute;n de medias realizada para la variable grosor de esclerocios, permiti&oacute; separar cuatro grupos que presentaron valores estad&iacute;sticamente similares. Los aislamientos G1SOM1 y B1TOR1 presentaron un mayor grosor, con valores de 4,68 y 4,50mm respectivamente. La mayor&iacute;a present&oacute; esclerocios de tama&ntilde;o intermedio, con valores que oscilaron entre 3,80 y 1,80mm. Para los aislamientos P2TUR1 y P2TUR5 no se presentan valores porque no desarrollaron esclerocios.</font></P>      <P style="line-height: 100%" align="center"><a name="tab3"><img border="0" src="/img/fbpe/inci/v32n1/art10tab3.jpg" width="378" height="510"></a></P>      
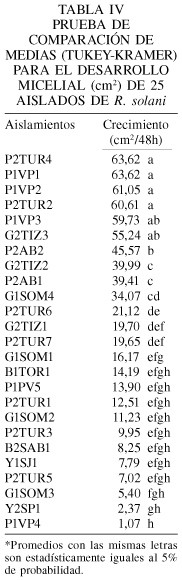
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">En relaci&oacute;n al tiempo de formaci&oacute;n de esclerocios, la prueba permiti&oacute; separar siete grupos. Aislamientos con valores entre 3,33 y 6,33 d&iacute;as, fueron los que desarrollaron esclerocios en un menor tiempo, y entre &eacute;stos se destacaron G2TIZ1 con valor promedio de 3,33 d&iacute;as, y P1VP1 y G1SOM1 con 3,67 d&iacute;as. El aislamiento P2AB2 fue el que tard&oacute; m&aacute;s en formar esclerocios (14 d&iacute;as). Con respecto al tiempo de maduraci&oacute;n, existe una relaci&oacute;n directamente proporcional a la formaci&oacute;n de esclerocios. El estudio de las caracter&iacute;sticas de los esclerocios se realiz&oacute; con el fin de evaluar el comportamiento de los 25 aislamientos de <I>R. solani</I> en b&uacute;squeda de diferencias que permitan relacionar la capacidad de la cepa para desarrollar la enfermedad y colonizar &aacute;reas (suelos o plantas) en forma agresiva o severa, dependiendo del caso. En tal sentido, las cepas que producen esclerocios maduros en menor tiempo, tienen mayor posibilidad de escapar a cualquier medida de control, de incrementar ciclo tras ciclo la cantidad de in&oacute;culo y una mayor probabilidad de diseminaci&oacute;n.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">En lo que respecta al desarrollo micelial, los resultados mostraron diferencias altamente significativas entre los aislamientos probados (<a href="#tab4">Tabla IV</a>). Los aislamientos con mayor desarrollo micelial a las 48h fueron P2TUR4, P1VP1, P1VP2, P2TUR2, P1VP3, G2TIZ3, con valores promedios entre 63,62 y 55,24cm<SUP>2</SUP>; grupos de desarrollo micelial intermedios, con intervalos entre 45,57 y 16,17cm<SUP>2</SUP>, y el grupo con menor desarrollo, entre 14,18 y 1,07cm<SUP>2</SUP>, estuvo conformado por Y2SP1 y P1VP4. La mayor capacidad de crecimiento micelial pudiera relacionarse con la virulencia, es decir, con la capacidad de causar m&aacute;s da&ntilde;o sobre el hospedante.</font></P>      <P style="line-height: 100%" align="center"><a name="tab4"><img border="0" src="/img/fbpe/inci/v32n1/art10tab4.jpg" width="182" height="580"></a></P>  <I>    
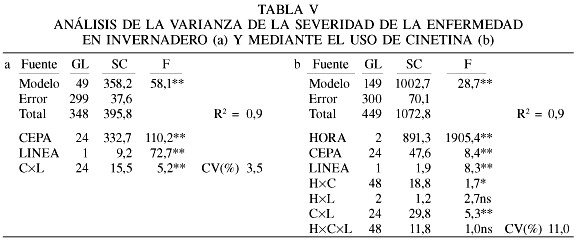
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Evaluaci&oacute;n de la Virulencia</font></P> </I>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Los modelos utilizados para el an&aacute;lisis de los datos correspondientes a las pruebas de virulencia en invernadero y en soluci&oacute;n de cinetina, est&aacute;n registrados en la <a href="#tab5"> Tabla V</a>, donde se aprecia un alto grado de confiabilidad y de significaci&oacute;n, detectando diferencias para todas las fuentes estudiadas, excepto para las interacciones hora×l&iacute;nea y horas×cepa×l&iacute;neas. En ambas pruebas, el comportamiento de la virulencia de las cepas fue variable, al igual que el de las l&iacute;neas de ma&iacute;z. Hubo diferencias en agresividad entre las cepas, por cuanto la interacci&oacute;n cepa×hora fue significativa y, adem&aacute;s, se observ&oacute; que no todas las cepas causan el mismo grado de da&ntilde;o en igual tiempo.</font></P>      ]]></body>
<body><![CDATA[<P style="line-height: 100%" align="center"><a name="tab5"><img border="0" src="/img/fbpe/inci/v32n1/art10tab5.jpg" width="574" height="246"></a></P>  <I>    
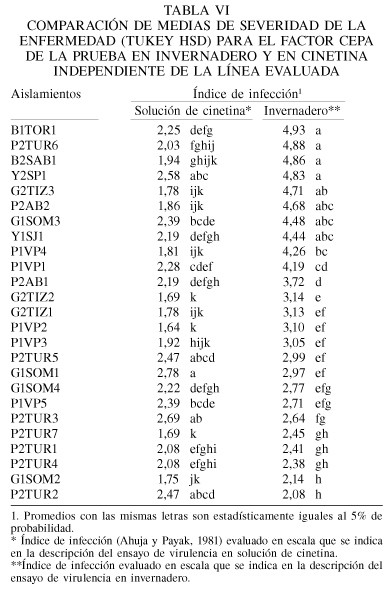
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Virulencia en soluci&oacute;n de cinetina</font></P> </I>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Las observaciones realizadas permiten se&ntilde;alar que los aislamientos de <I>R. solani</I> comienzan su crecimiento sobre el tejido foliar de manera casi inmediata y al t&eacute;rmino de 12h ya es posible apreciar s&iacute;ntomas de infecci&oacute;n. La l&iacute;nea CML-254 fue significativamente menos afectada por los aislamientos que la L-82201-22-1-1.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Los resultados indican diferencias altamente significativas en la virulencia o nivel de da&ntilde;o de los aislamientos (<a href="#tab6">Tabla VI</a>). Los m&aacute;s virulentos fueron G1SOM1, P2TUR3, Y2SP1, P2TUR2 y P2TUR5, con valores en la escala de Ahuja y Payak (1981) de 2,78; 2,69; 2,58; 2,47; y 2,47, respectivamente, mientras que los menos virulentos fueron G2TIZ2, P2TUR7 y P1VP2, con medias de 1,69; 1,69 y 1,64, respectivamente. Los aislamientos restantes tuvieron valores intermedios.</font></P>      <P style="line-height: 100%" align="center"><a name="tab6"><img border="0" src="/img/fbpe/inci/v32n1/art10tab6.jpg" width="391" height="591"></a></P>      
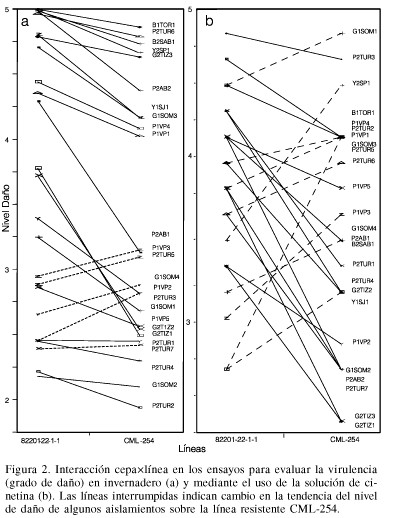
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">La alta significaci&oacute;n estad&iacute;stica observada en la interacci&oacute;n cepas×l&iacute;neas indica que cada cepa se comporta de manera diferente dependiendo de la l&iacute;nea, lo que dificulta aun m&aacute;s el estudio de los aislamientos (<a href="#fig2">Figura 2</a>). Al examinar la interacci&oacute;n existente entre cepas y l&iacute;neas (<a href="#fig2">Figura 2b</a>) se observ&oacute; que 16 cepas mostraron mayor grado de virulencia sobre la l&iacute;nea L-82201-22-1-1 en comparaci&oacute;n con los da&ntilde;os causados sobre la l&iacute;nea CML-254. Los 9 aislamientos restantes (l&iacute;neas discont&iacute;nuas) mostraron una tendencia contraria.</font></P>      <P style="line-height: 100%" align="center"><a name="fig2"><img border="0" src="/img/fbpe/inci/v32n1/art10fig2.jpg" width="394" height="518"></a></P>      
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Para <I>R. solani</I>, la formaci&oacute;n del coj&iacute;n de infecci&oacute;n es de gran importancia para la invasi&oacute;n y posterior infecci&oacute;n del tejido y la opini&oacute;n m&aacute;s com&uacute;n es que los exudados de la planta estimulan la formaci&oacute;n de esas estructuras. Las diferencias en formaci&oacute;n posiblemente determinaron el nivel de virulencia y el comportamiento diferencial entre los aislamientos (Armentrout <I>et al</I>., 1987). La severidad de las enfermedades est&aacute; directamente relacionada con la formaci&oacute;n de estructuras de infecci&oacute;n y esta habilidad es estimulada por el hospedante (Marchall y Rush, 1980).</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Los diferentes modos de penetraci&oacute;n empleados por los hongos fitopat&oacute;genos dependen del aislamiento, del grupo de anastomosis, las especies de plantas y la parte afectada de la planta (Dodman <I>et al</I>., 1968a, b). Es por eso que las respuestas de virulencia difieren, en algunos casos, cuando se compara el ensayo de invernadero y el de la soluci&oacute;n de cinetina; en uno el da&ntilde;o es a nivel del tallo y en el otro en el tejido foliar, trat&aacute;ndose de dos mecanismos de penetraci&oacute;n.</font></P>  <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Virulencia en condiciones de invernadero</font></P> </I>     ]]></body>
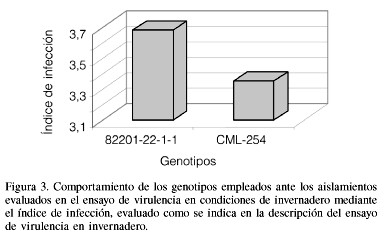
<body><![CDATA[<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">El s&iacute;ntoma inicial pudo ser apreciado en el punto de inoculaci&oacute;n; al comienzo se observ&oacute; una decoloraci&oacute;n del tejido, que se torn&oacute; color crema y posteriormente marr&oacute;n. Con el desarrollo de la enfermedad, las lesiones se hicieron de mayor tama&ntilde;o hasta cubrir, en la mayor&iacute;a de los casos, todo el per&iacute;metro del tallo, alcanzando posteriormente la vaina y la l&aacute;mina foliar. Esta sintomatolog&iacute;a es similar a la descrita por otros investigadores (Ahuja y Payak, 1978; Bastidas, 2003; Cabrera y Garc&iacute;a, 2000; De Le&oacute;n, 1995).</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Al igual que el ensayo anterior, se detect&oacute; diferencias altamente significativas entre los aislamientos (<a href="#tab6">Cuadro VI</a>), siendo los m&aacute;s virulentos B1TOR1, P2TUR6, B2SAB1 y Y2SP1, con valores promedio del &iacute;ndice de infecci&oacute;n de 4,93; 4,88; 4,86 y 4,83, respectivamente, seguidos de los grupos de virulencia intermedia, con medias entre 4,71 y 2,38. De igual manera se pudo apreciar que solamente dos aislamientos G1SOM2 y P2TUR2 presentaron los promedios de virulencia menores, con &iacute;ndices de 2,14 y 2,08, respectivamente. La l&iacute;nea CML-254 se mostr&oacute; significativamente menos afectada que L-82201-22-1-1, coincidiendo estos resultados con los del ensayo anterior (<a href="#fig3">Figura 3</a>).</font></P>      <P style="line-height: 100%" align="center"><a name="fig3"><img border="0" src="/img/fbpe/inci/v32n1/art10fig3.jpg" width="392" height="240"></a></P>      
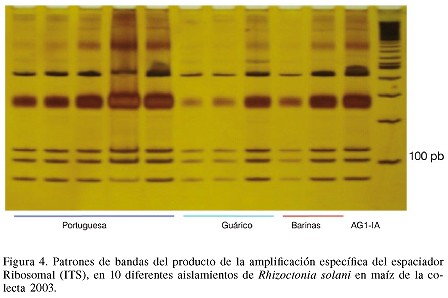
<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Seg&uacute;n los resultados obtenidos en este ensayo, aislamientos pertenecientes a los estados Barinas, Portuguesa y Yaracuy, cuyas siglas comienzan por la respectiva inicial, presentaron un alto nivel de virulencia, lo que sugiere que <I>R. solani</I> AG1-IA posee habilidad para adaptarse a diferentes condiciones agroecol&oacute;gicas. En Portuguesa, uno de los principales productores de ma&iacute;z, posiblemente el pat&oacute;geno se ve obligado a cambiar frecuentemente su composici&oacute;n gen&eacute;tica a causa de la presi&oacute;n de selecci&oacute;n generada por siembras consecutivas y cambios en los cultivares comerciales utilizados, convirti&eacute;ndolo en un enemigo potencialmente peligroso, capaz de distribuirse en parcelas comerciales de manera r&aacute;pida y f&aacute;cil y manifest&aacute;ndose en intensidades considerables.</font></P> <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">R. solani </font> </I><font face="Verdana" size="2">es una especie heterog&eacute;nea conformada por numerosas cepas que difieren en las caracter&iacute;sticas de crecimiento <I>in vitro</I> y en patogenicidad (Ogoshi, 1987). Se ha determinado que la capacidad paras&iacute;tica y saprof&iacute;tica es diferente para cada aislamiento de<I> R. solani </I>(Papavizas, 1970). En relaci&oacute;n con la expresi&oacute;n del s&iacute;ntoma de la enfermedad, se ha determinado que el hongo posee una toxina espec&iacute;fica, un carbohidrato que contiene glucosa, manosa y N-acetylgalactosamina, la cual es producida en mayor cantidad por aislamientos altamente virulentos (Vidhasekaran <I>et al</I>., 1997).</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Evaluaciones de cultivares comerciales en Venezuela indican que todos los materiales evaluados fueron susceptibles a <I>R. solani </I>(Cabrera y Garc&iacute;a, 2000; Bastidas, 2003)<I>. </I>Adicionalmente, debido a las caracter&iacute;sticas de este pat&oacute;geno de ser pol&iacute;fago y con un amplio rango de hospedantes, se hace dif&iacute;cil encontrar genotipos con caracter&iacute;sticas de resistencia a la enfermedad (Zambrano <I>et al</I>., 2002). El hongo posee gran capacidad de sobrevivencia y adaptaci&oacute;n a diferentes ambientes agroecol&oacute;gicos, lo que implica serias dificultades en el establecimiento de estrategias para su combate, particularmente mediante variedades resistentes (Nass y Rodr&iacute;guez, 1994).</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Entre los factores involucrados en la respuesta de resistencia y/o susceptibilidad a <I>R. solani</I> se encuentra el potencial de in&oacute;culo y los factores ed&aacute;ficos. Cabe destacar que en la b&uacute;squeda de materiales de ma&iacute;z que presenten alg&uacute;n grado de resistencia a <I>R. solani</I> es necesario disponer de aislamientos que presenten un grado de virulencia media-alta, con el objeto de determinar el comportamiento de estos materiales ante el pat&oacute;geno. En tal sentido se recomienda utilizar primero, en los programas de mejoramiento, las pruebas de cinetina con aislamientos de grado 2 a 2,5 que representan entre un 11,4 hasta 23,6% de da&ntilde;o. Aquellos que resultasen promisorios en estas evaluaciones pasar&iacute;an a ser evaluados en invernadero, utilizando aislamientos que tengan grado 4 de avance de la enfermedad, entre 36 y 60% de avance. Utilizar aislamientos m&aacute;s virulentos cuando se inicia la b&uacute;squeda de materiales promisorios puede enmascarar posibles candidatos fuentes de resistencia por la utilizaci&oacute;n de una alta presi&oacute;n de selecci&oacute;n. Se podr&iacute;a utilizar grandes cantidades de materiales a evaluar utilizando la prueba de cinetina para luego proceder a evaluar en invernadero. Los seleccionados con estas pruebas pasar&iacute;an a ser evaluados en campo. Esto permite avanzar m&aacute;s eficazmente, al ahorrar recursos y evaluar mayor cantidad de materiales en la b&uacute;squeda de la fuente de resistencia.</font></P>  <I>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Identificaci&oacute;n del grupo de anastomosis de aislamientos</font></P> </I>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">La amplificaci&oacute;n efectuada origin&oacute; un producto de 700pb. La digesti&oacute;n conjunta de las enzimas de restricci&oacute;n AluI y HaeIII di&oacute; como resultado un patr&oacute;n de bandas que fueron visualizadas en PAGE (<a href="#fig4">Figura 4</a>). La comparaci&oacute;n del patr&oacute;n de bandas de la cepa AGI-1A utilizada como probador, con el mostrado por los diferentes aislados adem&aacute;s de las pruebas de anastomosis, permiti&oacute; la identificaci&oacute;n de &eacute;stos. Los 10 aislamientos provenientes de la colecta 2003 mostraron similitud de bandas entre ellos y con el probador del grupo AGI-1A. Igual comportamiento fue descrito por Hern&aacute;ndez <I>et al</I>. (2003b) al realizar el mismo an&aacute;lisis en 15 de los aislamientos utilizados en este estudio, provenientes de zonas productoras de ma&iacute;z en la colecta 2002 y utilizando diferentes probadores, como testigos, de 9 grupos de anastomosis. El an&aacute;lisis en conjunto de las dos colectas realizadas confirma que el grupo de anastomosis que est&aacute; afectando la producci&oacute;n de ma&iacute;z en Venezuela, es del grupo intraespec&iacute;fico AG1-1A.</font></P>      <P style="line-height: 100%" align="center"><a name="fig4"><img border="0" src="/img/fbpe/inci/v32n1/art10fig4.jpg" width="448" height="298"></a></P>  <B>    
]]></body>
<body><![CDATA[<P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Conclusiones</font></P> </B>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">Las caracter&iacute;sticas descritas para cada uno de los aislamientos evaluados se corresponden con las de la especie <I>Rhizoctonia solani</I>, encontr&aacute;ndose rangos variables entre los diferentes aislamientos.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">El m&eacute;todo de amplificaci&oacute;n especifica del espaciador interno ribosomal (rADN-ITS), permiti&oacute; verificar que los aislamientos de <I>R. solani </I>evaluados pertenecen al grupo de anastomosis AGI-1A</font> </P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">En la prueba de virulencia en cinetina, los niveles de virulencia de los aislamientos fueron variables, encontr&aacute;ndose dentro del grupo de mayor virulencia las cepas G1SOM1, P2TUR3, Y2SP1, P2TUR2 y P2TUR5.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">La evaluaci&oacute;n de virulencia en condiciones de invernadero mostr&oacute; que los niveles de virulencia de los aislamientos fueron variables, encontr&aacute;ndose dentro del grupo de mayor virulencia las cepas B1TOR1, P2TUR6, B2SAB1 y Y2SP1.</font></P>     <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">El comportamiento diferencial existente entre los aislamientos de <I>R. solani</I> y las dos l&iacute;neas de ma&iacute;z, indica que cada aislamiento tiene un comportamiento particular de virulencia, el cual se corresponde con la variabilidad mostrada en las caracter&iacute;sticas estudiadas en cada uno de los 25 aislamientos.</font></P>  <B>    <P style="line-height: 100%" align="justify"><font face="Verdana" size="2">REFERENCIAS</font></P> </B>     <!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">1. Ahuja S, Payak M (1978) A field inoculation technique for evaluating maize germplasm to banded leaf and sheath blight. <I>Indian Phytopathol. 31</I>: 517-520</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034072&pid=S0378-1844200700010001000001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">2. Ahuja S, Payak M (1981) A laboratory method for evaluating maize germplasm to banded leaf and sheath blight. <I>Indian Phytopathol. 34</I>: 34-37.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034073&pid=S0378-1844200700010001000002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">3. Armentrout V, Downer A, Grasmick D, Weinhold A (1987) Factors affecting infection cushion development by <I>Rhizoctonia solani</I> on cotton. <I>Phytopathology 77</I>: 623-630.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034074&pid=S0378-1844200700010001000003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">4. Bastidas RO (2003) Comportamiento de cincuenta l&iacute;neas de ma&iacute;z (<I>Zea mays</I> <I>L</I>.) ante la incidencia de <I>Rhizoctonia solani </I>K&uuml;hn, en las condiciones de Agua Blanca, estado Portuguesa. Tesis. Universidad Centroccidental Lisandro Alvarado. Venezuela.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034075&pid=S0378-1844200700010001000004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">5. Cabrera S (2002) <I>Pr&aacute;cticas de manejo para el control de la mancha bandeada de la hoja</I> (Rhizoctonia solani). <I>Determinaci&oacute;n de los niveles de incidencia, severidad y efecto sobre el peso de la mazorca en siembras comerciales de ma&iacute;z</I>. INIA-CIAE. Portuguesa, Venezuela. 315 pp.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034076&pid=S0378-1844200700010001000005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">6. Cabrera S, Garc&iacute;a P (2000) Incidencia, severidad y efecto sobre el peso de la mazorca de ma&iacute;z (<I>Zea mays L</I>.) de la mancha bandeada <I>Rhizoctonia solani,</I> en siembras comerciales en el estado Portuguesa. <I>V Jornadas Cient&iacute;ficas Nacional del Ma&iacute;z</I>. Guanare, Venezuela. p. 101.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034077&pid=S0378-1844200700010001000006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">7. Cardona R, Rodr&iacute;guez H, Nass H (1999) Manchas bandeadas en ma&iacute;z causadas por <I>Rhizoctonia solani</I> en Portuguesa, Venezuela. <I>Fitopatol. Venez. 12</I>: 32-33.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034078&pid=S0378-1844200700010001000007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">8. Carling D, Summer D (1992) Rhizoctonia. En Singleton LL, Mihail JD, Rush CM (Eds.) <I>Methods for research on soilborne phytopathogenic fungi</I>. The American Phythopathological Society. St. Paul, MN, EEUU. pp. 155-165.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034079&pid=S0378-1844200700010001000008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">9. Cede&ntilde;o L, Nass H, Carrero CH, Cardona R, Rodr&iacute;guez H, Alem&aacute;n L (1996) <I>Rhizoctonia solani</I> AG1-1A, causa principal del a&ntilde;ublo de la vaina del arroz en Venezuela. <I>Fitopatol. Venez. 9</I>: 6-9.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034080&pid=S0378-1844200700010001000009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">10. Da Silveira SF, Alfenas AC, Ferreira FA, Sutton JC (2000) Characterization of <I>Rhizoctonia</I> species associates with foliar necrosis and leaf scorch of clonally-propagated eucalyptus in Brazil. <I>Eur. J. Plant Pathol. 106</I>: 27-36</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034081&pid=S0378-1844200700010001000010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">11. De Le&oacute;n C (1995) Banded leaf and sheath blight of maize. The situation in Asia. <I>FLCGNET Newsletter 33</I>: 5-6.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034082&pid=S0378-1844200700010001000011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">12. Dodman R, Barker K, Walker J (1968a) Modes of penetration by differents isolates of <I>Rhizoctonia solani.</I> <I>Phytopathology 58</I>: 31-33.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034083&pid=S0378-1844200700010001000012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">13. Dodman R, Barker K, Walker J (1968b) A detailed study of the different modes of penetration by <I>Rhizoctonia solani. Phytopathology 58</I>: 1271-1276.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034084&pid=S0378-1844200700010001000013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">14. Fontana H, Gonz&aacute;lez C (2000) El cultivo de ma&iacute;z en Venezuela. 1<SUP>a</SUP> ed. Fundaci&oacute;n Polar. Caracas, Venezuela. 530 pp.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034085&pid=S0378-1844200700010001000014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">15. Hern&aacute;ndez A, Galindo I, S&aacute;nchez B, Pineda J, Barrientos V, Gonz&aacute;lez A, Gil E (2003a) Amplificaci&oacute;n de rADN y posterior an&aacute;lisis del producto de digesti&oacute;n como un m&eacute;todo de identificaci&oacute;n de grupos de anastomosis de <I>Rhizoctonia solani. </I>I Cong. Venez. Mejoramiento y Biotecnolog&iacute;a Agr&iacute;cola. Maracay, Venezuela.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034086&pid=S0378-1844200700010001000015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">16. Hern&aacute;ndez A, Galindo I, S&aacute;nchez B, Pineda J, Gonz&aacute;lez A, Gil E (2003b) Identificaci&oacute;n de grupos de anastomosis de <I>Rhizoctonia solani</I> mediante rDNA, ITS en diferentes aislados provenientes de las zonas productoras de ma&iacute;z en Venezuela. <I>Fitopatol. Venez. 16</I>: 57.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034087&pid=S0378-1844200700010001000016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">17. Johansen D (1940) <I>Plant Microtechnique</I>. McGraw-Hill. Londres, RU. 523 pp.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034088&pid=S0378-1844200700010001000017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">18. Marchall D, Rush M (1980) Infection cushion formation on rice sheaths by <I>Rhizoctonia solani</I>. <I>Phytopathology 70</I>: 947-950.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034089&pid=S0378-1844200700010001000018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">19. Nass H, Rodr&iacute;guez H (1994) Efecto de la lamina de agua y la densidad de siembra sobre el desarrollo de <I>Rhizoctonia solani</I> en arroz. <I>Bioagro 6</I>: 31-34.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034090&pid=S0378-1844200700010001000019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">20. Ogoshi A (1987) Ecology and pathogenicity of anastomosis intraespecific groups of <I>Rhizoctonia solani </I>K&uuml;hn<I>. Annu. Rev. Phytopathol. 25</I>: 125-143.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034091&pid=S0378-1844200700010001000020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">21. Papavizas G (1970) Colonization and growth of <I>Rhizoctonia solani </I>in soil.<I> </I>En Parmeter J Jr (Ed.) Rhizoctonia solani <I>Biology and Pathology</I>. University of California Press. Berkeley, CA, EEUU. pp. 108-121.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034092&pid=S0378-1844200700010001000021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">22. Parmeter J, Whitney H (1970) Taxonomy and nomenclature of the perfect stage.<I> </I>En Parmeter J Jr (Ed.) Rhizoctonia solani <I>Biology and Pathology</I>. University of California Press. Berkeley, CA, EEUU. pp. 7-19.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034093&pid=S0378-1844200700010001000022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">23. Vidhasekaran P, Ponmalar R, Samiyappan T, Velazhahan R, Vimala R, Ramanathan V, Muthukrishnan S (1997) Host- specific toxin production by <I>Rhizoctonia solani</I>, the rice sheath blight pathogen. <I>Phytopathology 87</I>: 1258-1263.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034094&pid=S0378-1844200700010001000023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P style="line-height: 100%" align="justify"><font face="Verdana" size="2">24. Zambrano C, Molina N, Cabrera S (2002) <I>Manejo integrado de la mancha bandeada</I> (Rhizoctonia solani<I> K&uuml;hn)</I> <I>de la hoja del ma&iacute;z</I>. INIA-CIAE Portuguesa, Venezuela. 523 pp.</font>&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=1034095&pid=S0378-1844200700010001000024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body>
<back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ahuja]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Payak]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A field inoculation technique for evaluating maize germplasm to banded leaf and sheath blight]]></article-title>
<source><![CDATA[Indian Phytopathol.]]></source>
<year>1978</year>
<volume>31</volume>
<page-range>517-520</page-range></nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ahuja]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[Payak]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A laboratory method for evaluating maize germplasm to banded leaf and sheath blight]]></article-title>
<source><![CDATA[Indian Phytopathol.]]></source>
<year>1981</year>
<volume>34</volume>
<page-range>34-37</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Armentrout]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Downer]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Grasmick]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Weinhold]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Factors affecting infection cushion development by Rhizoctonia solani on cotton]]></article-title>
<source><![CDATA[Phytopathology]]></source>
<year>1987</year>
<volume>77</volume>
<page-range>623-630</page-range></nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bastidas]]></surname>
<given-names><![CDATA[RO]]></given-names>
</name>
</person-group>
<source><![CDATA[Comportamiento de cincuenta líneas de maíz (Zea mays L.) ante la incidencia de Rhizoctonia solani Kühn, en las condiciones de Agua Blanca, estado Portuguesa]]></source>
<year>2003</year>
</nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cabrera]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<source><![CDATA[Prácticas de manejo para el control de la mancha bandeada de la hoja (Rhizoctonia solani).: Determinación de los niveles de incidencia, severidad y efecto sobre el peso de la mazorca en siembras comerciales de maíz.]]></source>
<year>2002</year>
<page-range>315</page-range><publisher-loc><![CDATA[Portuguesa ]]></publisher-loc>
<publisher-name><![CDATA[INIA-CIAE]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="confpro">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cabrera]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[García]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Incidencia, severidad y efecto sobre el peso de la mazorca de maíz (Zea mays L.) de la mancha bandeada Rhizoctonia solani]]></article-title>
<source><![CDATA[siembras comerciales en el estado Portuguesa.]]></source>
<year>2000</year>
<conf-name><![CDATA[V Jornadas Científicas Nacional del Maíz]]></conf-name>
<conf-loc>Guanare </conf-loc>
<page-range>101</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cardona]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Rodríguez]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Nass]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Manchas bandeadas en maíz causadas por Rhizoctonia solani en Portuguesa, Venezuela]]></article-title>
<source><![CDATA[Fitopatol. Venez.]]></source>
<year>1999</year>
<volume>12</volume>
<page-range>32-33</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Carling]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Summer]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Rhizoctonia]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[En]]></surname>
<given-names><![CDATA[Singleton LL]]></given-names>
</name>
<name>
<surname><![CDATA[Mihail]]></surname>
<given-names><![CDATA[JD]]></given-names>
</name>
<name>
<surname><![CDATA[Rush]]></surname>
<given-names><![CDATA[CM]]></given-names>
</name>
</person-group>
<source><![CDATA[Methods for research on soilborne phytopathogenic fungi]]></source>
<year>1992</year>
<page-range>155-165</page-range><publisher-loc><![CDATA[St. Paul, MN ]]></publisher-loc>
<publisher-name><![CDATA[The American Phythopathological Society]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cedeño]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
<name>
<surname><![CDATA[Nass]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Carrero]]></surname>
<given-names><![CDATA[CH]]></given-names>
</name>
<name>
<surname><![CDATA[Cardona]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Rodríguez]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Alemán]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Rhizoctonia solani AG1-1A, causa principal del añublo de la vaina del arroz en Venezuela]]></article-title>
<source><![CDATA[Fitopatol. Venez.]]></source>
<year>1996</year>
<volume>9</volume>
<page-range>6-9</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Da]]></surname>
<given-names><![CDATA[Silveira SF]]></given-names>
</name>
<name>
<surname><![CDATA[Alfenas]]></surname>
<given-names><![CDATA[AC]]></given-names>
</name>
<name>
<surname><![CDATA[Ferreira]]></surname>
<given-names><![CDATA[FA]]></given-names>
</name>
<name>
<surname><![CDATA[Sutton]]></surname>
<given-names><![CDATA[JC]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Characterization of Rhizoctonia species associates with foliar necrosis and leaf scorch of clonally-propagated eucalyptus in Brazil]]></article-title>
<source><![CDATA[Eur. J. Plant Pathol.]]></source>
<year>2000</year>
<volume>106</volume>
<page-range>27-36</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[De]]></surname>
<given-names><![CDATA[León C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Banded leaf and sheath blight of maize]]></article-title>
<source><![CDATA[The situation in Asia. FLCGNET Newsletter]]></source>
<year>1995</year>
<volume>33</volume>
<page-range>5-6</page-range></nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Dodman]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Barker]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[Walker]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Modes of penetration by differents isolates of Rhizoctonia solani]]></article-title>
<source><![CDATA[Phytopathology]]></source>
<year>1968</year>
<month>a</month>
<volume>58</volume>
<page-range>31-33</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Dodman]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Barker]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[Walker]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A detailed study of the different modes of penetration by Rhizoctonia solani]]></article-title>
<source><![CDATA[Phytopathology]]></source>
<year>1968</year>
<month>b</month>
<volume>58</volume>
<page-range>1271-1276</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Fontana]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[González]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<source><![CDATA[El cultivo de maíz en Venezuela]]></source>
<year>2000</year>
<edition>1ª</edition>
<page-range>530</page-range><publisher-loc><![CDATA[Caracas ]]></publisher-loc>
<publisher-name><![CDATA[Fundación PolarVenezuela]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hernández]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Galindo]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Sánchez]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Pineda]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Barrientos]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[González]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Gil]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
</person-group>
<source><![CDATA[Amplificación de rADN y posterior análisis del producto de digestión como un método de identificación de grupos de anastomosis de Rhizoctonia solani]]></source>
<year>2003</year>
<month>a</month>
<publisher-loc><![CDATA[Maracay ]]></publisher-loc>
</nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hernández]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Galindo]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[Sánchez]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
<name>
<surname><![CDATA[Pineda]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[González]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Gil]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Identificación de grupos de anastomosis de Rhizoctonia solani mediante rDNA, ITS en diferentes aislados provenientes de las zonas productoras de maíz en Venezuela]]></article-title>
<source><![CDATA[Fitopatol. Venez.]]></source>
<year>2003</year>
<month>b</month>
<volume>16</volume>
<page-range>57</page-range></nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Johansen]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<source><![CDATA[Plant Microtechnique]]></source>
<year>1940</year>
<page-range>523</page-range><publisher-loc><![CDATA[Londres ]]></publisher-loc>
<publisher-name><![CDATA[McGraw-Hill]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Marchall]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Rush]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Infection cushion formation on rice sheaths by Rhizoctonia solani]]></article-title>
<source><![CDATA[Phytopathology]]></source>
<year>1980</year>
<volume>70</volume>
<page-range>947-950</page-range></nlm-citation>
</ref>
<ref id="B19">
<label>19</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Nass]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[Rodríguez]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Efecto de la lamina de agua y la densidad de siembra sobre el desarrollo de Rhizoctonia solani en arroz]]></article-title>
<source><![CDATA[Bioagro]]></source>
<year>1994</year>
<volume>6</volume>
<page-range>31-34</page-range></nlm-citation>
</ref>
<ref id="B20">
<label>20</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ogoshi]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ecology and pathogenicity of anastomosis intraespecific groups of Rhizoctonia solani Kühn]]></article-title>
<source><![CDATA[Annu. Rev. Phytopathol.]]></source>
<year>1987</year>
<volume>25</volume>
<page-range>125-143</page-range></nlm-citation>
</ref>
<ref id="B21">
<label>21</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Papavizas]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Colonization and growth of Rhizoctonia solani in soil]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[En]]></surname>
<given-names><![CDATA[Parmeter J Jr]]></given-names>
</name>
</person-group>
<source><![CDATA[Rhizoctonia solani Biology and Pathology]]></source>
<year>1970</year>
<page-range>108-121</page-range><publisher-loc><![CDATA[Berkeley^eCA CA]]></publisher-loc>
<publisher-name><![CDATA[University of California Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B22">
<label>22</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Parmeter]]></surname>
<given-names><![CDATA[J]]></given-names>
</name>
<name>
<surname><![CDATA[Whitney]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Taxonomy and nomenclature of the perfect stage]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[En]]></surname>
<given-names><![CDATA[Parmeter J Jr]]></given-names>
</name>
</person-group>
<source><![CDATA[Rhizoctonia solani Biology and Pathology]]></source>
<year>1970</year>
<month>Ed</month>
<day>.</day>
<page-range>7-19</page-range><publisher-loc><![CDATA[Berkeley^eCA CA]]></publisher-loc>
<publisher-name><![CDATA[University of California Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B23">
<label>23</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Vidhasekaran]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[Ponmalar]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Samiyappan]]></surname>
<given-names><![CDATA[T]]></given-names>
</name>
<name>
<surname><![CDATA[Velazhahan]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Vimala]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Ramanathan]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Muthukrishnan]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Host- specific toxin production by Rhizoctonia solani, the rice sheath blight pathogen]]></article-title>
<source><![CDATA[Phytopathology]]></source>
<year>1997</year>
<volume>87</volume>
<page-range>1258-1263</page-range></nlm-citation>
</ref>
<ref id="B24">
<label>24</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Zambrano]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Molina]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
<name>
<surname><![CDATA[Cabrera]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<source><![CDATA[Manejo integrado de la mancha bandeada (Rhizoctonia solani Kühn) de la hoja del maíz]]></source>
<year>2002</year>
<page-range>523</page-range><publisher-loc><![CDATA[Portuguesa ]]></publisher-loc>
</nlm-citation>
</ref>
</ref-list>
</back>
</article>